VOLUM 50, 2000 TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA 2000
LA BIOLOGIA A L ALBA D UN NOU MIL· LENNI JAUME BERTRANPETIT EDITOR
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 50, 2000
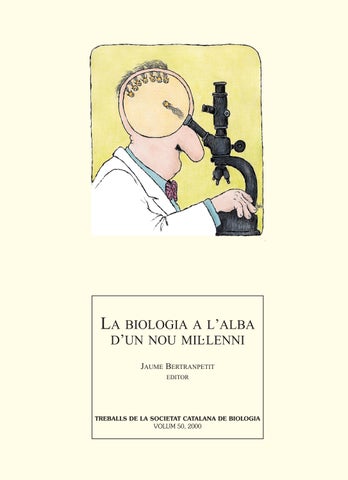
La visió de Fernando Krahn sobre les perspectives de la biologia actual és sorprenent i rica; és estimulant i intrigant; és oberta. Per això permet i convida de fer interpretacions imprevisibles. Potser el punt de partida podria ser una frase gairebé òbvia: la intel·ligència humana (com les altres intel·ligències) no ha sorgit per entendre el món, sinó per sobreviure. D una manera semblant a la il·lustració de Fernando Krahn, hi ha un significat implícit en aquesta frase: de quina manera l entorn ha configurat i configura la nostra pròpia percepció i concepció del món. La ment científica pretén un exercici compartible i homologable amb les altres ments: l observació objectiva i la deducció sota els postulats de la lògica formal. Però potser ja és hora, en l exploració dels límits del nostre coneixement, que interpretem sota un prisma biològic allò que ens fa entendre i interpretar. Podríem entendre la il·lustració en el sentit que els estímuls exteriors configuren l arquitectura del nostre sistema nerviós i, és clar, la seva manera de funcionar i la nostra de percebre. Als pessimistes que temen el determinisme biològic, els pot alegrar saber que el contingut d informació d un cervell humà és unes mil vegades superior al contingut d informació del conjunt del nostre genoma. Els estímuls exteriors, doncs, ens configuren en allò que creiem més íntim, el nostre cervell. I ens deixen la complexa pregunta de com preparen els gens el substrat per a una modulació que no té res de casual. Aquest sistema nerviós és fruit d un procés evolutiu del que la dèria de la pròpia comprensió no n ha estat el motor, sinó que n és un producte secundari. La nostra percepció del món no és objectiva, no està fonamentada en relacions senzilles entre l estímul, el seu efecte en els nostres sensors i l efecte final al sistema nerviós. L evolució, en el llarg camí del bricolatge, ha fet servir allò que ha pogut per assolir millores conjunturals, sempre cercant una utilitat que no caldria justificar en si mateixa, ja que pot tenir causalitats ocultes. El nostre cervell forja una ment eficaç per detectar l engany o per establir lligams socials, més que no pas per resoldre preats enigmes matemàtics. La física del segle XX va aprendre l íntima relació entre l observador i allò que s observa, i va mostrar que no són dues parts independents sinó intricadament connectades. A la biologia li resta encara entendre bona part de la nostra relació amb el món. Comencem a entendre la vida i anirem entenent la integració, molt complexa, de tota la vida i el món físic que l envolta. Llavors seran senzills fins i tot els enigmes de l esperit. JAUME BERTRANPETIT
VOLUM 50, 2000 TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA 2000
LA BIOLOGIA A L ALBA D UN NOU MIL· LENNI JAUME BERTRANPETIT EDITOR
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 50, 2000
La visió de Fernando Krahn sobre les perspectives de la biologia actual és sorprenent i rica; és estimulant i intrigant; és oberta. Per això permet i convida de fer interpretacions imprevisibles. Potser el punt de partida podria ser una frase gairebé òbvia: la intel·ligència humana (com les altres intel·ligències) no ha sorgit per entendre el món, sinó per sobreviure. D una manera semblant a la il·lustració de Fernando Krahn, hi ha un significat implícit en aquesta frase: de quina manera l entorn ha configurat i configura la nostra pròpia percepció i concepció del món. La ment científica pretén un exercici compartible i homologable amb les altres ments: l observació objectiva i la deducció sota els postulats de la lògica formal. Però potser ja és hora, en l exploració dels límits del nostre coneixement, que interpretem sota un prisma biològic allò que ens fa entendre i interpretar. Podríem entendre la il·lustració en el sentit que els estímuls exteriors configuren l arquitectura del nostre sistema nerviós i, és clar, la seva manera de funcionar i la nostra de percebre. Als pessimistes que temen el determinisme biològic, els pot alegrar saber que el contingut d informació d un cervell humà és unes mil vegades superior al contingut d informació del conjunt del nostre genoma. Els estímuls exteriors, doncs, ens configuren en allò que creiem més íntim, el nostre cervell. I ens deixen la complexa pregunta de com preparen els gens el substrat per a una modulació que no té res de casual. Aquest sistema nerviós és fruit d un procés evolutiu del que la dèria de la pròpia comprensió no n ha estat el motor, sinó que n és un producte secundari. La nostra percepció del món no és objectiva, no està fonamentada en relacions senzilles entre l estímul, el seu efecte en els nostres sensors i l efecte final al sistema nerviós. L evolució, en el llarg camí del bricolatge, ha fet servir allò que ha pogut per assolir millores conjunturals, sempre cercant una utilitat que no caldria justificar en si mateixa, ja que pot tenir causalitats ocultes. El nostre cervell forja una ment eficaç per detectar l engany o per establir lligams socials, més que no pas per resoldre preats enigmes matemàtics. La física del segle XX va aprendre l íntima relació entre l observador i allò que s observa, i va mostrar que no són dues parts independents sinó intricadament connectades. A la biologia li resta encara entendre bona part de la nostra relació amb el món. Comencem a entendre la vida i anirem entenent la integració, molt complexa, de tota la vida i el món físic que l envolta. Llavors seran senzills fins i tot els enigmes de l esperit. JAUME BERTRANPETIT
VOLUM 50, 2000
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA LA BIOLOGIA A L ALBA D UN NOU MIL·LENNI
2000
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA
VOLUM 50, 2000
FILIAL DE L INSTITUT D ESTUDIS CATALANS
BARCELONA 2000
NORMES DE PUBLICACIÓ DELS TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA Treballs de la Societat Catalana de Biologia (Treballs de la SCB) publica: a) revisions encarregades per la Societat, de ciències de la vida; b) comunicacions presentades a les sessions ordinàries i extraordinàries que organitza la Societat o les seves seccions especialitzades; c) monografies o conferències de científics convidats per la Societat; d) les ressenyes de les sessions científiques organitzades per la Societat. Presentació dels originals Els originals seran redactats en llengua catalana, excepte en casos justificats pels quals el Consell Directiu pugui acceptar una altra llengua. El Consell de Redacció consultarà especialistes, els quals, en qualsevol cas, determinaran si un article pot publicar-se immediatament, necessita revisió, o bé és rebutjat. Els autors rebran notificació de la decisió. Si el treball requereix revisió, es facilitaran als autors els comentaris escrits dels especialistes que l hagin revisat. En el cas que no sigui acceptat, la còpia original i les il·lustracions seran retornades als autors. La submissió d un manuscrit implicarà que el material és original i que no se n considera la publicació en cap altra revista. Els originals es lliuraran en disquet d ordinador de 3 1/2 o per correu electrònic (scb@iec.es), junt amb una còpia en paper. El programa cal que sigui Microsoft Word (Macintosh o PC) pel que fa al text. Les figures, il·lustracions i taules també s entregaran en suport informàtic. Feu servir el cognom de l autor com a nom del document. Cal indicar en l etiqueta del disquet: l autor del treball, l adreça i el sistema operatiu informàtic emprat. Els manuscrits presentats en mecanografiat seran acceptats tan sols en circumstàncies excepcionals. Les il·lustracions cal que siguin de bona qualitat i que les mides s ajustin a les dimensions de la revista. L original, incloent-hi les taules i les il·lustracions, no sobrepassarà l extensió de vint fulls. Només podran ultrapassar aquest límit el text de les conferències o monografies extraordinàries, amb l acord previ del Consell de Redacció de Treballs de la Societat Catalana de Biologia. Els treballs i la correspondència referent a la redacció hauran de dirigir-se al president del Consell de Redacció de Treballs de la Societat Catalana de Biologia, Carrer del Carme, 47. 08001 Barcelona. Estructuració dels manuscrits Cada treball ha d estar encapçalat pel títol, seguit pel nom i primer cognom del(s) autor(s) en majúscules i del lloc o llocs de treball respectius. S evitarà la utilització de notes a peu de pàgina. Tots els fulls aniran numerats consecutivament començant pel full de la portada. Resum El resum, d una extensió màxima de dues-centes paraules, serà redactat en català i anglès. El títol del treball també
haurà d ésser traduït a l anglès i s acompanayarà d un màxim de cinc paraules clau en anglès. Taules i il·lustracions Les fotografies en blanc i negre hauran d ésser de bona qualitat i contrast. Les fotografies portaran al dors, en llapis tou, el cognom de l autor, el número d ordre i llur part superior haurà d ésser indicada mitjançant una fletxa. Caldrà indicar quines són els originals i quines les còpies. Cada taula portarà un títol descriptiu breu i aniran numerades correlativament en caràcters romans. Bibliografia Els manuscrits inclouran les referències bibliogràfiques ordenades per ordre alfabètic. En el text s indicarà per ordre cronològic els noms dels autors i la data de publicació; en el cas que una referència tingui més de dos autors, se citarà el primer seguit de et al. Cada referència inclourà, i en aquest ordre, cognoms dels autors, amb versaletes, any de publicació, títol de l article, nom de la revista abreujat i en cursiva, número del volum i la primera i la darrera pàgines. Les referències a capítols i monografies indicaran el títol de la referència llibre seguit del nom del(s) editor(s), el títol del treball, la ciutat de publicació i l editorial. Al final de la citació s indicaran les planes que inclou el treball. Cal tenir en compte els exemples següents: CODINA, C.; F. VILADOMAT; J. BASTIDA; J. M. LLABRÉS (1989). «Potencial biotecnològic del cultiu de cèl·lules vegetals per a l obtenció de productes farmacèutics». Treb. Soc. Cat. Biol., núm. 40, pàg. 47-70. GLICK, T. F. (1989). «Biologia i context social: la nova historiografia del Darwinisme». Treb. Soc. Cat. Biol., núm. 40, pàg. 7-18. MELLADO, R. P. (1987). «Vectores utilizados para la manipulación y expresión de genes». A: Vicente, M.; Renart, J. Ingeniería genética. Madrid: CSIC, pàg. 21-30. YUNIS, J. J.; O. PRAKASH (1982). «The origin of man: a chromosomal pictorial legacy». Science, núm. 215, pàg. 1525-1530. Proves d impremta De tots els originals acceptats, l autor (o bé el primer dels autors si són més d un) en rebrà unes proves d impremta per tal de corregir-les, i aquestes proves hauran d ésser retornades, per correu urgent, a la secretaria de la Societat Catalana de Biologia, dins del termini màxim d una setmana. En les proves no podran ésser introduïdes correccions d estil, i només hi seran admeses les de caràcter ortogràfic i tècnic. Un cop publicat, es lliuraran a l autor vint extrets sense càrrec.
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA FILIAL DE L INSTITUT D ESTUDIS CATALANS
VOLUM 50, 2000
BARCELONA 2000
LA BIOLOGIA A L ALBA D UN NOU MIL·LENNI
JAUME BERTRANPETIT editor
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 50, 2000
CONSELL DE REDACCIÓ ANNA M. GÓMEZ-FOIX, presidenta LLUÍS CORNUDELLA I MIR MERCÈ DURFORT I COLL CRISTINA JUNYENT I RODRÍGUEZ MERCÈ PIQUERAS I CARRASCO FRANCESCA VIDAL I DOMÍNGUEZ
© dels autors dels articles
Editat per la Societat Catalana de Biologia (filial de l Institut d Estudis Catalans) Carrer del Carme, 47. 08001 Barcelona http://www.iec.es/scb Compost per Fotocomposició gama, s.l. Carrer Arístides Maillol, 3, 1r 1a. 08028 Barcelona Imprès a Limpergraf, SL Polígon industrial Can Salvatella. Carrer de Mogoda, 29-31 08210 Barberà del Vallès ISSN: 0212-3037 Dipòsit Legal: B. 12164-1963
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA
VOLUM 50, 2000
ÍNDEX
LA BIOLOGIA A L ALBA D UN NOU MIL·LENNI Presentació . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . J. BERTRANPETIT El front de les recerques en biologia. Presentació del volum Cap on va la biologia moderna, 1971. . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . R. MARGALEF
7 9
Primera part Una mirada retrospectiva de trenta anys des del context del món microbià . . . . . . . . . . R. PARÉS L imparable ascens científic i social de la biologia al darrer terç del segle XX . . . . . . . . . . J. BAGUÑÀ Reflexions sobre la genètica, la teoria de l evolució i la genètica de poblacions . . . . . . . . A. PREVOSTI Organització de la biosfera i reflexions sobre el present i el futur de la nostra espècie i de la ciència ecològica . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . R. MARGALEF Reflexions entorn d aspectes socials i de la salut . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . I. ARAGÓ
15 23 35 47 61
Segona part Biologia teòrica . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . R. V. SOLÉ Biologia estructural: trenta anys filant prim . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . L. RIBAS I DE POUPLANA La biologia computacional . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . R. GUIGÓ Disseny de fàrmacs . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . E. PÉREZ-PAYÁ Modificació genètica en plantes, plantes transgèniques i agricultura . . . . . . . . . . . . . . . . . J. M. CASACUBERTA Modificació genètica d animals . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . L. MONTOLIU La teràpia gènica . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . M. CHILLÓN I A. BOSCH
69 85 97 107 119 133 141
6 ÍNDEX
Biologia del càncer . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . J. L. ROSA I F. VENTURA Genòmica funcional: l exemple del llevat . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . J. VILARDELL La resposta immunitària . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . J. A. GARCIA-SANZ De la desintegració del coneixement científic a l assassinat de la globalitat: cinc reflexions i un paradigma a l entorn de la neurociència . . . . . . . . . . . . . . . . . . . . . . . . . A. VALERO La comprensió de la conducta: aportacions de la genètica molecular . . . . . . . . . . . . . . . . . R. M. ESCORIHUELA La biologia del desenvolupament . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . J. GARCIA-FERNÀNDEZ La comprensió dels mecanismes de l evolució . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . D. DE LORENZO La diversitat genètica humana: de l espècie a l individu . . . . . . . . . . . . . . . . . . . . . . . . . . . . . F. CALAFELL Les infeccions del futur . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . R. ABÓS I HERRÀNDIZ La comprensió de la biodiversitat: vers el renaixement de l ecologia humana . . . . . . . . J. A. GARÍ El laberint ecològic . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . S. PUEYO SOCIETAT CATALANA DE BIOLOGIA (CURS 1997-1998) . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . RESUM DE LES SESSIONS CIENTÍFIQUES . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . ALTRES ACTIVITATS . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . ÍNDEX D AUTORS DEL VOLUM 50 . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . .
151 163 173 181 203 213 225 235 249 267 279 289 291 298 305
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 7-8
PRESENTACIÓ JAUME BERTRANPETIT Unitat de Biologia Evolutiva. Facultat de Ciències de la Salut i de la Vida. Universitat Pompeu Fabra. Adreça per a la correspondència: Unitat de Biologia Evolutiva. Facultat de Ciències de la Salut i de la Vida. Universitat Pompeu Fabra. Doctor Aiguader, 80. 08003 Barcelona. Adreça electrònica: jaume.bertranpetit@cexs.upf.es
El mes de gener de 1970 tingué lloc un col·loqui de la Societat Catalana de Biologia, dedicat a «Cap on va la biologia moderna», organitzat pel professor Ramon Margalef i que fou publicat, amb el mateix títol, el 1971. En aquell volum, que recollí tant les ponències com les discussions posteriors, es proposava debatre els límits dels coneixements llavors actuals de la biologia, tot fixant-se especialment en aquelles àrees on el progrés biològic trobava major resistència. Sens dubte es tractà d un llibre agosarat, amb un títol ambiciós i que mostrava una inquietud en un camp que ja apuntava cap a una eclosió científica i social de grans dimensions. Però fins i tot les visions més agosarades difícilment s haurien atrevit a predir un desenvolupament tan extraordinari com el que ha tingut lloc. La biologia s ha posat al capdavant de les ciències per la profunditat dels nous coneixements que arriben a detallar les intimitats bàsiques de la vida, per l ús de noves tecnologies que han fet quotidià el que temps enrere era impos-
sible, per la capacitat de manipular i experimentar, per l impacte dels nous desenvolupaments en la vida quotidiana i pel repte que posen les explicacions naturalistes a anteriors explicacions humanistes. Avui, un llibre amb el mateix títol, Cap on va la biologia moderna, també té sentit. D entrada com a llibre d explicació de coneixements; per saber què es fa en les àrees en expansió dins la biologia i quina és la visió que els biòlegs tenen del desenvolupament present i futur. Per això, quan al consell directiu de la SCB es va plantejar de fer alguna cosa d especial per al número 50 la proposta va sorgir de pressa: un remake del mateix llibre, però gairebé trenta anys més tard. Cap de nosaltres no dubtava que aquests trenta anys eren més que suficients per tornar a fer una explicació d on és la biologia i una reflexió que ens permetés pensar en el futur. En aquest nou llibre, però, el títol és diferent tot i que pretén dir el mateix. Simplement el títol de l any 1971 té un deix passat de moda, sobretot per la paraula moderna; ben curiós. I
8 J. BERTRANPETIT
per altra banda tot i que puguem ser crítics amb la dèria mil·lenarista, no ens salvem de l atracció dels nombres rodons. Què millor que brindar amb el mig centenar de volums dels Treballs de la SCB l alba del tercer mil·lenni? Així doncs, pretenem presentar la biologia actual, amb la seva història, però sobretot amb l embranzida del present i la projecció cap al futur. Hi ha hagut una atomització d àrees en la biologia, fet que sovint ha estat criticat com a factor que ha fet perdre les visions globals, segons la metàfora del bosc i dels arbres. Però aquesta crítica sol ser desajustada: cal saber el que es fa en cada àrea, el que es pot fer o el que es vol fer per a crear riquesa en les altres. Tot i l especialització hi ha un gran transvasament de coneixements i tecnologies i en aquest llibre n hi ha molts exemples, alguns molt rics. Per altra banda, les visions sintètiques, bé que necessàries, no cal que siguin fetes per tothom; potser aquest recull ajudarà els estudiosos d uns camps biològics a enriquir-se amb les propostes d altres. I de ben cert servirà per a aquells que fa temps que no estan al dia del desenvolupament de la recerca en biologia i en tenen curiositat. Qui pot donar aquesta visió pretesa de la biologia com a disciplina única i diversa alhora? La proposta que presentem és dual. Hi ha una primera part en què la majoria d autors del llibre de 1971 han accedit a fer una re-reflexió sobre el desenvolupament de la biologia en les darreres dècades, amb una visió molt personal. I una segona part, molt més extensa, en la qual investigadors joves ens exposen un estat de la qüestió dels
camps que estan treballant. Es fa difícil definir qui és jove, i hem establert arbitràriament el límit d edat a l entorn dels quaranta anys, tot i que molts dels autors són més joves. Cal potser justificar per què no s han convidat persones amb més experiència i, segurament, amb més coneixement. Potser la justificació més senzilla sigui que si volem saber cap on va el futur, que siguin els que l han de forjar els que ens ho expliquin; amb molt d entusiasme i idealisme; amb ganes i treball; però també amb una trajectòria curta i sòlida, sovint desenvolupada fora del nostre país. El ventall d articles de científics joves és ampli i el recull cobrirà moltes àrees que podem considerar capdavanteres en el desenvolupament de la biologia. Tot i això hi ha àrees poc o gens representades i sobretot investigadors molt valuosos que no hi participen; és una omissió grollera, que el desenvolupament d altres números monogràfics dels Treballs de la SCB pot apaivagar. És admirable i preocupant veure la quantitat i la vàlua d investigadors joves de terres catalanes que no podran acomplir desigs de retorn. Aquestes pàgines poden servir, amb certa humilitat, perquè alguns d ells puguin profetitzar un xic a la seva terra. La biologia a l alba del nou mil·lenni se ns presenta com una capsa de Pandora, però no de misèries i maldats ans plena de sorpreses inacabables. Amb coneixement i esperances; amb dubtes i polèmiques. Amb vida. Com un nou do assolit, no com a càstig, sinó com a esperança guanyada per la curiositat dels humans.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 9-12
EL FRONT DE LES RECERQUES EN BIOLOGIA PRESENTACIÓ DEL VOLUM CAP ON VA LA BIOLOGIA MODERNA, 1971 RAMON MARGALEF Departament d Ecologia. Facultat de Biologia. Universitat de Barcelona. Adreça per a la correspondència: R. Margalef. Departament d Ecologia. Facultat de Biologia. Universitat de Barcelona. 08071 Barcelona.
Són presents, en l esperit de tots, els progressos de la biologia en els darrers decennis. Els biòlegs d avui vivim en una època sortosa i apassionant. Fruit d una quantitat impressionant de treball meticulós, comencem a veure-hi més clar en l estructura i el funcionament de la matèria viva. Aquest resultat es troba en la línia de la tradició científica occidental més típica i és fruit de l estratègia d abocar els recursos humans i materials a l estudi de problemes concrets i limitats materialment. La major part dels avenços importants han estat aconseguits estudiant virus, i encarar-se amb Escherichia és encarar-se ja amb un sistema «gegantí». En l avenç hi ha hagut intuïcions admirables, però l estratègia de recerca ha estat caracteritzada més aviat per deixar en segon terme tot excés d especulació i la temptació d aplicar un sistema de conceptes poc precisos a sistemes i fenòmens molt complexos. L èxit aconseguit corona una anàlisi que va de baix a dalt i es fonamenta en la imatge provadament adequada que ens donen la fí-
sica i la química. És obvi que si aquestes ciències no haguessin assolit un desenvolupament suficient, no hauria estat possible el progrés recent en biologia. Hom pot esperar nous avenços seguint la metodologia ja provada, a mesura que es vagin afrontant situacions cada vegada més complexes. Tenim ací un front mòbil de la biologia actual, en el qual el progrés és previsible, si bé és cert que alguns fenòmens, com és ara la memòria, potser esperen un descobriment qualitatiu o un canvi sistemàtic de tècniques que, per ara, no poden ésser previstos. Cal dir que els avenços en l estudi de la base material molecular, com és costum de dir de la vida, desperten una certa enveja en els biòlegs que, com jo mateix, ens movem en un territori que sembla molt menys sòlid. Som encara lluny d haver trobat un pont ferm entre els problemes típics de la biologia molecular d avui i el que pot ésser l ecologia de demà. I que consti que la insatisfacció expressada no és enveja dels èxits i recursos de l anomenada biologia molecular, sinó preci-
10 R. MARGALEF
sament tot al contrari: els problemes pràctics relacionats amb l augment de la població humana, amb la producció d aliments, amb la conservació o deterioració de la natura, han sobrevalorat l ecologia. Un examen recent del «mercat» de científics als Estats Units arribava a la conclusió que aquest ja estava saturat de físics i de biòlegs moleculars; però que encara hi havia lloc per a més ecòlegs, més oceanògrafs i més geòlegs. Hi ha el risc que si una branca de la ciència és obligada a desenvolupar-se des de fora, pot fruir de molts recursos, però si no és el seu temps, els fruits que donarà seran intel·lectualment poc vigorosos. Els biòlegs «supramoleculars» som conscients d aquest perill, tant com els bioquímics i potser encara més que ells. Ens trobem davant d una sèrie de dificultats, comunes també a la genètica i a l evolució, i que podríem dir que vénen a resumir-se en el problema de definir una noció d èxit, definir la funció que la selecció natural maximitza o minimitza. Aquest punt és un dels que podran ésser tractats amb fruit en aquestes converses. El continu que va de les macromolècules als ecosistemes té molts replecs, amagatalls de fantasmes i malentesos que hom va exorcitzant progressivament; però això pot portar a un reduccionisme excessiu que pot ésser, també, intel·lectualment limitador. Cal pensar en sistemes de complicació progressiva, que s integren successivament, i postular un grau diferent de complexitat quan els sistemes es comporten diferentment. Però com s ha d entendre aquella noció d èxit en biologia, roman, al meu entendre, un problema fonamental. A part d aquests obstacles a l avenç, que són donats per la natura de la ciència i pel seu desenvolupament històric, hi ha altres obstacles que depenen més de la societat. Examinem-ne alguns. El científic acostuma a queixar-se de la manca de recursos materials, generalment amb raó, i cal que la so-
cietat se n assabenti. Aquest és un fre important per al progrés. Però, a escala mundial, cal reconèixer que la significació social del binomi ciència-tecnologia ha abocat recursos fabulosos a la recerca i ha fet passar el científic a una posició primer respectable i després fins i tot distingida dins la societat. Parlo en termes generals, per tal com és possible que ací arribi abans o sigui més efectiva la reacció anticientífica present, que no pas aquell fantàstic moviment universal de promoció de la ciència, i això no per malícia sinó per peresa, perquè requereix menys esforç criticar els errors de la ciència que no pas treballar positivament per ella. En realitat, la recent reacció de desconfiança envers la ciència no ha de preocupar-nos directament, almenys a mi no em preocupa gaire, perquè no hi ha persona més conscient de les limitacions de la ciència que el mateix científic que mai no ho ha esperat tot d ella, com volen deixar suposar que ha fet els qui sembla que cerquin de desvetllar un sentit de culpa i de pecat en els científics. Amb un cert recel que les paraules arribin als qui han de donar els diners per a la recerca, jo expressaria la meva opinió que els homes i llur actitud pesen més que no pas els mitjans materials en l orientació i en l avenç de la investigació. Òbviament penso, doncs, que l entusiasme dels joves és un factor fonamental; i és en aquest sentit que em preocupa, fins a un cert punt, no gaire com he dit, la campanya de descrèdit de la ciència a què em referia suara, i que pot tenir un cert efecte dins una cultura bàsicament literària com és ara la nostra. L acumulació de recursos materials i l exquisida preparació humana han estat els factors que han permès els avenços de la biologia com els de la física i han arribat quan el començ dels camins era ja fixat per la mà del geni i llur inici s anava fressant. Tot descobriment realment nou és, en certa manera, un salt en el buit, que es fa amb
EL FRONT DE LES RECERQUES EN BIOLOGIA 11
pocs recursos. No es tracta de veure altres coses, sinó de pensar-hi d una manera diferent. Els recursos inspirats pel pensament nou vénen després i permeten de construir l edifici des d on serà donat un altre salt. El fet és que la veritable creació científica i poder disposar de molts recursos no estan necessàriament lligats. Ací hi ha la raó, ensems, dels grans èxits i de les fortes limitacions de la ciència organitzada. Els camins organitzats ens permeten d anar de pressa; però sempre ens deixaran pensant en els paisatges meravellosos que podríem veure des de fora el camí. En aquest sentit, com a venedores de camins practicables, les escoles tenen sempre quelcom d esterilitzador. El prestigi d un professor o el prestigi d un laboratori canalitzen fatalment una direcció de recerca, tal com un ambient favorable i constant canalitza l evolució d una espècie. El risc de no saber veure les coses d una altra manera és major quan la política de recerca va orientada per aquestes grans organitzacions, usualment anònimes darrere els seus acrònims, sovint internacionals, burocratitzades i poc intel·ligents. Aquestes organitzacions distribueixen recursos amb missió específica, tenen personal de bona fe, tracten d escollir consellers conscients, però és impossible potser de demanar-los que surtin de llur miopia. Bona part de la causa es troba en el fet que l organització de la ciència d avui no es pot basar exclusivament en la gent fortament motivada, que és poca, sinó que ha de reclutar moltes persones que han arribat a la ciència per consideracions diverses, sense el que en deien vocació, i aquestes persones resulten ésser més estables, fins i tot més assenyades, i sempre saben més d administració que el científic a l antiga, el qual mai no deixarà d ésser l inconformista que crea problemes i sol romandre en posició subordinada. Cal, però, que faci sentir la seva veu i, de temps en temps, que intenti de canviar l estructura de
l organització científica. Cal exercir alguna pressió enfront de les organitzacions científiques de tot nivell, perquè revisin periòdicament llur estratègia, canviïn programes i administradors, i evitin de caure en una política excessivament miop. Jo crec que el divorci entre el científic i la societat en general és menor del que a vegades hom diu. És una reacció natural quan la petició de resultats «pràctics» va unida a pressions particularment esterilitzadores. El professor universitari, en dirigir-se als qui treballaran demà, ha d expressar la convicció que solament el treball intens i molt concret dóna, a la llarga, resultats positius; però ha d ensenyar també que contínuament hom ha de tenir tentacles estesos explorant l inconegut i ha d estar a punt de saltar fora del camí. Cal recordar als estudiants que la ciència és un dels pocs dominis on es refugia actualment l esperit d aventura, una de les característiques més humanes, o almenys més lligades a la cultura de l home occidental. Però cal remarcar també que, al costat de la inquietud per nous horitzons, no pot ésser abandonada la disciplina del treball concret i seguit. La inspiració mai no és gratuïta i no sol ésser donada als qui defugen el treball. El problema de la comunicació d informació científica ha estat sovint exagerat i és secundari. Resideix menys en el canal que en els receptors. Molta informació circula particularment, per fora de les vies considerades ortodoxes (revistes). Si hi ha interès, la informació es troba. No hi ha cap raó perquè sigui transmesa a una velocitat menor de la que mostra la difusió d una sèrie d innovacions dins el que podríem anomenar «subcultura de la joventut». Veiem, doncs, com, a part de factors propis del desenvolupament de la ciència, contribueixen a mantenir sectors endarrerits: la peresa o manca d interès intel·lectual, el conformisme, les posicions mentals rígides, la
12 R. MARGALEF
insuficiència de tècniques i fins també prejudicis socials diversos. Aquests han pogut ésser molt importants i no han desaparegut del tot, bé que poden haver canviat de signe. Recordem la campanya recent contra William Shockley, coinventor del transistor, per haver suggerit en el si de l Acadèmia Nacional de Ciències dels Estats Units que fossin estimulades investigacions sobre la part de l herència i la part de l ambient en la capacitat intel·lectual humana. Els nous radicals segueixen dins una línia molt tradicional en llur fe en la natura angelical de l home i en substituir uns tabús per uns altres. El front de les recerques en biologia se ns mostra, doncs, estabilitzat en uns punts, en altres hi ha progressos previsibles a curt termini i en altres encara cal esperar que algú obri nous camins. En tot cas, la biologia sembla oferir més camp a córrer que altres ciències. L especialització és sovint criticada, però des del nostre punt de vista ho és solament en la mesura que cap sistema ni intel·lectual ni altre és explicable en ell mateix i sempre pressuposa un nivell d organització i de perspectiva superiors i fora
del primer. Tots sabem que les idees importants són inspirades sovint, si inspiració cal, per contactes amb altres matèries, i les zones de lligam entre disciplines diverses sempre han estat fèrtils. El mateix sentit té la introducció d una tècnica nova, nascuda en un altre camp, que pot donar lloc a una veritable revolució. És bo que els científics s interessin per dominis veïns i, a més de llegir els periòdics professionals, passin els ulls per damunt les planes de les revistes de ciència en general. Per això, reunions com la present, d objectiu molt ampli, poden tenir una eficàcia major que no pas una senzilla revisió i un comentari d on ens trobem, o que no pas consolar-nos per la migradesa dels nostres mitjans. Hem d ajudar-nos mútuament a veure coses que podem fer. I no parlo solament de la Ciència amb majúscula, sinó de la tasca nostra de cada dia, ara i ací. Conèixer-nos i conèixer les nostres possibilitats d estimulació mútua pot ésser una de les finalitats principals de la reunió, juntament amb la d identificar àrees de penombra i reconèixer en quina mesura són afectades pels factors suara esmentats.
PRIMERA PART
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 15-22
UNA MIRADA RETROSPECTIVA DE TRENTA ANYS DES DEL CONTEXT DEL MÓN MICROBIÀ RAMÓN PARÉS Departament de Microbiologia. Facultat de Biologia. Universitat de Barcelona. Adreça per a la correspondència: Departament de Microbiologia. Facultat de Biologia. Universitat de Barcelona. 08071 Barcelona.
IMPRESSIONS PERSONALS SOBRE EL DESENVOLUPAMENT DE LA BIOLOGIA A un microbiòleg amb més de mig segle d activitat, pot semblar-li que en els darrers trenta anys la biologia s ha vist especialment afavorida per un progrés extraordinari en els mitjans analítics i, en general, per uns recursos instrumentals cada vegada més complets i millors. Això és el que em sembla a mi i pot ser que sigui cert. D aquesta manera s ha pogut i es pot anar arribant a determinar directament multitud d aspectes subjacents en els grans avenços que, en el terreny de les idees, s assoliren en un procés accelerat des de començament de segle fins als anys setanta. De fet, la visió intel·lectual que s arribà a configurar permeté construir nous i importants paradigmes que donaven una impressió fascinant de progrés en el coneixement de la matèria viva i suscitaven una gran quantitat de solucions i problemes. A més a més, a causa del la Guerra Civil i de l aïllament d una llarga postguerra,
en el nostre país teníem com a referència una instrucció sovint endarrerida, per la qual cosa, durant les dècades dels cinquanta i dels seixanta, aquesta impressió era sentida aquí encara més fortament. Malgrat la gran quantitat de conseqüències i aplicacions de les noves teories que a l època referida s albiraven, abundaven, però, les conjectures difícils de verificar. Fou aquell subseqüent desenvolupament instrumental i tecnològic en general allò que progressivament permeté obrir les vies cap a les constatacions més i més precises, i cap a aplicacions refinades abans impossibles. És cert que, de tant en tant, unes i altres afloraren la necessitat de més d un retoc conceptual, però, sorprenentment, no gaire importants en la majoria dels casos, sense haver de trencar la coherència del sistema establert. És per això que alguna veu prestigiosa hauria arribat a dir, crec que seriosament i no com a boutade, que d idees importants en biologia, realment noves, n hi ha hagut molt poques després dels anys setan-
16 R. PARÉS
ta i, malgrat la grandíssima aportació de nous coneixements, de vegades hom pensa que pot ben bé ser així, sobretot si es compara amb els progressos de l etapa immediatament anterior. Aquest continu desplegament d instrumental i de noves tècniques a què m estic referint ha donat feina i continuarà donantne de forma aparentment inacabable a un col·lectiu científic atrafegat i en contínua expansió. Fa la impressió, però, que aquest col·lectiu està mogut més per tendències mimètiques dels principals corrents en voga que no pas per allò de los consejos sugeridos por el estudio y la meditación (Ramón y Cajal, 1935). Sens dubte, això pot estar abonat per la peremptorietat de la competència curricular i per les fortes pressions comercials. Recordo que un vell professor de química orgànica no es cansava d exclamar: ¡Aquests afeccionats que es creuen que fan química perquè els han ensenyat a manejar unes quantes màquines completament estranyes al seu món intel·lectual! En tot cas, la dèria de les publicacions i la compra continuada d aparells fa témer que el progrés que en resulti sigui esbiaixat i més quantitatiu que qualitatiu, sobretot quan es contempli amb una perspectiva de cinquanta o cent anys. El pensament biològic dels darrers trenta anys representa una mena d apoteosi de l escala molecular i dels sistemes globals. Encara recordo com els biòlegs d abans miraven amb escepticisme i recel evidents els progressos de la bioquímica, considerant que poc es podia esperar d allò que veien com a pura química dels sucs que es podien separar de la matèria viva. Com a contrapartida, els bioquímics ignoraven el que ara anomenem fenoma o component somàtic de l organisme, com a sistema capaç d utilitzar amb èxit les condicions que trobarà al llarg del temps per sobreviure i reproduir-se en el si d una població natural. De fet seguei-
xen ignorant-ho, com fins i tot també ho fan alguns biòlegs que semblen haver oblidat que el fenoma és l única cosa que té en compte la selecció natural. Pel que fa a la globalització, el pensament biològic es troba en el mateix context que tots els altres corrents globalitzadors del pensament occidental desenvolupats després de la darrera guerra mundial, i interacciona amb quasi tots. No totes les molècules han suscitat el mateix entusiasme. Evidentment, en el boom molecular les proteïnes i els àcids nucleics se n han emportat la palma. En canvi, els glucoconjugats no han tingut tanta sort i han estat molt menys treballats, malgrat la gran importància que semblen tenir, tant des del punt de vista estructural com funcional, en els bacteris i àdhuc en els eucariotes. El model de la seva síntesi, inestable i heterogènia, és ben diferent del de les altres macromolècules i es contraposa a la relativa fidelitat dels sistemes d autoduplicació, transcripció i traducció. Després dels darrers trenta anys, a causa de nous postulats ideològics i dels prejudicis que s han anat establint, tot el coneixement biològic té una lectura bastant diferent de la que s hauria fet abans dels anys setanta. Això, sens dubte, influirà en el desenvolupament futur de la biologia. En tot cas, per aquesta raó no està clar que aquesta sigui l única ni la millor manera en què es podria fer aquest desenvolupament. Tot el que he referit és una breu reflexió, si es vol una mica a la valenta, sobre el desenvolupament de la biologia en el període que ha seguit fins avui des del sisè Col·loqui de la Societat Catalana de Biologia intitulat «Cap on va la Biologia Moderna» que es celebrà l any 1970. Ara voldria afegir-n hi unes altres partint de la meva pròpia participació en aquell acte (Parés, 1971), atenent a l experiència personal al llarg del temps que ha passat.
UNA MIRADA RETROSPECTIVA DE TRENTA ANYS DES DEL CONTEXT DEL MÓN MICROBIÀ 17
DE L ASIMETRIA A LA MICROHETEROGENEÏTAT MOLECULAR En el col·loqui de la SCB del 1970 vaig presentar algunes reflexions sobre l asimetria molecular de la vida. En aquella època estava clar que la síntesi proteica controlada pels àcids nucleics només podria utilitzar L-aminoàcids i que, per tant, la presència de D-aminoàcids en diferents oligopèptids bacterians plantejava la pregunta de si una addició successiva d aminoàcids donaria una síntesi homogènia o bé heterogènia, és a dir, si l ordre dels aminoàcids seria constant o no. Atenent al que es sabia de la composició d antibiòtics com la gramicidina S, la tirocidina i la bacitracina, que contenen D-aminoàcids, en aquell moment pensava que l ordre d aquests es mantindria constant. Això suggeria la possibilitat d algun mecanisme hereditari encara desconegut, perquè, fora del control rigorós que permet la transcripció i la traducció, es feia difícil entendre una biosíntesi homogènia de pèptids amb D-aminoàcids. També vaig presentar un altre exemple encara més interessant i del qual es coneixien més dades. Em refereixo a la mureïna de la paret bacteriana. En aquell moment, tots els microbiòlegs estàvem mig bocabadats pels treballs de Park i de Strominger, que eren d aquells que només es poden fer en una mena d estat de gràcia (Strominger, 1973). Els estafilococs inhibits per la penicil·lina acumulen UDP-GNAc-lactil èter, intermediari de la formació de la mureïna. De fet, el carboxil de l àcid làctic estava unit a un oligopèptid de longitud variable d entre un i cinc aminoàcids. Hi havia una síntesi heterogènia coherent amb una addició inicial de L-Ala, seguida per la de D-glutamat. Després s hi afegiria la L-Lis, si n hi havia de present. A continuació s hi uneix un dipèptid de D-Ala, la qual cosa es pot blo-
quejar amb D-cicloserina. La D-Ala es forma amb una racemasa a partir de la L-Ala, reacció que també és inhibida per la D-cicloserina. L UDP-GNAc-lactil-L-Ala-D-Glu-L-LisD-Ala-D-Ala és l únic que s incorpora a la paret cel·lular, procés que és inhibit per la bacitracina, la vancomicina i la ristocetina. Per tant, en circumstàncies normals, aquest compost és seleccionat per l acceptor i les altres variants que es puguin formar quedarien pràcticament excloses o reduïdes a una petita concentració en equilibri que no es revela per efecte dels inhibidors. Aquesta microheterogeneïtat molecular més o menys críptica podria ser l origen tant de la diversificació de l oligopèptid de la mureïna entre diferents bacteris com de la síntesi d antibiòtics peptídics amb D-aminoàcids. La seva mateixa activitat podria deure s a una inhibició feedback encoberta. L oligopèptid de la mureïna dels estafilococs potser constitueix el primer cas estudiat de biosíntesi d un polipèptid sense ribosoma ni mRNA. No oblidem que també es sabia que els ponts de pentaglicina sí que es formaven a partir del corresponent glicil RNA-transfer. Els àcids teïcoics de la paret cel·lular dels bacteris grampositius, que sovint presenten D-Ala però no oligopèptids, es formen d acord amb una microheterogeneïtat molecular i, probablement, la forma dominant ve determinada per la seva unió covalent amb la mureïna. El lipopolisacàrid (LPS) de la paret cellular dels bacteris gramnegatius també presenta microheterogeneïtat, diferent per al lípid A, el nucli i la cadena O, la qual és la part més específica probablement per causa de la raresa del seus sucres constituents. Els altres factors de selecció de les formes dominants podrien ser la mateixa macromolècula de LPS que es forma més ràpidament i la pròpia inserció a la paret cel·lular. En els darrers deu anys, els àcids lipoteï-
18 R. PARÉS
coics (LTA) i els lipoglucans (LG) dels bacteris grampositius representen un cas manifest de macromolècules de biosíntesi heterogènia (Fischer, 1987, 1993), probablement perquè només estan units a la membrana protoplasmàtica i per interaccions hidrofòbiques amb els residus acilgrassos. Aquí tenim també D-Ala (en els LTA), èsters fosfòrics de la glicerina i heteròsids com en els àcids teïcoics. En el lipoglucan característic de les espècies de Bifidobacterium tenim un (1-5)-ß-D-galactofuranosil lineal lligat a un (1-6)-ß-D-glucopiranosil també lineal, el qual a més a més està unit amb D-Galp(ß13) acil2 Grol que encara presentarà una acilació addicional en una mitjana del 30 %. D altra banda, en la cadena de galactofuranosil hi ha residus de glicerofosfats com branques monomèriques amb posició O-6, repartides de manera aleatòria al llarg de la cadena ocupant-la parcialment. Finalment tenim L-Ala en posició terminal en una proporció del 20 al 50 % (fig. 1) (Fischer, 1994). A part de les diferències entre soques i espècies, trobem en cada tipus cultural una o unes quantes famílies de glicoformes emparentades. La freqüència de cada molècula específica és diferent, i pot ser modulada
durant el creixement i per les condicions culturals. Malgrat la biosíntesi heterogènia dels LTA i LG, els patrons moleculars específics romanen constants. Per tant, hom sospita que directament o indirectament deuen estar controlats pel genoma. És suggeridor en aquest sentit el fet que els bacteris amb LTA tinguin un percentatge de G+C inferior al 50 %, en tant que el lipoglucan es troba en els que tenen una proporció de G+C superior al 50 %. Aparentment, les biosíntesis específiques, estables i homogènies, exigeixen un mecanisme basat en l automultiplicació d alta fidelitat d àcids nucleics. Això no vol dir que aquesta síntesi homogènia no pugui coexistir amb unes biosíntesis heterogènies suficientment controlades per la pròpia interacció que s estableix entre unes i altres. Potser així s assoleix un model funcional menys rígid i més apte per sobreviure als canvis ambientals desfavorables. Cap al principi dels anys vuitanta es sabia que certes molècules de RNA, com les del virus Qß d Escherichia coli, es podien reproduir in vitro sense un motlle de RNA preexistent, en presència de la Qß replicasa. No
FIGURA 1. Patró molecular del lipoglucan (LG) de Bifidobacterium
UNA MIRADA RETROSPECTIVA DE TRENTA ANYS DES DEL CONTEXT DEL MÓN MICROBIÀ 19
obstant això, en aquest cas es produeix un RNA heterogeni, resultat d una autoreplicació amb molts errors. Quan la síntesi prossegueix molt temps, la composició de les molècules formades es va uniformitzant per efecte de l RNA acumulat que actua com a motlle, la qual cosa permet un procés de multiplicació molt ràpid i fidel (Eigen et al., 1981). A més a més, es van seleccionant les molècules que es multipliquen més ràpidament. També s ha assolit la síntesi de l RNA sense replicasa, utilitzant un RNA preformat com a motlle i subunitats monomèriques. La fidelitat de l automultiplicació depèn del tipus de RNA, però sempre és molt limitada, cosa que dóna una certa varietat de molècules d àcid nucleic. En aquest darrer cas la capacitat d acumular i mantenir informació resulta molt petita, en tant que en el sistema RNA replicasa ja es donen menys errors en la multiplicació, si bé el text genètic no pot ultrapassar alguns milers de nucleòtids. Recordi s també que molts virus RNA presenten una variabilitat extraordinàriament alta per causa dels errors que es donen en la multiplicació del seu genoma. Amb el DNA bicatenari les coses són diferents, ja que les seves polimerases poden corregir la còpia i suprimir errors tan eficaçment que permeten textos estables fins de milions de nucleòtids (Steinhauer i Holland, 1987). Així l autoduplicació fiable del DNA potser s hauria derivat d una autoduplicació heterogènia (Sonea i Panisset, 1983), arribant a ser la base d un extens sistema de biosíntesis homogènies. El que no és clar és com s ha arribat a configurar i a mantenir al mateix temps un determinat tipus de biosíntesis heterogènies, característiques i relativament estables per a cada espècie. Probablement, la microheterogeneïtat no ha rebut fins ara tota l atenció que es mereix.
LA DIVERSITAT DELS PROCARIOTES COM A RESULTAT D UN GENOMA OBERT Als anys setanta vèiem els bacteris molt més pròxims als organismes superiors que no pas ara, sobretot pel que fa a l organització dels respectius genomes. En els primers, tot és més petit i compacte. En els segons, els gens estan distribuïts en diversos trossos separats per regions no codificants, on hi ha una gran quantitat de DNA que no se sap perquè serveix. En els eucariotes es troben també pseudogens o gens cadàvers que es passegen entre els veritables gens. Els mateixos sistemes de regulació genètica en uns i altres semblen ben diferents, en els bacteris a l extrem d una seqüència de gens, mentre que en els organismes superiors estan distribuïts regularment en molts blocs. Entre els mateixos procarionts, les diferències del genoma poden ser molt més grans del que es pensava, i és probable que incloguin organismes tan o més distanciats evolutivament entre si com ho puguin estar dels eucarionts. Sembla que els bacteris basen llur capacitat d evolució en un sistema d intercanvi de gens totalment obert. De fet, presentaria certa analogia amb l evolució cultural. En canvi, els eucariotes poden explotar molt poques possibilitats a part de les derivades del seu propi genoma intracel·lular, tant per a la diferenciació com per a l evolució. No obstant això, tenen una capacitat més gran de fer coses noves a partir de deixalles de coses velles pròpies. Els bacteris se serveixen més aviat i amb gran facilitat del material genètic d altres bacteris. Això podria originar dos tipus d evolució diferents, no lineal i molt més ràpida en el cas dels procariotes. La diversitat bioquímica dels bacteris continua constituint un fenomen cada cop més extens, extraordinàriament excitant, sobretot pel fet que, en contra del vell concepte de Winogradsky, no hi ha cap fisiologia in-
20 R. PARÉS
dependent ni aïllada. Els bacteris de l àcid acètic, per exemple, són un grup molt definit de bacils gramnegatius, estrictament aerobis, però trobem un Gluconobacter que pot fermentar glucosa per la via d EntnerDoudoroff, la qual només s havia trobat en algun bacteri anaerobi estricte com Zymomonas mobilis. D altra banda, en una subespècie d Acetobacter la glucosa pot convertir-se en acetat per l anomenada via de les fosfocetolases, que només es coneixia a Bifidobacterium, també un bacteri anaerobi que no té res a veure amb els de l àcid acètic. Tenim així dos bacteris, dues subespècies de dos gèneres estrictament aerobis, que tenen un sistema alternatiu d abastament energètic que és propi de dos anaerobis estrictes diferents i molt peculiars, que en les altres característiques no tenen res que els pugui relacionar amb els bacteris de l àcid acètic. Són una mena de quimeres bioquímiques (Parés i Juárez, 1997). La utilització del piruvat per formar productes més reduïts es troba amplament distribuïda en els microorganismes. La descarboxilació directa a acetaldehid només té lloc als llevats i als bacteris de l àcid acètic. En bacteris facultatius, com E. coli i B. macerans, en absència d oxigen, la funció de la complexa descarboxilació oxidativa queda substituïda per la de la piruvatformiatliasa. En canvi, en els gèneres Clostridium i Desulfovibrio, rigorosament anaerobis, la descarboxilació del piruvat es realitza per efecte del complex piruvat-ferredoxina oxidoreductasa. No obstant això, a Clostridium acidi-urici s utilitza el sistema anteriorment referit que dóna lloc a formiat. O sigui que, enfront d una evident uniformitat del mecanisme bioquímic en cada grup taxonòmic, molt sovint trobem l excepció que utilitza el sistema bioquímic propi d un altre grup. Es podria escriure un llibre sencer amb els exemples coneguts i cada dia se n descobreixen de nous (Parés i Juárez, 1997).
Des dels anys setanta han anat apareixent nous grups fisiològics i se n han anat diversificant molts dels antics. És el cas dels acetògens, els metanògens, el món dels desnitrificants aerobis, les noves sulfurògenes, els degradadors anaerobis de compostos aromàtics, els metilotròfics i els que es desenvolupen sota condicions extremes (Parés i Juárez, 1997). És probable que dins dels procariotes hi hagi diferents tipus d organització i que uns puguin considerar-se més primitius que altres. No obstant això, l evolució lineal i irreversible o els arbres filogenètics no hi resulten aplicables. Conseqüentment, la taxonomia dels procariotes no pot tenir una interpretació historiconatural comparable a la dels eucariotes. L HETEROGENEÏTAT DE LA DESCENDÈNCIA CLONAL DELS PROCARIOTES Pel que fa al treball experimental, en els anys que seguiren el sisè Col·loqui de la SCB vaig dedicar-me a tres temes diferents en aspectes concrets i específics, però que incideixen en el problema de la fluctuació de l expressió gènica en la descendència clonal dels procariotes (Parés, 1988). Un d ells era l heterogeneïtat colonial de la soca C3 de Klebsiella pneumoniae (Parés et al., 1974). Sota unes condicions determinades de creixement sobre un medi mineral amb glucosa, es presenten colònies que acumulen glutamat al voltant i altres que no. Partint de la hipòtesi que això era degut al fet que hi ha cèl·lules excretores i no excretores de glutamat, s arribà a un model que permetia establir que la descendència d una cèl·lula no excretora dóna cèl·lules excretores de glutamat amb una probabilitat per cèl·lula i generació pròxima al 4 %. El procés seria reversible a una velocitat del mateix ordre, per la
UNA MIRADA RETROSPECTIVA DE TRENTA ANYS DES DEL CONTEXT DEL MÓN MICROBIÀ 21
qual cosa s arriba a una heterogeneïtat estable de la població que encaixa amb el fenomen descrit formalment com equilibri mutacional. Naturalment, ni aquí ni en altres casos no es pot tractar de cap mutació, donada l alta velocitat del canvi. En poblacions molt petites hi ha una fluctuació de cèl·lules excretores i no excretores de glutamat. En una població gran hi ha una heterogeneïtat estable dels dos fenotips. L aplicació de l anomenada selecció periòdica de veritables mutants excretores o no excretores es faria impossible, perquè sempre hi ha molts més individus d un i altre fenotip entre els quals hi haurà la forma més adaptada al medi. Les dues formes, excretora i no excretora, són fàcilment detectades perquè el medi no té caràcter selectiu sobre cap d elles. El segon dels temes feia referència a la pèrdua reversible de la capacitat de creixement autotròfic de la soca 2k1 de Pseudomonas taeniospiralis (Lalucat et al., 1982). Aquest bacteri creix autotròficament en medi mineral i atmosfera de gas detonant (A), heterotròficament amb sacarosa (H), i mixotròficament quan en condicions autotròfiques es troba glucosa present en el medi. L anàlisi de poblacions grans va mostrar que hi havia una heterogeneïtat d individus corresponents a tots els fenotips: A+H+M+, A H+M+, A+H M+, A+H+M , A H M+, A H+M i A+H M+. En poblacions petites es posava de manifest la fluctuació de l expressió gènica com en el cas anterior i, per tant, també havíem de suposar un canvi reversible d alta probabilitat. Igualment en aquest cas, la selecció de veritables mutants A , H o M resultaria impossible, perquè sempre seran menys nombrosos que les formes A+, H+ o M+ que s expressen com A , H i M . Finalment, el tercer problema era l expressió del cos R en les partícules kappa i en un bacteri lliure (Lalucat et al., 1979). Les partícules kappa es diferencien d altres endosimbionts de Paramecium aurelia perquè són
els únics que poden presentar en el citoplasma cossos refràctils denominats cossos R (Rbodies). Hi ha partícules kappa amb cossos R i sense cossos R en la mateixa població d endosimbionts. Tots els que no tenen cossos R poden formar-los, però el fenotip R no sempre s expressa, fet que dóna una població heterogènia. La diferència amb els casos anteriorment referits és que els kappa amb R no es poden multiplicar i la infecció del Paramecium es manté exclusivament a través de les formes sense cos refràctil. No obstant això, es pot regular la velocitat de multiplicació de l hoste per reduir molt el nombre d endosimbionts per cèl·lula. Si llavors tornem a passar a les condicions de creixement lent, es pot observar el caràcter fluctuant de l expressió de R fins arribar a la població típica amb heterogeneïtat estable. Amb un bacteri de vida lliure que també forma cossos R s ha pogut arribar a unes conclusions semblants. Si es reflexiona sobre els exemples anteriors hom pot concloure que l expressió fenotípica fluctuant és probablement un fenomen molt general en els bacteris. Si això fos així, podria contribuir a la uniformitat genotípica dels cultius purs en unes determinades condicions, però la descendència clonal estaria constituïda per cèl·lules amb un nombre indefinit de fenotips possibles. Aquests es posarien de manifest sempre que el medi de cultiu no tingués caràcter selectiu, i donarien una mena de diferenciació fenotípica caòtica enfront del que passa en la descendència clonal de l ou d un eucariont. És evident que en els eucariotes l expressió dels gens ha de ser regulada en l espai i en el temps amb gran precisió. L expressió gènica fluctuant pot donar lloc a una diferenciació fenotípica, però seria incompatible amb un desenvolupament ordenat com el d un ou fecundat. Després del que acabo de referir, cal afegir que s ha d avançar més sobre els fenòmens de la fluctuació de l expressió gènica
22 R. PARÉS
en els procariotes per arribar a abastar tota la seva possible significació. No hi ha dubte que posen de manifest que en la descendència de la cèl·lula procariota hi ha una capacitat potencial de diferenciació fenotípica generalment reversible, amb independència de l intercanvi de gens i dels fenòmens adaptatius coneguts. Una població desenvolupada en condicions naturals canviants podria així determinar un gran nombre de fenotips diferents, generat a l atzar i totalment desordenat. En la meva participació al sisè Col·loqui de la SCB vaig parlar també dels tipus de vida possibles i de l origen de la clau genètica. Evidentment dos temes que continuen sent molt especulatius, independentment que allò que vaig dir pugui haver perdut certa vigència. Com en el que acabem de tractar, en tot cas hi trobem l intent de formalitzar el coneixement que pot derivar-se de la percepció de nous i diferents fets, o bé la necessitat d una conjectura de la qual puguin emergir noves idees. Aquest procés intel·lectual és realment bàsic per al progrés del coneixement científic, encara que no sempre sigui afortunat. Jo crec que això seguirà i, per tant, em considero optimista respecte al futur desenvolupament de la biologia, al marge d una acumulació progressiva de nous coneixements, més o menys rellevants, dins el marc dels paradigmes establerts. A part de la millor comprensió del propi paradigma i del seu abast, ben segur que aquesta acumulació anirà donant profitoses aplicacions.
BIBLIOGRAFIA EIGEN, M.; W. GARDINER; P. SCHUSTER; R. WINKLER-OSWATITSCH (1981). «Origen de la información genética». Investigación y Ciencia, núm. 57, pàg. 62-81. FISCHER, W. (1987). «Lipoteichoic acid of Bifidobacterium bifidum subsp. pennsylvanicum DSM 20239: A lipoglycan with monoglycerophosphate side chains». Eur. J. Biochem., núm. 165, pàg. 639-646. (1993). «Molecular analysis of lipid macroanphiphiles by hydrophobic interaction chromatography». Anal. Biochem., núm. 208, pàg. 49-56. (1994). «Lipoteichoic acids and lipoglycans». Bacterial Cell Wall A: GHUYSEN I.-M.; R. HAKENBECK, (ed.). Elsevier Science B. V., pàg. 199-215. LALUCAT, J.; O. MEYER; F. MEYER; R. PARÉS; H. G. SCHLEGEL (1979). «R-bodies in Newly Isolated Free Living Hydrogen Oxidizing Bacteria». Arch. Microbiol., núm. 121, pàg. 9-15. LALUCAT, J.; R. PARÉS; H. G. SCHLEGEL (1982). «Pseudomonas taeniospirallis sp. nov. and R-body-containing hydrogen bacterium». International Journal of Systematic Bacteriology, núm. 32, pàg. 332-338. PARÉS, R. (1971). «Asimetria molecular de la vida i possibilitat de l enantivida». A: Cap on va la Biologia moderna. Barcelona: Societat Catalana de Biologia. (Col·loquis; VI), pàg. 13-39. PARÉS, R.; J. GUINEA; S. HERNÁNDEZ; J. VALOIX; J. JOFRE (1974). «A new episomic element controlling fermentative metabolism and excretion of aminoacids by Citrobacter intermedium C3». Jour. of Bacteriol., núm. 129, pàg. 9-18. PARÉS, R. (1988). «Fluctuació de l expressió gènica en la descendència clonal de procariotes en condicions no selectives». Memorias de la Real Academia de Ciencias y Artes de Barcelona, vol. XLVIII, núm. 6, pàg. 263294. PARÉS, R.; A. JUÁREZ (1997). Bioquímica de los microorganismos. Barcelona: Reverté. RAMÓN Y CAJAL, S. (1935). Reglas y consejos para la investigación científica. 7a edició. Madrid: Librería F. Betrán. SONEA, S.; M. PANISSET (1983). A New Bacteriology. Boston: Jones and Bartlett Publishers. STEINHAUER, D. A.; J. J. HOLLAND (1987). «Rapid evolution of RNA viruses». Ann. Rev. Microbiol., núm. 41, pàg. 409-433. STROMINGER, J. L. (1973). «Actions of penicillin and other antibiotics on bacterial cell wall synthesis». John Hopkins Met. J., núm. 133, pàg. 63-81.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 23-33
L IMPARABLE ASCENS CIENTÍFIC I SOCIAL DE LA BIOLOGIA AL DARRER TERÇ DEL SEGLE XX JAUME BAGUÑÀ Departament de Genètica. Facultat de Biologia. Universitat de Barcelona. Adreça per a la correspondència: Departament de Genètica. Facultat de Biologia. Universitat de Barcelona. 08071 Barcelona. Telèfon: 34-93-402 14 97. Fax: 34-93-411 09 69. Adreça electrònica: bagunya@porthos.bio.ub.es
LA SESSIÓ DE GENER DEL 1970 DE LA SOCIETAT CATALANA DE BIOLOGIA «CAP ON VA LA BIOLOGIA MODERNA?». EL PERQUÈ DEL TÍTOL La sessió de la SCB de gener del 1970 (ara fa trenta anys) que donà lloc a la publicació del 1971 fou un bon reflex de l estat de la ciència a Catalunya en aquells moments. Aquella sessió pretenia estimular el debat sobre alguns dels punts més calents de la biologia d aleshores, biologia de la qual pràcticament res no es feia a casa nostra. La recerca a la Universitat era molt precària donada la manca de tradició i de mitjans. Alhora, la societat era molt poc sensible a la ciència i als avenços científics. Tot i això, hi havia gent amb inquietuds, com els participants a la sessió de la SCB, a la qual em sento orgullós d haver contribuït. El títol de la sessió del 1970 «Cap on va la biologia moderna?», pot semblar avui en dia estrany i un pèl pe-
tulant. Però en aquells moments i en aquell país, això de moderna pretenia despertar i estimular la gent i alhora duia una crítica implícita a la biologia tradicional que majoritàriament es feia a casa nostra. La situació actual és prou diferent, ja que tot i no estar en el millor dels mons, les possibilitats de fer coses són més grans. Avui en dia un títol equivalent hauria de ser la biologia al proper mil·leni, la biologia del segle XXI, o quelcom semblant. IMPRESSIONS PERSONALS DE LA SESSIÓ: TRES DIES AL CEL I TORNADA AL PURGATORI En l àmbit personal, tinc vivències molt clares de la sessió de la SCB. Als meus vint-isis anys, jo era el jove, mentre que gent il·lustre, com els Drs. Margalef, Prevosti i Parés, tots ells lleugerament per sobre o per
24 J. BAGUÑÀ
sota dels cinquanta anys, eren les «estrelles» de la Facultat de Biologia, ja que representaven els departaments més joves i amb més empenta. El departament de genètica s havia createl 1963, el de microbiologia cap al 1964 i el d ecologia el 1967 aproximadament. Que aquests departaments, que representaven disciplines molt consolidades a altres indrets, es creessin a Catalunya i a la resta de l Estat a la dècada dels seixanta és el millor exemple del desesperant retard de la ciència al nostre país. El decurs de la sessió fou molt interessant, però més interessants foren encara les discussions, molt vives i obertes. En acabar, em trobava en estat exultant; havia compartit l espai i el temps amb gent que admirava, els havia sovint contradit, havíem argumentat conjuntament, i per damunt de tot, m ho havia passat bé. L endemà, però, em vaig encarar de nou amb la crua i, perquè no dir-ho, trista realitat: fer la tesi doctoral en unes condicions molt precàries i amb escassos mitjans, malgrat l interès genuí que el meu director de tesi, alhora cap del departament, Dr. Prevosti, tenia que es fessin «coses» de desenvolupament i regeneració. El departament de genètica de 1970 era al 2n pis del vell edifici de plaça Universitat ocupant l espai (100-120 m2 com a molt) que havien deixat els físics en anar-se n al nou edifici de Pedralbes (nosaltres trigaríem encara dotze anys a inaugurar la nova Facultat de Biologia). En paraules d un amic meu, la sensació en entrar al departament era de garatge rònec. El meu espai feia uns vuit o deu metres quadrats delimitats per un envà de dos metres d alt (el sostre del departament era a cinc o sis metres) i algun armari. Una vella taula de fusta sense calaixos procedent de pràctiques de geologia feia alhora de taula d estudi i de taula de laboratori. Al llarg de quatre anys, allà vaig fer tots els experiments de la tesi. Al meu davant hi havia un finestral immens que, teòricament, donava a un pati interior: l havien tapat
temps enrere. Tota la tesi, doncs, la vaig fer de cara a la paret i amb llum artificial. No és estrany que la sessió de la SCB del 1970, feta, em sembla, a la biblioteca de l Institut d Investigacions Pesqueres (ara Institut de Ciències del Mar), que vessava de llum, em semblés el setè cel. En acabar, però, vaig entrar de nou al purgatori. Tot i així, i ho dic sense cap nostàlgia, aquells anys van ser, com solen ésser els anys d aprenentatge, molt interessants. EL DESENVOLUPAMENT DE LA BIOLOGIA AL DARRER TERÇ DEL SEGLE XX: PREVISIBLE EN INTENSITAT PERÒ NO EN L ABAST Quan es reflexiona honestament sobre el que ha esdevingut la biologia des de 1970 fins ara, crec que se n podia haver previst la intensitat del desenvolupament, però no l immens abast que ha tingut, molt més gran del que mai no hauria sospitat. L avenç clau ha estat el desenvolupament de mètodes i tècniques d anàlisi reduccionistes que han permès arribar a definir la majoria de processos biològics a l escala dels seus components més elementals: cèl·lules, molècules i gens. Tot i que amb el mètode reduccionista podríem anar encara més avall, és a dir, tractar de definir els processos biològics a escala d interaccions atòmiques, crec que és bàsicament innecessari. L enfocament reduccionista ha demostrat d una manera molt efectiva que tots els éssers vius funcionen de manera extraordinàriament semblant tant en l àmbit informacional com en l àmbit físic i ha subministrat per primer cop en la història de la biologia eines molt efectives per manipular tant la informació com el substrat físic dels éssers vius. Tot això ha representat una autèntica revolució en biologia i és el que la fa tant atractiva per als estudiants d avui.
L'IMPARABLE ASCENS CIENTÍFIC I SOCIAL DE LA BIOLOGIA AL DARRER TERÇ DEL SEGLE XX 25
LA REVOLUCIÓ REDUCCIONISTA EN BIOLOGIA: EL GRAN DESENVOLUPAMENT DE LA BIOLOGIA CEL·LULAR I MOLECULAR I DE LA GENÈTICA L enfocament reduccionista predominant a la biologia de la segona meitat del segle XX ha fet que els grans avenços es focalitzessin en els camps relacionats amb les unitats elementals: cèl·lules, molècules i gens. És a dir, és en la biologia cel·lular, en la biologia molecular (incloent-hi la microbiologia) i molt especialment en la genètica (ja que els gens són alhora entitats físiques i informacionals) on s han fet els grans avenços. Això no vol dir que les disciplines més clàssiques i macroscòpiques (zoologia, botànica, ecologia, fisiologies, etc.) no hagin avançat; el que passa és que ho han fet en un grau menor. El mètode reduccionista ha generat una revolució dual: una de conceptual i una altra de tecnològica. En l àmbit conceptual, la revolució ha girat al voltant de tres o quatre conceptes clau. En primer lloc, la genètica i la biologia molecular han demostrat que l emmagatzematge, la transmissió, la replicació i l expressió de la informació genètica (genotip) necessària per a fer els organismes i per a mantenir l estructura i la funció d embrions i adults (fenotip) opera a través de mecanismes semblants en tots els organismes. En segon lloc, la genètica del desenvolupament d organismes model com la mosca Drosophila, el cuc Caenorhabditis elegans, la planta Arabidopsis i, en grau menor, el ratolí, ha identificat els gens clau del desenvolupament i n ha estabert les jerarquies i el programa generatiu. Paral·lelament, el desenvolupament explosiu de les tècniques del DNA recombinant i de l enginyeria genètica han permès, mitjançant el crivellatge de genoteques i experiments de transfecció i transformació, trobar en molts
altres organismes (entre els quals l home) gens homòlegs als trobats en els organismes model. Finalment, la genètica, la biologia molecular i cel·lular i la bioquímica han permès analitzar com els gens i els seus productes s interrelacionen en vies de senyalització i d activació gènica a la base de molts fenòmens o propietats cel·lulars i supracel·lulars. Això ha permès connectar per primer cop gens, molècules i comportament cel·lular. És a dir, els gens contenen informació per a la síntesi de molècules, l expressió i combinatòria diferencial de les quals permet explicar els canvis en determinats paràmetres cel·lulars (proliferació, canvi de forma, moviment, diferenciació, interacció cèl·lula-cèl·lula) que són la base dels processos macroscòpics que duen a la forma i funció finals dels organismes de cada espècie. L estudi comparat dels gens que controlen el desenvolupament embrionari i l estructura (morfologia) i funció (metabolisme i fisiologia) dels organismes adults ha dut a un dels avenços conceptuals més importants, i alhora sorprenents, d aquests darrers vint-i-cinc anys: constatar que tot i l enorme diversitat de formes dels organismes, la seva base genètica és molt semblant. Dit d una altra manera, els gens que intervenen en processos clau del desenvolupament de cada espècie estan extremadament conservats entre espècies tan diferents com són cucs, insectes o mamífers, l home inclòs. D altra banda, els senyals i les vies de transducció dels senyals cap a l interior de les cèl·lules, clau per als fenòmens de comunicació i interacció cel·lulars, són molt semblants entre els unicel·lulars i tots el multicel·lulars. Això indica que els elements informacionals per «fer» organismes i per «fer-los funcionar» són semblants i que els processos generatius són tanmateix molt antics i semblants. D ací neix la paradoxa no resolta encara: com és que elements sem-
26 J. BAGUÑÀ
blants poden generar morfologies i fisiologies diferents? La resolució d aquesta paradoxa, almenys en l àmbit conceptual, és que al llarg de l evolució aquests elements semblants s han combinat diferencialment a l espai i en el temps i han generat diferents espècies amb diferents morfologies i funcions. Així, l evolució de les espècies s hauria donat més per un procés de «bricolatge» i combinatòria d elements genètics ja existents que per un procés d invenció de nous gens. La segona revolució a la biologia del darrer terç del segle XX ha estat tecnològica. La introducció de les tècniques del DNA recombinant i l enginyeria genètica han permès al biòleg analitzar i manipular els genomes de multitud d organismes de manera absolutament insospitada. L anàlisi de genomes ha permès descriure a escala molecular multitud de processos biològics que van des dels ecològics (ecologia molecular, genètica molecular de poblacions) i evolutius (filogènies moleculars, evolució molecular dels gens) fins als més microscòpics. A més a més, ha beneficiat extraordinàriament camps fins fa poc considerats inabastables, l exemple més palès dels quals és la biologia i la genètica humanes i les seves aplicacions a la medicina bàsica i clínica. S han identificat gens responsables de diverses malalties, que han estat identificats i caracteritzats prèviament en organismes model i se n ha conegut la funció, cosa que ha permès postular la funció que realitzen a l organisme humà i entreveure com la seva alteració o mancança provoquen les síndromes clíniques. Al seu torn, la manipulació dels genomes mitjançant transformació i transgènia està essent la base de la biotecnologia del futur, àrea que serà sens dubte la més important en la biologia del segle XXI.
EL PAS DE LA BIOLOGIA «TOVA», A POSTERIORI I POC PREDICTIVA A LA BIOLOGIA «DURA» I PREDICTIVA Ambdues revolucions, la conceptual i la tecnològica, han fet canviar la biologia. Fins no fa gaire, la biologia era la ciència de la diversitat; és a dir, una ciència l objectiu de la qual semblava ser descriure i, quan era possible, explicar les diferents adaptacions tant morfològiques com funcionals que cada espècie animal o vegetal presentava en l entorn que vivia. En altres paraules, la biologia es delia per les singularitats, per allò diferent, pel que diferencia un organisme de l altre, i el biòleg era un especialista en un organisme o en un grup, en un procés o en un fenomen, sense gaire connexió amb altres biòlegs que estudiaven altres grups o fenòmens. Durant molt de temps la biologia es mantingué com una ciència fragmentada, una ciència tova, amb molt poca capacitat de predicció, i on cada organisme i cada procés semblaven diferents dels altres. La causa bàsica n és que els sistemes biològics són complexos i contingents; és a dir, fruit d una complexa història evolutiva. Les úniques regularitats o invariàncies en biologia eren els gens, dels quals només se n coneixia el comportament mendelià, el metabolisme cel·lular, determinats mecanismes cel·lulars com la mitosi i la meiosi o determinades propietats d organizació dels ecosistemes; tots ells massa allunyats, per dalt o per baix, d allò fàcilment estudiable: el fenotip, la morfologia. L únic principi integrador en biologia era la teoria de l evolució per selecció natural. Com sovint s ha dit, aquesta teoria ho explica tot, però sempre ho fa a posteriori. És a dir, sigui quin sigui el tipus d adaptació i sigui quin sigui el nivell d estudi, sempre podem explicar que aquest o aquell caràcter o aquella característica s ha seleccionat per optimitzar una determinada estructura, funció o procés en un entorn con-
L'IMPARABLE ASCENS CIENTÍFIC I SOCIAL DE LA BIOLOGIA AL DARRER TERÇ DEL SEGLE XX 27
cret, real o imaginari. Això fa de la teoria de l evolució per selecció natural una teoria irritantment tautològica i incompleta i, el que és pitjor, irritantment senzilla, com solen ser les grans idees i els grans conceptes. Tan senzilla és, que no pocs biòlegs, bàsicament els autoanomenats biòlegs teòrics, han cregut i creuen encara que hi ha d haver altres principis d organització necessaris per explicar la complexitat i l evolució dels sistemes biològics. Particularment, no crec necessari postular nous principis. El que succeeix és que, tant en el passat com encara avui en dia, la distància que separa els gens i la biologia molecular de l evolució i l ecologia és massa gran, tant com la impaciència de certs científics per voler deduir lleis generals a partir de coneixements o dades excessivament incompletes. El mètode reduccionista ha canviat aquest estat de coses en definir per primer cop el que és invariant en biologia: allò que, malgrat l evident diversitat morfològica i funcional, tenen en comú tots els organismes. De l estudi de les interaccions entre els elements invariants d un nivell cal esperarne la comprensió de les propietats del nivell superior i deduir-ne la seva gramàtica generativa, i així successivament per a cada nivell fins arribar als nivells de l evolució i l ecologia. Un cop s entengui la gramàtica generativa del desenvolupament embrionari, estarem en condicions de predir el que resultaria de l acció, en un genoma concret, d un programa específic d activació gènica. No hi ha dubte que, a la llarga, això durà a «dissenyar» espècies a la carta i permetrà entendre com determinades morfologies s han originat al llarg de l evolució. Altrament, per arribar a comprendre el significat profund del que s entén per adaptació i optimització d una morfologia o d una funció, s haurà de reformular i precisar el concepte de selecció natural. En concret, s haurà de respondre a una pregunta clau: què està me-
surant la selecció natural? A més a més, caldrà reformular les relacions de la selecció natural amb el fluxos i intercanvis de materia, energia i informació a cada nivell d organització. Tot això està convertint la biologia, i ho farà molt més en el futur, en una ciència de la invariància amb capacitat de predicció. En altres paraules, la biologia s està començant a assemblar a una ciència dura com ho són la física i la química. LA BIOLOGIA AL SEGLE XXI: DE L ENFOCAMENT REDUCCIONISTA A L ENFOCAMENT SINTÈTIC. LES ÀREES EMERGENTS Esgotat l enfocament reduccionista, la biologia del futur es desenvoluparà emprant el mètode sintètic, integrador, predictiu. Això vol dir que les àrees emergents seran, en l àmbit conceptual i en primer lloc, la genètica funcional (la genòmica) i per extensió la biologia funcional. Definits, ja sigui pel seu fenotip mutant, ja sigui per clonatge, centenars o milers de gens a diferents espècies, el que cal ara és saber què fan; és a dir, saber quin producte codifiquen i quina funció té aquest producte. Això requerirà saber quins altres gens regula o amb quins productes gènics interacciona i, alhora, per qui és regulat. Aplicant aquesta lògica a diferents processos com poden ser la segmentació axial, la formació del tub neural, la transducció de la llum, el cicle cel·lular, etc., arribarem a definir el programa generatiu, lineal o cíclic, de cada un d aquests processos amb els elements que hi intervenen i les seves interaccions en l espai i en el temps. La culminació d aquests estudis, lluny encara, serà arribar a explicar les funcions de l òrgan més complex que coneixem, el cervell, la qual cosa subministrarà una clara base biològica a la psicologia i impulsarà una altra gran àrea de futur de la biologia: les neurociències.
28 J. BAGUÑÀ
Aquest avenç no serà possible sense el concurs decisiu de la bioinformàtica i de la biocomputació, essencials per donar sentit a l immens cabal de dades ja existent en l àmbit informacional. A més, són imprescindibles per a formular simulacions de gens, xarxes de gens, cadenes de transducció de senyals, cèl·lules, neurones i organismes, que ajudin a entendre el funcionament de qualsevol procés biològic. Sense la biocomputació, l avenç conceptual sintètic serà impossible. Una altra àrea, extremadament integradora serà la comprensió del funcionament dels ecosistemes que haurà de maridar la biologia molecular i la genètica amb la biologia de poblacions i els cicles naturals. Calen moltes més dades sobre com els diferents elements d un ecosistema interaccionen i amb quina força i amb quina dinàmica espaciotemporal ho fan. A més a més, cal saber com els organismes s acoblen a les regularitats fisicoquímiques de l entorn, n extrauen informació i s hi anticipen, i el paper que la variabilitat genètica té en tot això. Finalment, una altra àrea conceptualment important resultarà de la unió entre la genètica, la biologia molecular, el desenvolupament, l ecologia i l evolució per tal d explicar la gènesi i l evolució morfològica i funcional dels grans grups d organismes. La unió de la genètica, la biologia molecular i el desenvolupament està duent ja a definir una gramàtica generativa de com es fan els organismes. Un cop conegut això, estarem en condicions de preguntar-nos i de respondre a la qüestió de com han divergit les espècies en l aspecte morfològic i funcional i quin ha estat el paper dels gens. Això ens durà a la veritable teoria sintètica de l evolució i a poder entendre els mecanismes de gènesi de la biodiversitat, la qual cosa seria de gran interès per dissenyar estratègies adequades de conservació de la natura. D altra banda, aquests coneixements serviran, juntament amb les noves tècniques biotecnolò-
giques, per «fabricar» nous organismes perfectament adaptats al seu entorn. Pel que fa a la tecnologia, el desenvolupament consistirà en inventar noves eines biotecnològiques i en perfeccionar les ja existents, ambdues en la seva accepció més àmplia, i adreçar-les a dos sectors clau: l agroalimentari i el biomèdic. Com a objectius concrets, crec que seran importants, entre d altres, la gènesi in vitro de tot tipus de teixits i òrgans a partir de cèl·lules soca del propi individu que servirien per reemplaçar teixits alterats; les noves tècniques de reproducció artificial (clonatge inclòs) que desplaçaran en molts casos els mètodes clàssics; l ús creixent de tècniques físiques, no invasives, d anàlisi de l activitat biològica emprant tècniques diverses (RMN, TAC, PET, cirurgia molecular...) que arribaran per microminiaturització a la detecció cel·lular, subcel·lular i molecular d aquesta activitat per més endavant controlar-la i modificar-la en aquells casos, com el càncer, patològics per a l individu, i la producció d organismes transgènics cada cop més sofisticats, segurs i manejables amb aplicacions en tots els àmbits de la biotecnologia. Tot i que aquests són els camps tant bàsics com aplicats, on es concentraran de ben segur l interès i els diners, hi ha tres o quatre àrees, no precisament de moda, que no s haurien de deixar de banda. Des d una perspectiva conceptual molt bàsica, és important distingir en tots els àmbits, i tractar d integrar millor els conceptes d informació i de matèria, que sovint es confonen. En segon lloc, caldria una millor integració entre física i biologia, en especial en dos camps concrets: 1) en l ús de mètodes i tècniques físiques per a la detecció i el control de l activitat biològica, i 2) en l estudi profund dels fluxos de matèria i energia i de com afecten l organització general dels sistemes biològics. Un tercer camp una mica oblidat, per la seva dificultat i el seu aparent estaticisme, és
L'IMPARABLE ASCENS CIENTÍFIC I SOCIAL DE LA BIOLOGIA AL DARRER TERÇ DEL SEGLE XX 29
la paleontologia, tot i fornir-nos l únic registre històric, real, del que va passar. El seu estudi, particularment en allò referent a micropaleontologia i a les tècniques de datació, serà imprescindible per a un bon coneixement de l origen de la vida a la Terra, de l origen dels primers éssers vius, i de l origen i diversificació dels grans grups d organismes, l home inclòs. Finalment, caldria no descurar la taxonomia. La preocupació per la biodiversitat i la conservació de la natura ha d anar acompanyada per la formació d experts que reconeguin la varietat existent a la natura. L ofici de taxònom està, però, canviant, i ha de canviar encara més, perquè junt als coneixements morfològics, estructurals, del grup o grups en què s és expert, caldrà dominar també les noves eines que la biologia molecular i la genètica estan oferint per estimar la variabilitat genètica, que és el substrat de la variabilitat morfològica, i per mesurar el grau de parentiu entre els diferents tàxons. LA TRANSFORMACIÓ SOCIAL DEL BIÒLEG. DE L EXCENTRICITAT I LA MARGINALITAT DELS SEIXANTA A LA CREIXENT RESPECTABILITAT SOCIAL DELS NORANTA La percepció social del biòleg ha variat considerablement en els darrers anys. Als anys seixanta, un estudiant de biologia era un excèntric caçador de papallones, cuques o bolets, una noia o un noi que no servia per a coses elevades com enginyeria, arquitectura o advocacia, o per als negocis. Quan vaig comunicar a la família que faria biologia, la part més empresarial i marinera va pensar, sense dir-m ho, que allò no servia per a res, o em va començar a preguntar si estudiaria les sardines i altres peixos. La part femenina em va començar a demanar consell sobre jardineria o malalties diverses de plantes. A cada
reunió familiar es repetia la mateixa història sobre sardines, papallones i plantes, situació que aguantava al més estoicament possible. Quan li vaig dir al meu pare, va abaixar el cap i el va moure de banda a banda tot dient «no ho sé fill, no ho sé... tota la vida seràs un cul llogat». I és que ell era un petit empresari i no un funcionari; és a dir, era un home lliure. Malgrat tot, em va deixar fer i em va pagar els estudis, la qual cosa li he agraït sempre profundament. Això de les noies ho esmento perque la proporció n era molt elevada. Aquest fet classificava la carrera de biologia un pèl despectivament, tot s ha de dir, com a carrera tova i típica de noies, respecte de les carreres dures típicament masculines. I això del biòleg com a persona no apta per a realitzar tasques més elevades era el sentiment corrent, almenys en el col·legi on vaig fer el batxillerat, els Jesuites de Sarrià, on es formava part de la futura elit dirigent del país que, lògicament, anaven per advocats, empresaris, metges, enginyers o arquitectes. Lligant tots aquests trets, un estudiant de biologia a la dècada dels seixanta era un inútil excèntric segurament destinat a malviure de l ensenyament o d una editorial. Això darrer era prou cert. La percepció social actual del biòleg ha canviat força i canviarà molt més en el futur. La raó és senzilla: la biologia està prenent un rol cada cop més important en la vida de la gent. Des dels problemes relacionats amb l entorn, el medi ambient i la conservació de la natura fins a les notícies diàries on es revela que aquest gen és important per això i aquell altre per allò, passant per la seqüenciació de genomes de diferents animals i plantes, l home inclòs, el clonatge d éssers humans, ratolins o cucs, i la realitat dels aliments transgènics, la gent comença a saber que darrera d això hi ha uns professionals, anomenats biòlegs, responsables, per bé o per mal, de tot aquest enrenou. A les reunions familiars, ara ja no gosen preguntar-me sobre sardines o
30 J. BAGUÑÀ
plantes sinó que amb un cert respecte s interessen per una o altra malaltia i els gens que la controlen i mostren una respectuosa admiració, tenyida d incredulitat, quan els comento que els cucs i l home tenen un 40 % de gens en comú. L inútil excèntric dels seixanta s ha tornat socialment respectable, tot i que ens falta encara bastant per assolir el nivell social del metge, l advocat o l enginyer. Però hi arribarem... ja ho veureu! L IMPACTE DE LA BIOLOGIA SOBRE LA SOCIETAT DEL FUTUR. EL CAS CATALÀ: EL BIÒLEG EN TERRA DE LLETRAFERITS En què beneficiaran l individu i la societat els avenços de la biologia del futur? Personalment, crec molt agosarat fer prediccions sobre incidències socials d una disciplina científica i francament no m agrada fer-ne. Però posats a dir quelcom, és evident que tots els avenços descrits canviaran la vida de la gent i la societat. La canviaran segurament en el fet que la gent viurà més i en millors condicions; ens agradi o no, sabrem coses molt íntimes (és a dir genètiques) de nosaltres mateixos ja des que naixem, coses que ens podran condicionar força, i que faran la vida menys sorprenent i segurament menys divertida; es podran experimentar controladament sensacions virtuals de tota mena, i moltes altres coses difícils de predir. És també evident que el poder de manipulació de la biologia i de la biotecnologia s haura de regular i controlar amb cura per evitarne els excessos ja previstos en no poques obres de ciència-ficció. Si difícil és predir com la biologia afectarà l individu i la societat, més difícil és saber com pot afectar la cultura i la globalització. A Catalunya i a la resta de l Estat espanyol em donaria per satisfet si la biologia i la ciència en general tinguessin un ressò
i un paper social més important del que ara tenen, ja que, actualment, la ciència i els científics catalans pesen molt poc, tant en els nuclis de decisió com en els mitjans de comunicació. En aquests darrers, tot i un cert increment recent, la ciència hi té encara una presència escassa i quan hi surt el tractament és sovint superficial i no excessivament professional. Això fa palès, de nou, que Catalunya és un país de lletres o més aviat de lletraferits com diu sovint el Dr. Margalef. Comparem si no la desigual cobertura que pot rebre l estat de la recerca a Catalunya o una troballa científica d interès amb la que rep la publicació dels darrers llibres, de desigual qualitat literària, de Terenci Moix, Pere Gimferrer, Vázquez Montalbán, Rosa Regàs o Joan Barril, l opinió de Bohigas o de Bofill sobre tal o qual obra a Barcelona, o l actuació d alguna vella glòria de la cançó catalana. Si volem ser un país modern, això ha de canviar. Tant en l àmbit català com en un àmbit cultural més global, crec extremadament necessari per als científics comunicar-se molt més amb la societat, no sols sobre el contingut de la seva recerca i la dels altres, i sobre l ús i abús que se n pot fer, sinó també del que la pròpia recerca diu sobre les limitacions tant corporals com mentals dels éssers humans. Això és particularment important per tal d informar amb molt rigor la societat sobre els propis descobriments científics i sobre el seu abast i conseqüències. Un àmbit molt important per incidir en això dit anteriorment és l educació. Si a nivell de primària i de secundària tots els joves senten parlar, amb més o menys grau, de biologia, la seva presència s esvaeix un cop s arriba a la universitat, llevat, lògicament, d aquells que estudien biologia, medicina i farmàcia. Els estudiants de dret, economia, empresarials, arquitectura o qualsevol de les enginyeries no senten ni saben res de biologia ni de ciència en general. Aquest fet és particularment negatiu perquè
L'IMPARABLE ASCENS CIENTÍFIC I SOCIAL DE LA BIOLOGIA AL DARRER TERÇ DEL SEGLE XX 31
els manté molt poc sensibles a tot el que fa referència a la recerca, llevat que pugui servir per guanyar diners o vots. I aquesta poca sensibilitat és molt més greu quan es pensa que són precisament advocats, empresaris, economistes, enginyers i altres els que ocupen bona part dels escons dels Parlaments d arreu. Fóra, per tant, particularment necessari introduir en els currículums de les anomenades carreres de lletres elements de ciències i de biologia en particular. Si se m preguntés què introduiria de biologia a economia, empresarials o enginyeria, diria que ecologia (fluxos de matèria i energia; dinàmica de poblacions), genètica (el DNA; relació genotip/fenotip; què són i què fan els gens?; principis bàsics d enginyeria genètica), i evolució (estratègies de reproducció i presa de decisions; el paper de la selecció natural). Als enginyers en concret, els faria estudiar, a part del que acabo d esmentar, una mena de bioenginyeria que hauria d incloure diagrames de presa de decisions basats en criteris recurrents de selecció, construcció i optimització de xarxes d elements (metabòlits, gens, cèl·lules, neurones, individus,...) i biocomputació. Als economistes tampoc no els faria gens de mal rebre alguns elements de psicologia. Estic segur que les seves prediccions, avui francament caòtiques, serien més precises. I als estudiants de dret no els faria cap mal saber una mica de genètica i d ecologia. Al seu torn, crec que fóra bo que els estudiants de biologia, medicina i farmàcia rebessin nocions bàsiques d economia, dret i, per què no, d enginyeria. L IMPACTE DE LA SOCIETAT EN LA BIOLOGIA DEL FUTUR. EL CAS CATALÀ: UNA POLÍTICA DE RECERCA DE POCA VOLADA La societat i el seu braç executor, el govern, saben molt bé que la ciència és útil, ja
que ha desenvolupat un seguit de mètodes eficaços per a resoldre un bon nombre de problemes. Com a bona tresorera, la societat exigeix del seu braç executor, el govern, generositat per a la ciència i l activitat científica però alhora resultats ràpids, a la vista. Aquesta exigència és en certa manera contrària a la pròpia naturalesa de l activitat científica, i font de no pocs conflictes. El principal és el clàssic però fals dilema entre ciència bàsica, pura o dirigida per la curiositat i ciència aplicada, estratègica o orientada. Aquest debat ha fet córrer rius de tinta sense arribar a cap solució definitiva. Per a mi, i no sóc el primer a dir-ho, el problema és fals i la solució senzilla. Com que la ciència tracta de respondre preguntes o problemes, un projecte científic s hauria de jutjar no per si és aplicat, bàsic estratègic o bàsic pur, sinó per la importància o l interès del problema al qual s adreça i per la qualitat de les solucions que ofereix. És desitjable, doncs, arribar a un equilibri entre ciència bàsica i ciència aplicada que, tot satisfent les necessitats a curt termini i la pressió de benestar de la societat, no oblidi potenciar la curiositat del científic, que és la base del progrés a llarg termini. De fet, la pròpia societat està ja actuant, pressionant, sobre les activitats del biòleg. No pocs programes de recerca estan avui en dia mediatitzats per empreses farmacèutiques, per determinades demandes socials i pels governs, per tal d investigar aquesta o aquella molècula o vacuna, per tal de detectar i diagnosticar a escala genètica i molecular determinades malalties humanes, per millorar la productivitat de determinat procés industrial, o per preservar determinat indret, entorn o espècie animal i vegetal en procés d extinció. Això està mediatitzant la mateixa activitat del científic, que veu que per obtenir diners per investigar, ha d investigar coses concretes, generalment de caire aplicat, industrial, mediambiental o
32 J. BAGUÑÀ
mèdic. Això és en principi perfectament justificable si no arribés, cosa que ja està succeint, a coartar la mateixa independència del científic i, el que és pitjor, a allunyar-lo dels problemes biològics bàsics. Al nostre país que, recordem-ho, és un país que no ha arribat ni de bon troç als nivells de despesa dels països occidentals amb què tant ens agrada comparar-nos, és cada cop més fàcil obtenir diners per fer recerques pretesament aplicades sobre biomedicina o conservació que per investigar determinats problemes bàsics. És el que jo anomenaria «recerca de peus a terra o de poca volada» en contraposició a la recerca bàsica que podríem qualificar de «recerca somiatruites o d alta volada». Això ha generat una ciència poc original, d imitació, pretesament social o pretesament ecològica, que res o poc aporta a teixir la bastida de recerca bàsica clau per posar-nos en el mapa de les grans potències científiques. Mentre altres països (Estats Units, Anglaterra, Japó...) han deixat enrere el seu passat reaganià o thatcherià, que va potenciar la ciència aplicada en detriment de la bàsica, i s estan abocant a projectes de caire bàsic molt general, l Estat espanyol (i Catalunya per extensió) està seguint una miop política de ciència aplicada que poc ajuda les empreses a qui pretesament es vol ajudar i molt poc a la ciència bàsica. En resum, a Catalunya hi ha una alarmant manca de política científica. D altra banda, els mitjans de comunicació catalans donen un tractament relativament marginal a la ciència. Els diaris, llevat del principal diari estatal, donen poca cobertura científica. La televisió es centra bàsicament en programes de natura que han servit per despertar la consciència «ecologista» de la gent, però poca cosa més. I quan parlen de ciència dura, ho fan després de dinar competint amb programes rosa o a altes hores de la matinada quan no hi ha ningú. L experiència més «innovadora» són les re-
cents telemaratons a favor de tal o qual malaltia on l objectiu és tocar la fibra sensible i la butxaca de la gent. Tot i ser en principi lloable, el resultat final és pervers: s obté un finançament addicional important per a un seguit de grups de recerca, generalment mèdics i prou ben finançats, amb l esquer que la recerca que endegaran ajudarà a combatre aquesta o aquella malaltia. És a dir, la gent, sovint humil o molt humil, supleix la funció que haurien de fer les administracions públiques o les fundacions privades. I els resultats que la pretesa acció ha suposat sobre un millor coneixement de la malatia de l any mai no s han fet públics. Més val així, potser. Alhora, les administracions públiques (Generalitat, diputacions, ajuntaments) solen rentar-se la mala consciència mediambiental gastant considerables quantitats de diners en estudis de conservació o introducció de tal o qual espècie (el súmmum de la ximpleria és la reintroducció dels óssos al Pirineu), o finançant estudis sobre espècies en perill d extinció (hi ha exemples que són bajanades totals), mentre hi ha una manca preocupant de finançament d estudis bàsics sobre els sistemes ecològics. La conseqüència principal d aquest estat de coses és que molts problemes de biologia bàsica, o fins i tot camps sencers, resten completament al marge a Catalunya. Per esmentar-ne alguns: on són els experts en biocomputació?, on són els experts en neurociències?, on són els experts en seqüenciació de genomes?, on són els experts en genòmica i en biotecnologia?, on són els experts en biodiversitat?, on són els experts en transgènia? No vull seguir. Catalunya ha d apostar encara per la investigació, per la recerca bàsica. Ha d apostar per crear centres d excel·lència en biodiversitat, en biocomputació, en transgènia, en neurociències, on trobi recer la munió de científics joves, molts d ells formats a l estranger. En definitiva, Catalunya ha d apostar per enriquir el teixit
L'IMPARABLE ASCENS CIENTÍFIC I SOCIAL DE LA BIOLOGIA AL DARRER TERÇ DEL SEGLE XX 33
de la recerca bàsica com a inversió rendible a llarg termini. Aquesta és l assignatura pendent de la recerca a Catalunya. CLOENDA. TORNADA A LA SESSIÓ DE LA SCB DE GENER DEL 1970 Quan torno a pensar en la sessió de la SCB de gener del 1970 i, en particular, en el meu retorn al purgatori, la meva actitud és raonablement optimista. Els doctorants d ara treballen en més bones condicions, poden
viatjar i interaccionar més amb colegues d arreu, i tenen un accés més fàcil a les fonts d informació. Però ens manca molt encara. Ens manca una sòlida política de recerca i invertir més en recerca bàsica, ens manca conscienciar molt més la societat en els beneficis de la ciència, i ens manca reformar en profunditat el sistema educatiu. I encara que ens hi poséssim ara i aconseguíssim aquestes fites, sé que jo ja no ho veuré o que no en podré fruir. Però tant se val. Entrem en el segle XXI, que serà, sens dubte, el segle de la biologia. I només per això, cal ser optimista.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 35-45
REFLEXIONS SOBRE LA GENÈTICA, LA TEORIA DE L EVOLUCIÓ I LA GENÈTICA DE POBLACIONS ANTONI PREVOSTI Departament de Genètica. Facultat de Biologia. Universitat de Barcelona. Adreça per a la correspondència: Departament de Genètica. Facultat de Biologia. Universitat de Barcelona. Diagonal, 645. 08071 Barcelona.
Aquesta exposició és una autobiografia parcial, on s explica el desenvolupament canviant i a vegades tortuós, de les meves idees científiques, els viaranys seguits en les maneres de veure la genètica, la genètica de poblacions i l evolució biològica. PRIMERS CONTACTES AMB L EVOLUCIÓ BIOLÒGICA I LA GENÈTICA. ELECCIÓ DE CARRERA Just abans de començar el batxillerat, als deu anys, vaig descobrir l evolució dels éssers vius. Va ser en un llibre de lectura del col·legi, en el qual un senyor, Don José, acompanyava un nen, passejant per la península de la Magdalena de Santander, i li anava explicant la història de la Terra descrivint-li paisatges corresponents als períodes geològics que trepitjaven, amb la vegetació i escenes protagonitzades per animals aleshores vivents. Als deu anys ja estava psíquicament situat en la realitat. Les fanta-
sies infantils, com la recepció de regals dels Reis Mags i l existència dels éssers fabulosos de la literatura infantil, no sense una considerable sensació de desencant, les tenia ja situades en el lloc que els correspon. La realitat havia perdut gran part de la seva atracció, i havia disminuït considerablement la capacitat d estimular la meva imaginació. No sabia, però, que m´esperava una gran sorpresa. En el passat havien existit plantes i animals molt diferents dels actuals, dels quals se n poden estudiar les restes, amb la possibilitat de deduir-ne com eren quan eren vius. Així se m va obrir un món fascinant, que després dels desencants de la primera infància, va estimular-me la imaginació, potser amb més força que el món infantil que havia perdut. Mentre l interès pels fòssils se m va despertar mitjançant la imaginació, l atracció per la genètica va tenir una base més intel·lectual. El primer contacte amb la genètica es va produir estudiant les lleis de Mendel, en el sisè curs de batxillerat. Ales-
36 A. PREVOSTI
hores tenia setze anys. Vaig percebre immediatament que la genètica estudiava un dels aspectes més fonamentals i distintius de la biologia en relació amb les altres ciències. Al mateix temps, la senzillesa d aquestes lleis i la seva formulació quantitativa també em varen resultar molt atractives. Acabat el batxillerat no vaig tenir dificultats per trobar una carrera que m´agradés. Ans al contrari, el problema va ser deixar moltes matèries que m interessaven. Tenia delit i gran curiositat per conèixer el món, entendre l i sentir-lo, i això comprenia totes les disciplines no aplicades, però calia prendre una decisió. Finalment, en les ciències naturals, una llicenciatura que reunia la geologia i la biologia, em va semblar que prodria trobar-hi reunits el coneixement racional i el sensible. Em semblà més difícil trobar aquest últim en altres branques de la ciència. En canvi, la diversitat, la variabilitat existent en el món estudiat per la geologia i la biologia em fascinava. TESI DOCTORAL I PERÍODE POSTDOCTORAL EN ANTROPOLOGIA Durant els estudis de llicenciatura l alternativa que se m plantejava, pensant en la necessitat d una futura especialització, era si donar més pes a la satisfacció de la meva sensibilitat dedicant-me a la paleontologia, o a la racionalitat elegint la genètica. En el pla d estudis no hi havia genètica com a assignatura i sols en la de biologia general hi havia algunes lliçons d aquesta matèria, que ampliaven poc el que havíem vist en el batxillerat. En canvi, la paleontologia, com a part de la geologia històrica, estava programada com una part important de l assignatura de geologia que teníem en l últim curs. Això no obstant, la realitat va ser força diferent, i em va portar a resoldre, gairebé
automàticament, la indecisió. En l assignatura de geologia on s havia de cursar la paleontologia, sols es va tractar de petrografia; en canvi, en la d antropologia, també d últim curs, es dedicava el primer trimestre a genètica amb unes nocions d estadística, com a coneixements necessaris per poder enfocar adequadament l estudi de l antropologia. El contrast de la visió moderna i l interès amb què se ns va explicar l antropologia amb l ambient rutinari i el desinterès que es respirava en la càtedra de geologia em va decidir, en llicenciar-me, a sol·licitar al professor Santiago Alcobé, catedràtic d antropologia, que m´admetés en el seu laboratori com a doctorant. Al llarg del curs ens havia parlat de l existència de variacions genètiques a l home, en els límits de les regions de la columna vertebral, i que seria interessant fer un estudi experimental de la mateixa situació en ratolins, per establir-ne la base genètica. Li vaig proposar que aquest treball podria ser el tema de la tesi. Em va respondre que s ho pensaria i, finalment, molt honestament, em va dir que tractant-se d un tema de tesi, no el creia adequat perquè requeriria iniciar línies de treball, amb la consegüent posada a punt de tècniques, en les quals ell no tenia experiència. Com a alternativa em va suggerir diversos temes, entre els quals vaig elegir estudiar les relacions entre el factor social i el creixement dels nens barcelonins. Ja doctorat, vaig fer algun treball sobre l aplicació de la funció al·lomètrica al creixement humà fent servir dades de la tesi. També, amb la meva dona, vam estudiar la tipologia de les restes humanes procedents d un cementiri jueu, excavant a la muntanya de Montjuïc de Barcelona. A més, vaig col·laborar en campanyes per obtenir dades de poblacions humanes, aleshores considerablement endogàmiques, de diverses valls dels Pirineus. La part principal d aquests estudis era biomètrica; la morfologia s expres-
REFLEXIONS SOBRE LA GENÈTICA, LA TEORIA DE L'EVOLUCIÓ I LA GENÈTICA DE POBLACIONS 37
sa mitjançant índexs de relació entre dues dimensions. Com a complement no biomètric s estudiaven també els grups sanguinis ABO, el color dels ulls i el dels cabells. A més, per reconstruir la biologia d aquestes poblacions, es copiaven en microfilms dels arxius parroquials les dades de naixements, matrimonis i defuncions. En aquella època vaig conèixer els treballs de Mourant, en els quals es caracteritzaven les poblacions humanes mitjançant les freqüències gèniques de diversos grups sanguinis, sense tenir en compte la morfologia. La comparació d aquests treballs amb el que fèiem nosaltres en l estudi de les poblacions de les valls pirenaiques em va xocar fortament. En el nostre estudi el més important eren les dades biomètriques, a les quals s afegien altres dades somàtiques, el color dels ulls i dels cabells. Generalment també obteníem fotografies de cada individu estudiat, per poder fer un diagnòstic de visu de la seva tipologia. Les dades sobre grups sanguinis, malgrat tenir l avantatge de correspondre a un tret genètic no influït per l ambient, sols eren un complement interessant per a l estudi. Partint d aquest punt de vista, la caracterització de les poblacions únicament en termes de freqüències gèniques em va semblar molt incompleta, i l organisme, el que veiem i toquem, el que funciona i evoluciona, i que fins aleshores havia estat el principal objecte del nostre estudi, s esvaïa. PER FI GENÈTICA DE POBLACIONS NATURALS DE Drosophila L estudi de poblacions humanes, amb plantejament alhora evolutiu i tipològic i amb els coneixements de genètica que aleshores tenia, satisfeia força la vessant intel·lectual de la meva personalitat, però gens la sensible, la il·lusió, el desig d estar en contacte amb la natura, gaudint de la
seva esplendor i diversitat. La biologia humana és molt interessant i, en cert sentit, fins i tot més que la dels animals i les plantes, però el seu estudi no porta al contacte amb la natura. Segons com, dedicar-me a la biologia humana era una renúncia a una de les principals il·lusions que tenia quan vaig decidir estudiar ciències naturals. Això, junt amb les dificultats que tenia, en no ser metge, per recollir dades sobre caràcters com els grups sanguinis que requerien l extracció de sang, i el que em costava haver de demanar als individus que necessitava estudiar que em permetessin pendre ls mesures, observar-los i, moltes vegades, fotografiarlos, em va decidir a canviar de material de treball. A més, aleshores ja havia llegit J. Huxley i els clàssics del neodarwinisme, Dobzhansky, Mayr, Simpson, Stebbins, Fisher, Haldane y Wright, i per tant m´havia familiaritzat amb la genètica de poblacions. Aquest conjunt de motius em va portar a elegir un nou material de treball, la mosca Drosophila, un sistema biològic molt adequat com a model per als estudis de genètica de poblacions. Com que estava especialment interessat en l estudi de poblacions naturals, vaig optar per Drosophila subobscura, espècie abundant a Europa que es cultiva bé en el laboratori i amb una distribució àmplia i poc afectada per la influència humana. D aquesta manera, per fi vaig aconseguir satisfer el meu interès per la genètica com a disciplina bàsica per entendre la biologia, un àmbit científic atractiu per la formalització aconseguida en la teoria de la genètica de poblacions , la fantasia estudiant l evolució i la sensibilitat estètica amb el contacte amb la natura. Una conseqüència d aquest canvi va ser que, en introduir-me progressivament en la genètica de poblacions, a poc a poc, gairebé sense adonar-me n, se m va anar devaluant el significat de l organisme. Després, amb el transcurs dels anys, el significat de la genètica de poblacions per a
38 A. PREVOSTI
l estudi de l evolució s ha anat precisant, concretant, però també ha anat mutant. Sempre, fins ara mateix, la teoria de la genètica de poblacions m ha semblat indispensable per entendre els mecanismes de l evolució i, d aquests mecanismes, crec que la selecció natural n és el fonamental. La raó per creure-ho és que explica la funcionalitat de les propietats dels organismes, ja que és un mecanisme de recopilació d informació codificada, que l organisme processa per elaborar aquestes propietats. En l evolució, a més dels canvis produïts per la selecció natural, també es produeixen canvis neutres, és a dir, canvis que no són útils ni desavantatjosos per a l organisme on apareixen. També la genètica de poblacions, amb la formulació de la teoria neutralista de l evolució molecular, ens permet entendre com es produeix aquesta evolució. D acord amb aquesta teoria, el destí evolutiu dels canvis neutres, com també dels canvis gairebé neutres sotmesos a coeficients de selecció molt petits, depèn de l atzar. A més, també demostra que la taxa de fixació d aquests canvis, que és quantificable en termes de substitucions d aminoàcids a les proteïnes i de nucleòtids en el DNA, depèn de la taxa de mutació. Això té un interès considerable, ja que fa possible que la taxa de fixació de les mutacions neutres es pugui utilitzar com a rellotge evolutiu, ja que les taxes de mutació són constants al llarg del temps. L existència del rellotge evolutiu té un interès especial, perquè s utilitza per establir filogènies i obtenir estimacions del temps evolutiu, com per exemple del temps transcorregut des de la separació de les línies evolutives que han conduït a dues espècies determinades i, en general, a grups taxonòmics diferents. Si bé a la pràctica el rellotge evolutiu no es compleix sempre, i els mètodes de què es disposa per obtenir les estimacions dels temps evolutius no són gaire segurs, es sol admetre que quan es fan
servir conjuntament diversos gens o regions del genoma s obtenen resultats acceptables. Un altre aspecte interessant de la teoria neutralista és que serveix com a hipòtesi nul·la per detectar els efectes d altres factors evolutius, principalment la selecció. Això ha fet possible que la crítica de Popper, segons la qual considera no científica la teoria de l evolució per selecció natural perquè la creu no refutable, hagi deixat de ser vàlida. En relació amb la selecció, l evolució neutra també és important perquè produeix una variabilitat de fons que incrementa la probabilitat que es produeixin interaccions, causants de canvis no neutres, funcionals. No obstant aquesta possibilitat, l estudi de l evolució neutra no contribueix a explicar la presència de caràcters funcionals, un atribut típic dels sistemes vivents. Per exemple, en el cas de l evolució humana, l estudi de la variabilitat neutra s ha fet servir per obtenir una estimació del temps transcorregut des que la línia evolutiva humana es va separar de la del ximpanzé, el primat actual evolutivament més pròxim a l home. L estimació ha estat d uns sis milions d anys, és a dir un temps molt curt en termes de l escala temporal que s utilitza en geologia. Tanmateix, malgrat que ens proporciona aquesta interessant dada, l estudi de la variabilitat neutra no ens diu res de l origen del conjunt de propietats distintives de l home respecte al ximpanzé, en les quals es fonamenta el desenvolupament per a la nostra espècie d un àmbit evolutiu nou, el cultural. Aquests canvis probablement es van desencadenar amb l adquisició de la postura erecta, que va tenir per conseqüència que la mà, en deixar de tenir funció locomotora, quedés lliure per utilitzar-se i convertir-se en un instrument extraordinàriament sofisticat. A això es va afegir l evolució de les regions de la laringe i de la boca, que varen esdevenir aparell de fonació, base física indispensable per al desenvolupament del
REFLEXIONS SOBRE LA GENÈTICA, LA TEORIA DE L'EVOLUCIÓ I LA GENÈTICA DE POBLACIONS 39
llenguatge. Simultàniament, variacions en el desenvolupament (el desenvolupament neotènic, en comparació amb el dels simis, característic de l espècie humana) han tingut per conseqüència un augment molt considerable del període juvenil, propietat que ha estat determinant per a la transmissió cultural d una generació a la següent. Bàsicament és en aquest període que es produeix la socialització dels individus humans. Finalment, tenim els canvis en el cervell, que són la base de la utilització i de la coordinació funcional de tots els anteriors. L evolució cultural (Prevosti, 1994), com la biològica, és un procés d acumulació de coneixement, que arriba a saó en aparèixer un component portador d informació codificada, el llenguatge, oral primer i escrit després. Continuant amb l anàlisi de la genètica de poblacions, i després d insistir que la considero indispensable per entendre com es produeix l evolució (els mecanismes de l evolució), em cal indicar que actualment la impressió negativa que em va produir la utilització exclusiva dels grups sanguinis per als estudis d antropologia em retorna sovint. Crec que molt sovint, des de la genètica de poblacions es fa un plantejament de l evolució que pateix d una deficiència important: omet considerar l evolució dels organismes com a sistemes. Sols considera una o unes poques propietats de l organisme, les determinades pels gens que s estudien en cada cas concret, sense tenir en compte que aquestes propietats estan integrades en un sistema complex, que té uns condicionaments propis, com a possibilitats i com a limitacions. Aquesta omissió seria molt més greu si, per entendre l evolució, sols es tingués en compte la variabilitat neutra a escala molecular. En realitat, l omissió de l organisme com a sistema, si bé en un aspecte diferent que la
genètica de poblacions, és també una característica, m´atreviria a dir una deficiència, del darwinisme en general. En aquest, l adaptació a l ambient és l agent principal, per no dir l únic, de l evolució. Tanmateix, encara que aquest sigui un aspecte important de l evolució, els organismes adaptats són, a més, sistemes que requereixen una organització eficient com a tals sistemes estructuralment i funcionalment integrats. La complexitat creixent d aquesta organització, a la qual fa referència Darwin en l apartat que titula «Sobre el grau vers el qual tendeix a avançar l organització» (encapçalament en què veiem clarament expressada la idea de progrés de la concepció darwiniana de l evolució) té uns condicionaments que poques vegades són considerats en tractar dels resultats de la selecció natural. L augment d eficàcia biològica, de fitness, no és sols el resultat de les adaptacions a l ambient. Les diverses funcions, la respiració, la circulació, la nutrició, l excreció, etc. han d estar coordinades. Sistemes com el nerviós i l hormonal tenen funcions de coordinació del funcionament de l organisme, a més de servir per establir relacions amb l ambient. Els mecanismes de regulació dels gens, especialment en els organismes pluricel·lulars complexos, també han d estar organitzats adequadament i, per ser funcionals, han de tenir unes característiques determinades, molt especialment, en els processos del desenvolupament. Si només pensem en l adaptació a l ambient, l organisme com a sistema desapareix, o almenys queda molt, massa, en segon pla. L omissió de l organisme ha influït molt en el fet que els biòlegs que se n ocupen principalment tendeixin a sintonitzar poc amb la genètica de poblacions i, fins i tot, amb el neodarwinisme en general. Molts morfòlegs, taxònoms i paleontòlegs, per aquest motiu, busquen freqüentment explicacions de l evolució fora del marc neodarwinista.
40 A. PREVOSTI
Una altra característica de la genètica de poblacions que m´ha fet reflexionar és que tendeix a presentar models d equilibri. És evident que aquests models són un punt de referència útil, potser necessari, per entendre com actuen els factors determinants de l evolució, però no expressen la materialitat del que succeeix en moltes poblacions reals. Aquestes més aviat tendeixen a variar contínuament, seguint les inestabilitats de l ambient al qual estan sotmeses, amb canvis extraordinàriament ràpids. Les poblacions naturals acostumen a ser portadores d una quantitat important de variabilitat genètica, fàcilment i immediatament explotable per la selecció. Això es comprova en experiments de selecció artificial. Pràcticament qualsevol caràcter sobre el qual s apliqui la selecció artificial respon ràpidament, de manera que s arriba fàcilment a desviacions importants respecte de la mitjana inicial que tenia abans de començar la selecció. També es comproven els efectes ràpids de la selecció natural en poblacions salvatges sotmeses a canvis ambientals. En tenim un exemple en el polimorfisme cromosòmic de les poblacions de Drosophila subobscura colonitzadores d Amèrica. A Xile, un any (no més de sis generacions) va ser suficient perquè s originessin clines en les freqüències de les ordenacions cromosòmiques en el mateix sentit de la variació latitudinal de la temperatura com les que hi ha al Vell Món, d on procedia la població colonitzadora. Posteriorment, es va descobrir que Drosophila subobscura també havia colonitzat extenses àrees de la part del Pacífic dels Estats Units, i es va veure que també allí s havien establert clines semblants (Prevosti et al., 1988). L estudi de poblacions de la mateixa espècie que ocupen els terrenys de l Observatori Fabra de Barcelona i àrees properes ha confirmat la rapidesa de la resposta de les ordenacions cromosòmiques als canvis de temperatura. En mostres obtingudes des de 1964 fins a
1989, utilitzant les dades meteorològiques d aquest observatori es comprova que les oscil·lacions temporals en les freqüències de les ordenacions cromosòmiques estan clarament correlacionades amb la temperatura, i no amb altres variants climàtiques, en el mateix sentit que les variacions observades en la latitud (Orengo i Prevosti, 1996). Estudiant caràcters fenotípics externs també s observen canvis molt ràpids dirigits per la selecció natural. Un dels millors exemples d evolució in real time, com la qualifica Weiner (1994), és l estudiat per Grant i col·laboradors (Grant, 1986; Gibs i Grant, 1987; Grant i Grant, 1989). Aquests autors detecten canvis extraordinàriament ràpids en un any, en espècies de pinsans de les illes Galápagos, i demostren que aquests canvis es produeixen per selecció natural. Fins i tot calculen coeficients de selecció. Per exemple, en Geospiza fortis van observar fortes variacions en la mida del bec, principalment en l altura, relacionats amb els canvis climàtics provocats per les oscil·lacions d El Niño. En els períodes de forta sequera, les poblacions de G. fortis tenen el bec molt robust, especialment molt alt. En canvi, quan la pluja és abundant la mida del bec disminueix. Aquests canvis s expliquen per les variacions determinades en la vegetació per les oscil·lacions climàtiques. En els períodes secs només sobreviuen plantes arbustives que tenen les llavors grosses, mentre que en els humits creixen també herbes amb llavors petites. A conseqüència d això, en els períodes secs hi ha una forta selecció negativa contra els individus que tenen el bec petit, no apte per alimentar-se de llavors grans. En els períodes humits desapareix aquesta selecció i tornen a aparèixer individus amb el bec petit. Un estudi fet per Cody i Overton (1996) en les plantes de la família de les asteràcies és un exemple d evolució ràpida en els vegetals. El fruit d aquestes plantes és un
REFLEXIONS SOBRE LA GENÈTICA, LA TEORIA DE L'EVOLUCIÓ I LA GENÈTICA DE POBLACIONS 41
aqueni que conté una llavor i penja del vilà, òrgan que té per funció la dispersió pel vent. Els autors indicats van comprovar que en les poblacions de les plantes d aquesta família recentment introduïdes en illes, es produeixen canvis en el fruit desfavorables per a la dispersió pel vent. La mida del vilà disminueix i augmenta el pes dels aquenis. Aquests canvis incrementen la probabilitat que les llavors no caiguin en el mar, fora de l illa, i es perdin per a la reproducció. En l últim comentari crític sobre la genètica de poblacions, em referiré al fet que redueix l evolució a l observació exclusiva de les freqüències gèniques. Almenys aquesta era una característica de la genètica de poblacions clàssica. A propòsit d això recordo una pregunta que em van fer en una conferència, on vaig parlar de la importància que tenen les duplicacions gèniques per explicar l origen de noves funcions i l increment de complexitat dels organismes al llarg de l evolució. Em van preguntar si realment creia que això és així, ja que feia poc temps que una personalitat molt destacada en l estudi de la genètica de poblacions, en una conferència impartida en el mateix lloc, havia negat rotundament la importància evolutiva de les duplicacions gèniques. És possible que prescindir de l organisme com a sistema, cosa a la qual condueix fàcilment la pràctica de la genètica de poblacions, fos la causa d aquesta posició. Des de la genètica de poblacions, almenys de la clàssica, no es planteja la necessitat d explicar l augment de complexitat dels organismes, ni la importància que aquests tenen com a sistemes. Així acabo les reflexions i experiències corresponents al període en què vaig centrar-me en l estudi de poblacions naturals, fent servir d eina de treball la genètica de poblacions. Això va ser fins que em van jubilar l any 1986, quan tenia seixanta-set anys.
ON SÓC? En jubilar-me, de cara al futur em vaig plantejar dues possibilitats. La primera, dedicar-me exclusivament al treball de camp i disfrutar del contacte amb la natura. La segona opció, la que he seguit, és més intel·lectual, i tracta de respondre a la pregunta, on sóc? On sóc en relació amb el món que m envolta i en el qual he viscut, com a científic, biòleg, genètic i especialista en genètica evolutiva. Em vaig inclinar per la segona alternativa per diverses raons. He de reconèixer que un dels principals motius va ser que la vaig considerar més còmoda. El treball de camp és dur i si no es realitza amb constància pot ser molt poc productiu i, per altra banda, el contacte amb la natura podia mantenir-lo, tal com he fet, sense lligar-me a un treball que exigeix una forta disciplina. A més, la segona alternativa també em va semblar més assequible considerant la meva edat, que aniria augmentant. Per tant, m he interessat a situar l evolució biològica i els sistemes biològics que evolucionen, els organismes, en relació amb els altres processos que es desenvolupen a l Univers. També m ha interessat reflexionar sobre com estic relacionat, com a home sensible i racional, amb aquest Univers que estudia la ciència. Això no ho tractaré aquí, perquè seria sortir-me del camp de la ciència. La ciència té l aspiració, potser il·lusòria, d acostar-se a l objectivitat. En canvi, les visions més globals tracten d esbrinar, crec que molt justificadament, encara que es tracti de visions subjectives, quin significat o sentit té el món en relació amb nosaltres, els humans. Vull aclarir que entre les possibles respostes a aquesta pregunta considero admissible la que no té sentit plantejar-la, malgrat que no sigui aquesta la meva posició. Com ja he dit, la primera apreciació que vaig fer, en tractar de situar la genètica evo-
42 A. PREVOSTI
lutiva i el darwinisme en relació amb la biologia en general, va ser que tenia una visió parcial del procés evolutiu, pel fet que omet, o almenys considera molt insuficientment, que els organismes són sistemes. Conseqüència d això va ser que em vaig interessar per autors com Ilya Prigogine, René Thom, Brian Goodwin, Gerard Webster i Stuart Kauffman, etc., que si bé amb visions diferents, tracten d aplicar la dinàmica de sistemes complexos a l estudi dels sistemes biològics. Uns més que altres, aquests autors aporten coneixements sobre les característiques dels organismes com a sistemes. El meu judici actual és que aquesta línia d investigació està en un camí que serà fructífer per explicar aspectes de la morfologia i de l organització, tant estructural com dinàmica, dels éssers vius. Potser en sigui un exemple la idea de Kauffman (1993) que la xarxa d interaccions moleculars que regulen el funcionament dels gens en els organismes pluricel·lulars complexos s ajusta a les propietats de les xarxes booleanes. És possible que les xarxes de regulació del funcionament dels gens estiguin sotmeses a les propietats generals d aquestes xarxes, de la mateixa manera que els moviments dels ossos de les extremitats estan regulats per les lleis de les palanques. Per exemple, el nombre de tipus cel·lulars diferents existents en un organisme (explica Kauffman segons les característiques de les xarxes booleanes) ha de ser igual a l arrel quadrada del nombre de gens diferents existents en el seu genoma. Concretament, un organisme amb cent mil gens diferents esperaríem que tingués uns tres-cents disset tipus diferents de cèl·lules. Si la idea de Kauffman fos correcta, aportaria un avenç molt important en el coneixement de la regulació de l expressió dels gens. Entendríem la manera d operar de les xarxes de regulació dels gens perquè coneixeríem les lleis que les regulen i que en condicionen algunes de les propietats, de la
mateixa manera que entenem els moviments i algunes de les propietats dels ossos de les extremitats perquè coneixem les lleis de les palanques. Tanmateix, no crec que les lleis de les palanques expliquin la funcionalitat i l origen dels ossos de les extremitats en els tetràpodes. Aquestes lleis no expliquen l associació dels ossos amb els músculs que els mouen, ni l existència de tendons adequats per unir els músculs amb els ossos, ni la inervació dels músculs connectada amb els centres nerviosos, que regula, d acord amb l ús que en fa l animal, els moviments de l extremitat. Similarment, tampoc no crec que les propietats de les xarxes booleanes, tot i admetent que expliquessin les propietats de les xarxes que regulen l expressió dels gens, expliquin la funcionalitat i l origen de les diferents classes de molècules i de les seqüències de DNA del genoma, que fan possible i funcional la regulació de l expressió gènica, ni tampoc explicarien la funcionalitat i l origen de les cèl·lules musculars, nervioses, epitelials, etc. presents en els organismes. En canvi, la funcionalitat en general, i l origen de les molècules i òrgans funcionals en particular, s expliquen molt bé per la selecció natural. Les aportacions fetes per la genètica molecular sobre les característiques del genoma com a portador d informació codificada i sobre els mecanismes de processament d aquesta informació per a l ús de l organisme, junt amb el desenvolupament de la informàtica, crec que justifiquen admetre que aquesta informació és un coneixement acumulat per un procés de tempteig. Un procés basat en la producció de canvis aleatoris en el genoma, les mutacions, que la selecció natural tendeix a eliminar o a conservar, segons si disminueixen o augmenten l eficàcia biològica de l organisme que els porta. Aquest coneixement és sobre propietats de l organisme que contribueixen a la supervivència, mitjançant la reproducció, en rela-
REFLEXIONS SOBRE LA GENÈTICA, LA TEORIA DE L'EVOLUCIÓ I LA GENÈTICA DE POBLACIONS 43
ció amb les condicions del medi on viu i amb les característiques estructurals i d organització que ha de tenir per tal de ser un sistema funcional. D acord amb això, pot afirmar-se que els éssers vius són sistemes informacionals naturals, termodinàmicament oberts i allunyats de l equilibri, que porten, acumulen i processen informació codificada sobre les propietats que fan possible la seva supervivència com a tals sistemes, per mitjà de la reproducció. Tal com jo ho veig, aquestes característiques expliquen totes les altres propietats dels éssers vius que freqüentment s han utilitzat per caracteritzar-los. La condició informacional dels organismes els diferencia, fonamentalment, de tots els altres sistemes naturals, i explica que presentin propietats que, si només se ls considera des d un punt de vista fisicoquímic, poden semblar científicament poc justificables. Em refereixo, per exemple, a atribuirlos propietats funcionals que, per raons històriques, es relacionen fàcilment amb explicacions teleològiques. En un sistema informacional, en canvi, aquesta dificultat no hi és. El sistema processa informació codificada que li és útil, sancionada per experiències passades, que s han anat acumulant en el curs de l evolució, com a resultat de la selecció natural de canvis mutacionals aleatoris beneficiosos per a l organisme. Un altre concepte estretament relacionat amb l evolució biològica, generalment refusat per considerar-lo poc científic, malgrat que pràcticament tots els estudiosos de l evolució explícitament o implícita l utilitzen, és el de progrés. També en aquest cas, em sembla que el progrés en l evolució biològica és admissible sense sortir del camp científic, partint del fet que els organismes són sistemes informacionals. Per fer vàlida aquesta tesi és necessari, tanmateix, matisar què entenem per progrés. Si és l expressió d una tendència interna dels sistemes biolò-
gics, que s expressa fent-los avançar linealment i d una manera contínua vers un fi determinat, per exemple l aparició de l home, l afirmació anterior seria totalment inacceptable. Igualment el veredicte seria negatiu si en comptes d una progressió lineal ens referíssim a un desplegament en forma d arbre, malgrat que això està més d acord amb la realitat. La idea d una tendència interna dels sistemes biològics, que dirigeixi l evolució vers l aparició de sistemes successivament mes complexos, no correspon al que sabem del procés evolutiu. L evolució per selecció natural de mutacions aleatòries que determinen canvis útils per a la supervivència del sistema, no encaixa amb aquestes concepcions de progrés. El que s observa en l evolució biològica és l aparició, en el transcurs del temps, de sistemes successivament més complexos. Això pot interpretar-se com a progrés perquè la major complexitat permet adquirir noves funcions i una major eficàcia de les ja existents. Però no significa que els canvis evolutius siguin sempre en aquest sentit. L evolució per selecció natural és oportunista, es produeix d acord amb les possibilitats que es presenten en cada moment. En moltes línies evolutives es perden funcions. Per exemple quan deixen de ser útils per al sistema, com quan es perd la visió en animals cavernícoles i abissals, o també si resulta més econòmic aprofitar les funcions realitzades per altres sistemes, com succeeix en la simplificació orgànica de molts paràsits o en la pèrdua de la capacitat de síntesi de metabòlits essencials per a la vida que poden obtenir-se alimentant-se d organismes que els sintetitzin. Això no obstant, en el curs de l evolució considerada globalment van apareixent formes més complexes i amb funcions noves, que obren nous camps de possibilitats a la vida. Aquesta forma de progrés no s explica per una tendència interna del procés evolu-
44 A. PREVOSTI
tiu, sinó perquè és un procés de recopilació d informació per tempteig, per mutacions a l atzar. Un procés d aquestes característiques ha de tendir a desenvolupar-se asimètricament. En el sentit de la simplificació hi ha un límit, que no es pot sobrepassar. En el sentit oposat, el de la complexitat, aquest límit no hi és. Per tant, només per atzar, hi ha d haver una expansió en aquest sentit. A més, cal afegir que la major complexitat permet l aparició de noves funcions. Per tant, en un procés dirigit per la selecció natural, l augment de complexitat ha de ser afavorit, cosa que reforça l asimetria del procés evolutiu. Tot això està d acord amb la idea que l evolució biològica és un procés de recopilació de coneixement i que els organismes són sistemes que porten, acumulen i processen coneixement, idea que recolza les descobertes de la genètica molecular. En contra de la introducció del concepte de progrés que estic defensant, es pot fer una objecció, que ha estat molt freqüent en tractar d aquesta qüestió. La impossibilitat d expressar aquest concepte d una manera utilitzable científicament. Tanmateix, és possible que actualment aquesta objecció sigui superable, sobre la base que els sistemes vivents són sistemes informacionals. La posició d una espècie en el seu nivell de progrés pot ser mesurable per la quantitat d informació que pot processar. En el curs de l evolució biològica, l augment de complexitat es fonamenta en l increment del nombre de gens diferents presents en el genoma. Conèixer aquest nombre serà fàcil en les espècies on s hagi seqüenciat el genoma. Però les diferències de complexitat no depenen sempre exclusivament de variacions en el nombre de gens. Per exemple, em sembla dubtós que aquest criteri sigui aplicable per expressar correctament el canvi de nivell produït en el camí del progrés entre el ximpanzé i l home. Les diferències existents entre l home i el
ximpanzé és molt possible que no depenguin de variacions en el nombre de gens i, fins i tot, de diferències en la complexitat de la xarxa de regulació de l expressió gènica. Els canvis ocorreguts en el procés de l hominització abans esmentats poden ser deguts bàsicament a variacions en les relacions, principalment temporals, en l expressió dels gens, sense que el nombre de gens del genoma i la complexitat de la xarxa de regulació hagin canviat. El principal resultat evolutiu de l hominització, el desenvolupament de la cultura, té per conseqüència que l home processa una quantitat d informació extraordinàriament més gran que el ximpanzé. Per tant, a la quantitat d informació codificada en el genoma que l home és capaç de processar, cal afegir-hi la que acumula i processa en l àmbit cultural. Potser una quantificació d aquesta informació podria obtenir-se a partir del llenguatge. Aquesta dissertació sobre el progrés, als científics en actiu els pot sonar com una discussió sobre el sexe dels àngels, ja que no té cap transcendència per als treballs que estan realitzant. De totes maneres, em vull justificar recordant-los que en jubilar-me vaig elegir intentar contestar la pregunta, «on sóc?». On sóc en relació amb el món que m envolta, on he viscut com a científic, biòleg, genètic i especialista en genètica evolutiva. M he interessat per situar l evolució biològica i els sistemes vivents, els organismes, en relació amb els altres processos que es desenvolupen a l Univers en general. El que els acabo d exposar és on he arribat fins ara en aquest sentit. Per acabar, vull precisar que situar l home en el pinacle de l evolució, no significa considerar-lo el rei de la creació. No crec que ocupar aquesta posició sigui una garantia d èxit evolutiu. El que opino és que li confereix una gran responsabilitat perquè, almenys en el nostre planeta, manllevant a Julian Huxley (1942) una frase que utilitza
REFLEXIONS SOBRE LA GENÈTICA, LA TEORIA DE L'EVOLUCIÓ I LA GENÈTICA DE POBLACIONS 45
com a títol d un dels seus llibres, crec que des d un punt de vista evolutiu «l home està sol». Aquest escrit correspon a una conferència pronunciada en el XII Seminario de Genética de Poblaciones y Evolución. Aiguablava, 26-28 de novembre de 1998. BIBLIOGRAFIA CODY, M. L.; J. M. C. OVERTON (1996). «Short term evolution of reduced dispersal in island plant populations». Journal of Plant Ecology, núm. 84, pàg. 53-61. GIBBS, H. L.; P. R. GRANT (1987). «Oscillating selection in Darwin´s Finches». Nature, núm. 291, pàg. 90-92. GRANT, P. R. (1986). Ecology and evolution of Darwin Finches. Princeton, Nova Jersey: Princeton University Press.
GRANT, B. R.; P. R. GRANT (1989). Evolutionary dynamics of a natural population. The large cactus finch of the Galapagos. Chicago: The University of Chicago Press. HUXLEY, J. (1942). El hombre está solo. Buenos Aires: Editorial Sudamericana. KAUFFMAN, S. A. (1993). The origins of order. Self-organization and selection in evolution. Nova York, Oxford: Oxford University Press. ORENGO, D. J.; A. PREVOSTI (1996). «Temporal changes in chromosomal polymorphism of Drodophila subobscura related to climatic changes». Evolution, núm. 50, pàg. 1346-1350. PREVOSTI, A. (1994). «Comparació de les estratègies de l evolució biològica i l evolució cultural». Revista d Etnologia de Catalunya, núm. 5, pàg. 22-37. PREVOSTI, A.; G. RIBÓ; L. SERRA; M. AGUADÉ; V. BALAÑA; M. MONCLÚS; F. MESTRES (1988). «Colonization of America by Drosophila subobscura: Experiment in natural populations that supports the adaptive role of chromosomal inversion polymorphism». Proceedings of the National Academy of Sciences, USA, núm. 85, pàg. 5507-5600. WEINER, J. (1994). The beak of the Finch. Evolution in real time. London: Jonhatan Cape.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 47-59
ORGANITZACIÓ DE LA BIOSFERA I REFLEXIONS SOBRE EL PRESENT I EL FUTUR DE LA NOSTRA ESPÈCIE I DE LA CIÈNCIA ECOLÒGICA RAMON MARGALEF Departament d Ecologia, Facultat de Biologia. Universitat de Barcelona. Adreça per a la correspondència: Departament d Ecologia. Facultat de Biologia. Universitat de Barcelona. Diagonal, 645. 08071 Barcelona.
INTRODUCCIÓ Agraeixo que se m hagi suggerit redactar unes pàgines sobre progressos recents i perspectives de l ecologia, com a part d una nova sèrie d articles sobre «cap on va la biologia moderna», vint-i-vuit anys després d una reunió, amb aquest títol, organitzada aleshores per la mateixa Societat Catalana de Biologia. Tant per la meva edat com pels progressos inabastables que la biologia ha experimentat en aquests darrers trenta anys, ni puc ni voldria arriscar-me a fer comentaris sobre la biologia en general; però resulta temptador reprendre, una vegada més, els temes de sempre de tipus ecològic que suscita l estudi de la coberta viva del nostre planeta. Almenys els mots ecologia i derivats han esdevingut d ús comú, potser massa comú per mantenir un mínim de precisió i fins i tot de respectabilitat.
Una bona part del meu pensament queda exposat en la meva Ecologia de l any 1974, un llibre que ja no es correspon amb la manera de tractar aquesta ciència de la major part de les universitats. Tampoc no han tingut gaire difusió altres escrits més abstractes o teòrics (Margalef, 1991, 1997) i jo mateix he anat canviant la manera de veure algunes qüestions inobviables. En les pàgines que segueixen, intentaré sintetitzar el meu pensament actual a propòsit d algunes qüestions que crec importants, però no em proposaré passar revista de manera sistemàtica i formal als possibles continguts de l ecologia. No sols com a deure, sinó també com a lleure, segueixo fullejant i llegint llibres i articles que tracten d aquest espai de la ciència i procuro seguir allò de què es parla en els congressos del ram. Tot plegat dóna idea del temps considerable que la gent inverteix en tota aquesta problemàtica. Un pensa
48 R. MARGALEF
que al darrere hi ha el treball i les il·lusions de molts estudiants i també de recercadors més granats. Sovint hom hi troba una informació important per altres raons, encara que de vegades subvencionada o feta possible per algun títol que conté els mots ecològic o ecologia. Hauria estat massa feixuc per a la meva capacitat actual intentar fer un resum del que crec assimilable i positiu, o presentar les conclusions que es poden treure de nombrosos estudis sobre canvis possibles o probables en el nostre entorn, tant en l atmosfera com en la circulació oceànica, incloent-hi prediccions per a tots els gustos, o en la intensitat de les modificacions o de la destrucció experimentada pels ecosistemes mundials o pels que han estat més o menys modificats per la humanitat, que actualment ja són tots. O tractar dels processos d extinció de poblacions i d espècies, incloent-hi els exemples d expansió d algunes d elles, juntament amb els resultats dels sovint desaconsellables intents de reintroducció de formes alienes o de formes modificades per la tecnologia genètica del present. Fa més de vint anys que encara s intentava construir, de manera raonable i lògica, una ecologia teòrica. Després, tot ha anat quedant reduït a aplegar allò que se n ha dit «conceptes» o «models parcials ad hoc», amb un acompanyament generós d estadística, generalment no bayesiana. No hi ha ara voluntat de fer teoria general; es repeteix el cas d una situació paral·lela de la qual en va es queixa Hsü (1995) pel que fa a la geologia. Per clarificar el panorama, penso que valdria la pena «deconstruir» una part considerable de molts conceptes i relacions que ara se ns serveixen sota el rètol d ecologia. I sap greu que es perdi molt de temps en aspectes trivials, que són proposats com a distracció, amb fites comercials o també amb segones intencions polítiques, sovint més o menys blasmables.
VIDA I HISTÒRIA L organització del món viu és històrica, s expressa sobre el temps i això ha de quedar sempre molt clar. La vida es podria interpretar de maneres diverses, també com l usdefruit d un temps que s escola fatalment, que així deixa rastre i conforma un futur, ric en informació. El desenvolupament de la teoria de l evolució encaixaria en aquesta línia: usar una informació adquirida mentre es va construint un sistema cada vegada més tancat i aparentment més parsimoniós en el canvi. Això aquí i allí i una altra vegada. Com escriu Popper (1982, pag. 174), si el futur estigués contingut en el passat seria redundant i l única alternativa que satisfà la nostra manera de ser és creure en la creació continuada. L ecologia reflexiona sobre la construcció i el manteniment dels ecosistemes, que són conjunts reals d organismes, contemplats com a sistemes històrics que, com a portadors d informació, permetrien en teoria una reconstrucció parcial del passat, i es consideren subjectes al que tradicionalment se n ha dit successió ecològica. Són els tallers i alhora l escenari de l evolució creadora. Fa temps que maldo per divulgar l essencial del pensament de Volterra (1937) i recomanar que se n aprofundeixi més l estudi. Volterra associa la manifestació temporal dels canvis en els sistemes compostos per éssers vius amb fer mínim el que anomena acció biològica, proposta que equival, de manera molt general, a introduir un principi de mínima acció (aquí acció biològica). Això faria costat a altres formes d expressió més generalitzades en física, segurament intuïdes d antic i formulades almenys des del temps de Maupertuis (1698-1759). Es tracta d arribar al més ràpidament possible i amb la mínima despesa energètica total (la menor producció d entropia) a una situació de relatiu repòs (algú diria de relativa estabili-
ORGANITZACIÓ DE LA BIOSFERA I REFLEXIONS SOBRE EL PRESENT I EL FUTUR DE LA NOSTRA ESPÈCIE 49
tat), que sempre acostuma a resultar almenys més complexa (major diversitat) que qualsevol situació precedent. Evidentment, un sistema que s organitzi segons aquestes línies començarà amb el predomini d uns pocs components que creixeran molt ràpidament i gradualment anirà augmentant en complexitat i parsimònia. Aquesta mena de relacions es perceben prou bé quan tractem de visualitzar la successió en un ecosistema, no solament com varien els fluxs, sinó també la «diversitat» global apreciada sobre el conjunt de les entitats històriques (espècies) que coexisteixen en cada moment; conjunt generat a partir dels gèrmens a disposició per exemple, els que es troben en els sòls o sediments i regulada (la diversitat) per les interaccions biològiques entre unes i altres espècies. Les poblacions deriven totes dels gèrmens que el sistema viu extreu o rep de la reserva biòtica local, del que se n diu la biodiversitat, que pot contenir unitats actives i d altres de quiescents. La successió ecològica representa una mena d organització estesa sobre el temps que es podria comparar amb moltes històries particulars, com la del sistema immunitari individual, en la seva resposta a successius estímuls. LA SUCCESSIÓ La formulació general de la successió ecològica, així com la seva percepció en el sentit de Volterra, tendeix, progressivament, a situacions menys fluctuants que les del principi i a minimitzar el cost fisiològic de manteniment per unitat d estructura (o d informació). Crec que les qüestions relatives a la diversitat i a la biodiversitat han estat molt inflades artificialment i no sempre de manera prou intel·ligent. Tant els conceptes dits com la seva mecànica queden notablement aclarits des de la visió
suggerida que no és del tot nova. Vindria a proposar que la continuïtat de la història troba una expressió i alhora depèn de les relacions recíproques i circulars entre diversitat, o composició local dels ecosistemes, i biodiversitat, o sigui, la reserva genètica de la naturalesa, representada per les diverses soques o els seus gèrmens, de què es disposa en aquell moment del temps i lloc de l espai. La successió ecològica seria una història, entre d altres possibles, repetida una i altra vegada, però mai exactament en els mateixos termes, tothora creativa, és a dir, amb capacitat d influir sobre l evolució biològica, i fortament dependent de la capacitat dels organismes d arranjar els entorns respectius i fins i tot de construir estructures auxiliars desproveïdes de vida, que van des de la fusta de les plantes vasculars, en el sentit biològic, fins als gratacels i als avions. Sempre m ha semblat que en els temps que corren es tendeix a rebaixar la importància del tema de la successió. Potser la regressió generalitzada dels ecosistemes, sota l imperi humà, contribueix a l oblit. Segueixo creient que els mecanismes de la successió són un aspecte fonamental de tots els sistemes històrics, que afegeixen estructures i funcions exosomàtiques amb el pas del temps. Aquest enfocament clarifica i destria els conceptes de diversitat i biodiversitat. L expressió fonamental de Volterra és de l any 1937 i té la forma següent:
A=
z LMNå b t
0
i =1
gOPQ
a i N i log N i dt
on Ni és el nombre d individus de l espècie i, ai una constant i t el temps. Aquesta equació s aplica a la successió i inclou el que és una expressió de la diversitat, que normalment
50 R. MARGALEF
ha d augmentar amb el pas del temps. Aquesta part correspon a una fórmula de Shannon que s ha usat per expressar la diversitat biològica: H= S (pi log2 pi), on pi és la proporció d individus de l espècie i, però la publicació fonamental de Shannon és de l any 1948. Des del punt de vista de la termodinàmica, el més important és l asimetria entre trajectòries oposades dins de les fluctuacions. La reconstrucció, quan és possible, fa veure que la selecció operada en un canvi d entorn en un sentit mai no és inversa del canvi que continua quan el sentit del proper canvi esdevé invers del precedent. La tardor no és com la primavera presa a l inrevés, la barreja vertical en llacs i oceans no és un procés invers a l estratificació de l aigua per densitats, i el bosc que es crema no és la imatge invertida del bosc que creix. Ha estat massa sistemàticament oblidat que la repetició de trajectòries de canvi, ara en un sentit, ara en un altre sentit, ha de canalitzar l evolució en un únic, sigui d augment de mida dels organismes individuals, sigui de modificacions, suposadament progressives, en relació amb l efecte selectiu de segments relativament extensos de la successió ecològica. Els geòlegs, en camps veïns, han reconegut canvis fluctuants, com els cicles de sedimentació dits de Bouma, que poden tenir un efecte selectiu, sovint unidireccional, sobre els organismes continguts en el registre fòssil. La fonamentació teòrica seria la irreversibilitat en el tractament de la informació: la impossibilitat de desmuntar ordenadament un sistema informàtic (memòria, organització, l individu) que s ha anat integrant també de manera gradual. És la llei que regeix les activitats vitals, i en especial les que impliquen informació, organització: mai no es poden repetir en sentit invers. Realment, la vida no pot donar cap pas enrere i el final de tot és la mort individual.
Alguns aspectes de la successió produeixen resultats admirables. Un exemple dels que més admiro és el joc entre els boscos de ribera tropicals i la dinàmica de meandres dels rius respectius. L expressió geomètrica d aquesta dinàmica dóna com a resultat que la vora del riu que avança sobre terra talla perpendicularment tot un paquet o una sèrie d etapes successives d una successió ja vella, mentre que al llarg de la riba que retrocedeix es troba la seqüència, en faixes paral·leles a la mateixa riba, de les fases jovençanes de la mateixa successió. I per les ironies de la vida, hagueren de ser investigadors finesos els que explicaren aquest elegant mecanisme en estudiar els afluents de l Amazones (Saló et al., 1986). LES UNITATS INTERACTUANTS I EL RESULTAT DE LES INTERACCIONS El model de depredador i presa, tal i com es proposa correntment, hauria de contenir el que és un component inevitable d evolució. Podem partir del model del depredador i de la presa, del gat i de la rata, que prefereixo qualificar de model de Tom i Jerry, per significar que a l augment de la capacitat de trapelleria d un dels «interlocutors» segueix inevitablement una nova astúcia corresponent de l altre. Per això, en qualsevol espai de fase en què es comparin els nombres d individus de les dues espècies que interaccionen, les trajectòries mai no poden ser corbes senzilles i tancades, sinó espirals obertes, com escau a la dinàmica successional en conjunts de moltes espècies i, per les tensions generades, a l evolució en el sentit darwinià; perquè amb el temps cal anticipar una reducció de l amplitud de les fluctuacions i, per tant, un estalvi en el sentit termodinàmic. Els ecosistemes són els bressols i els escenaris de l evolució, i les interaccions en-
ORGANITZACIÓ DE LA BIOSFERA I REFLEXIONS SOBRE EL PRESENT I EL FUTUR DE LA NOSTRA ESPÈCIE 51
tre les espècies generen una cursa comuna, amb una resultant obligada que opera com una mena de vis at ergo del qual ningú no s escapa i que porta totes les espècies implicades a noves situacions, on qualsevol equilibri aconseguit tampoc no serà més que transitori. Tot això, és clar, suposant que s acompleixi el model de Volterra, que correspon a la successió ideal, que mai no es desenvolupa sense entrebancs. La complexificació de l ecosistema en el curs de la successió ecològica no pot deixar d influir sobre l evolució de cadascuna de les espècies implicades, ja que contínuament es troben subjectes a pressions que varien de manera sistemàtica. Tals pressions ofereixen tantes característiques comunes o relacionades entre elles en part com a fruit de l evolució passada que no poden deixar de donar algun sentit, definible a posteriori, a les tendències evolutives. I possiblement entre els resultats més previsibles d aquesta dinàmica es troben l augment de mida i l allargament de la vida individual en la majoria de les entitats preses en el joc, almenys en les que ocupen nivells tròfics més alts. És notable que la manera tradicional de veure-ho sigui tan poc darwiniana i tan poc científica que no hagi acceptat com a cosa corrent haver de prendre en consideració els valors extremadament petits en les pressions i en les efectivitats d una selecció molt persistent. Es prescindeix del temps, cosa que potser lliga amb la predilecció de l ecologia tradicional per l estadística no bayesiana. Els paradigmes de Kuhn serien senzillament un altre exemple de dinàmica successional, sota l imperi d un vis at ergo de tipus cultural, del qual no es surt si no és en forma de daltabaix. La mateixa dificultat d entendre les asimetries es propaga, tant en l antiga consideració de la successió com en la moderna del canvi global.
ALTRES ASPECTES REFERENTS A TERMODINÀMICA I ORGANITZACIÓ En el seu origen, la termodinàmica s interessà exclusivament o de manera principal en els fluids. En desenvolupar el concepte d entropia, no s esmentaven les parts sòlides dels respectius sistemes. Es discuteix el destí dels fluids, però no, per exemple, el de les parets dels cilindres de les màquines de vapor, o l estructura d un aparell circulatori precís, on poden quedar empremtes de desgast o de reconstruccions i, per tant, testimonis del passat interpretables com una informació, el coneixement de la qual ajudaria eventualment un observador extern a reconstruir part d una història. El cert és que amb els canvis d energia, part d aquesta no resulta ja mai més a l abast, però la seva degradació ha pogut deixar una empremta material que decanta, en un o en altre sentit, les propensions o probabilitats assignables a possibles esdeveniments futurs. Si es miren les coses més senzillament, tenint en compte la fàcil producció de còpies a bon preu i la selecció natural, s explica l èxit de la vida. L esplet de creació del món orgànic (en termes d informació) es correspon a la sumació del que es considera com a augments d entropia, associables a tots els canvis físics corresponents ocorreguts fins al moment de l observació. Estem acostumats a modelar i expressar el canvi demogràfic segons una taxa a l estil de l interès compost i suposem que aquesta taxa és influïda per la densitat momentània que té la població a la qual s aplica, en relació amb la capacitat de suport del corresponent entorn, que acaba frenant el propi increment quan la densitat ja assolida és prou gran. Diguem que si la població momentània és N, la màxima població tolerable és K, i la taxa instantània i efectiva de multiplicació r, ja des de Pierre-François Verhulst (1804-1849) se suposa que l augment va de-
52 R. MARGALEF
creixent i s anul·la finalment quan la població N arriba al seu límit superior que, anomenarem K; escriurem:
FG H
IJ K
FG IJ H K
dN N r = rN 1 = rN N2 dt k K Aquest model és d aplicació molt general i l efecte de frenada pot ser de naturalesa molt diversa; fins pot incloure raons culturals com les que es manifesten en la limitació dels naixements entre els humans. Es pot generalitzar qualsevol model d aquesta mena, posant:
dN = rN - aN 2 - bN 3 - cN 4 dt Expressió que podria acceptar també potències no enteres. Aquesta expressió es pot aplicar a molts processos de regulació per retroalimentació com és, per exemple, l entrada de calor a la Terra, que depèn del que rep del Sol (R) i és poc variable, i la seva emissió vers l espai, que és proporcional a la potència 4 de la temperatura de la superfície irradiant, de manera que hi ha regulació, ara en la forma dT = aR bT4. És clar que el detall de la distribució de l emissió en cada moment i en cada punt i la manera com cal integrar-la, depenen de l albedo de la superfície del planeta. Expressions d aquesta mena resulten força útils per a comparar les influències de factors diversos entre d altres els que són funció de la densitat de població sobre diferents situacions complexes i només cal recordar que la potència 3 pot aparèixer en solitons, a manera d ona única o fluctuació senzilla que arriba i se n va. També permet entendre millor les fluctuacions en sistemes segons si estan controlats a través dels nivells tròfics inferiors (bottom-up), com succeeix normalment al començament de les proliferacions del plancton, o bé en els nivells
superiors, cosa que s escau més sovint a mesura que passa el temps (top-down control). Remarquem que la successió de les dues modalitats de control, primer bottom-up, després top-down, es reconeix també en els daltabaixos socials. Una aproximació comparable seria d aplicació a subsistemes elementals compostos per tres poblacions o sistemes vius reactius, sistemes que són intrínsecament inestables. Potser la terna més durable seria amb dos circuits paral·lels de retroalimentació negativa i amb el tercer circuit positiu (actuaria com a desestabilitzador, el que portaria a la llarga a la pèrdua de la relació triangular). Dins la successió ecològica, cal esperar, com a resultat d un sistema complex de regulacions, una certa coincidència en els estils de canvi vers el futur, que tal vegada operen sobre l evolució de totes i cadascuna de les nissagues preses en el joc, com ja he deixat entendre. Crec que es justifica parlar d una força resultant de la successió, com un sistema de pressions de selecció que actuen de manera paral·lela i fatal, inescapable, com el que ja s ha dit: un vis at ergo; perquè unes espècies creixien més (estaven millor adaptades) a una situació passada i altres ho fan a la present o ho faran a la futura. Per altra part, sabem la importància de la mida de les diferents entitats individuals i la relació que té amb la seva persistència. Realment, queda molt a fer en l anàlisi de les interaccions, que ha d incloure la consideració de les relacions d espai entre els individus, problema que els ordinadors faciliten encara ara amb relativa adequació. L evolució d un depredador que interacciona successivament amb diversos individus presa, amb la possibilitat d aprendre de manera més directa, ha de ser diferent de l evolució de la presa per a la qual el contacte amb el depredador de torn serà únic i fatal. L observació de fronteres naturals, més o
ORGANITZACIÓ DE LA BIOSFERA I REFLEXIONS SOBRE EL PRESENT I EL FUTUR DE LA NOSTRA ESPÈCIE 53
menys persistents, és font de consideracions força instructives. COMPONENTS ENDOSOMÀTICS I EXOSOMÀTICS Les estructures vives i l energia que capten i transformen, en general interiorment, es qualifiquen apropiadament d endosomàtiques. En el cas de l espècie humana estem familiaritzats amb estructures exosomàtiques (habitacles, vies de comunicació, instruments, vehicles, vestits...), a què corresponen energies igualment exosomàtiques (energia del foc, del vent, del carbó i dels hidrocarburs fòssils, energia nuclear...). És evident que els formiguers, vespers i termiters són veritables estructures exosomàtiques socials, confegides i disposades pels respectius insectes. La fusta té moltes característiques exosomàtiques: fa principalment de suport, però té una funció important en el transport i ha tingut una posició decisiva en l evolució de la vida vegetal i explica l èxit que ha tingut en l ocupació de la superfície dels continents. El sistema fotosintetitzador dels vegetals està organitzat de tal manera que no s atura automàticament quan arriba el moment en que ja no pot continuar la síntesi de la més genuïna materia vivent, que sempre conté fòsfor com en els àcids nucleics, perquè s ha esgotat completament la disponibilitat de l esmentat element. Es podria comparar a la dinamo d un cotxe, que pot seguir voltant quan la bateria ja està carregada. Aleshores, en el cas dels vegetals vasculars, el poder reductor que ve amb els fotons de la llum absorbida acaba fent-se efectiu altrament i de manera que podria semblar menys rellevant per a la vida del que és la multiplicació de cèl·lules completes. Normalment, aleshores s utilitza el poder químic de reducció i no solament per fer passar el nitrat a nitrit en
l aigua dels oceans, o fabricar fusta (cel·lulosa i lignina), sinó també per produir hidrocarburs diversos: terpens, essències de plantes aromàtiques, tòxics potents com els de les dinoflagel·lades del plàncton (aigües roges) o altres menes de secrecions en hemípters i tèrmits, cases d apendiculàries i de briozous... Una vegada un arbre ha desenvolupat un tronc poderós, fa ombra a les altres plantes de menor altura i té capacitat per aspirar, més avall, una major quantitat d aigua del sòl, amb els nutrients que pugui contenir. La dominància així aconseguida fa que ja no valgui la pena que l arbre entri en competència per aspectes menors o secundaris. Potser per això l evolució es torna aleshores relativament lenta, amb el resultat que la vegetació arbòria sovint presenta característiques més arcaiques que l herbàcia associada. I, amb un paral·lelisme evident, el poder de la nostra cultura opera, per altra part, com un fre efectiu sobre vies possibles de futura evolució dins de la nostra pròpia nissaga. ECOLOGIA I ECONOMIA Quan en l estudi de les interaccions arribem a l àmbit humà, cal prendre en consideració la fabricació i l ús de tota mena d eines i d altres atuells. Aquests semblen entrar en un procés d evolució pròpia que repeteix l evolució de línies filètiques naturals, com es constata que ocorre en vestits, instruments musicals, vehicles, llibres, ordinadors... Sovint, en la història de cada tipus d artefacte, vaixells, avions, aparells fotogràfics... es reconeixen lleis o regularitats molt anàlogues a les que mostra l evolució de nissagues d organismes. Es poden qualificar d exosomàtics els materials, les estructures i fins i tot el metabolisme, quan són perifèrics i, en aquest sentit, pròpiament aliens a l organisme. Molts
54 R. MARGALEF
rizòpodes i tintínnids, les larves de tricòpters i altres insectes aquàtics viuen dintre de cases fetes de materials diversos. Aquesta ampliació perifèrica de les unitats vitals ha representat un avantatge evolutiu cert per a tots els organismes que l han adoptada i possiblement resulta transcendental en l organització de la present biosfera. L ús de materials i, especialment, d energia d origen extern ha tingut una importància cabdal en l evolució de la humanitat. Ha anat associada amb el que es pot qualificar de transmissió i evolució cultural quan les formes de comportament i l acumulació de coneixements es propaguen per imitació o ensinistrament, afavorits a través d una selecció natural prèvia del suport necessari, com si diguéssim de l ordinador personal que portem incorporat de naixença, el contingut de la memòria del qual resulta ampliable a gratcient, fins al punt que, al seu torn, ha estat capaç d enginyar processadors exosomàtics d informació suplementària. A LA RECERCA D UNA VISIÓ GLOBAL Reflexionant sobre la nostra Terra i la seva coberta viva podríem arribar a veure el món com una obra d art. No existeixen tots els elements ni tots els compostos químics imaginables. Algú hi podrà veure la gràcia del transcendent. Davant d una obra d art genuïna, generalment no pensem almenys jo no hi penso en altres imatges o no-imatges que hauria pogut expressar un artista, el mateix artista. L Univers es pot veure amb la qualitat d una obra d art que porta una informació no gratuïta que encapsula almenys tota una obra passada, difícilment o gens repetible i, segurament, encara més coses. ¿Hem de considerar l Univers com una obra d art, perquè és un entre un nombre infinit d universos possibles o pensables i nosal-
tres hem arribat per selecció natural a atrevir-nos a fer consideracions d aquesta mena? ¿I, per què, en aquest món, queda tant d espai per al sofriment i per a la culpa? No és bo enlairar-nos massa. Molt menys quan pensem que, al costat d aquestes emocions més o menys genuïnes, continuem subjectes a pressions de qualitat dubtosa com, per exemple, l imperi del diner, que es podria veure com a expressió, limitada a la nostra espècie, d un equivalent o afegit a l instint de territori que compartim amb molts animals i que porta fins a l avidesa més exagerada. Georgescu Roegen és dels pocs economistes que ha intentat una aproximació crítica entre les dues ciències que comencen amb el prefix eco. Suposem que les plantes vasculars serien un model més apte de l economia que les Chlamydomonas, encara que només sigui per allò que l evolució d una fàbrica és la continuació de l evolució d un producte. Un arbre fa ombra per molts anys i pot extreure aigües de fondàries que poden arribar molt avall. La simbiosi amb fongs és una ajuda que sovint s hi afegeix. La mida d un arbre és comparable amb extensió al territori d una colònia d animals (formiguer, vesper, ciutat...). Aquestes i altres consideracions, que són bones de fer, ens poden portar a generalitzar diversos aspectes de la naturalesa i sospitar que la propietat, el diner, tenen molt en comú amb l expressió del comportament territorial «d altres animals superiors». RESPONSABILITATS VELLES I NOVES Moltes d aquestes qüestions ni esclareixen la problemàtica real ni s avenen gaire bé amb les propagandes de moda, en el terreny que se suposa propi d una «ecologia assenyada». Ens podrem preguntar si no caldria canviar els símbols de la defensa de l entorn i no defugir ja més la discussió dels temes
ORGANITZACIÓ DE LA BIOSFERA I REFLEXIONS SOBRE EL PRESENT I EL FUTUR DE LA NOSTRA ESPÈCIE 55
que estan més relacionats amb l evolució cultural, els canvis socials i el poder financer. No crec que sigui jugar net posar preu als ecosistemes mundials, com alguns han intentat ja fer, i tampoc crec que això es pugui justificar mirant l entorn simplement com a espai, escenari i objecte de competició. M excuso d insistir sobre qüestions en les quals discrepo sovint de la majoria i a propòsit de les quals he pogut convèncer molt poca gent amb els meus arguments. En un llibre recent escrivia que, pel que toca a l ecologia, preferia els poetes als advocats, una confessió que, segons sembla, no l han vist gaire oportuna la majoria dels pocs que li han concedit una mínima atenció. A més dels problemes presents, els temps contínuament ens n apropen altres d inèdits i realment preocupants. Per exemple, sospito i temo que d aquí a poc temps es farà generalment acceptable l abocament massiu de deixalles al fons dels oceans. Realment, l estat present de totes les qüestions relatives a abocadors, incineradores i reciclat de residus no ofereix un futur afalagador. La revista Journal of Marine Systems (vol. 14, núm. 3-4, 1998) ha publicat un Special Volume amb prop de dues-centes pàgines dedicades al tema «Abyssal Seafloor Waste Isolation: a Technical, Economic, and Environmental Assessment of a Waste Management Option». Admirem la finor del redactat, delicadament i ecològicament correcte pel que estem acostumats. Interpreto aquest recull en el sentit que ja no hi ha qui aturi el proper abocament de brossa i deixalles de tota mena, conduïdes tal vegada per vaixells escombriaires de la mida de superpetroliers, fins a les grans fondàries marines. Puc dir que no són els primers tempteigs en aquest sentit, però potser ara va de bo, perquè les deixalles se ns mengen i en el projecte hi ha molts diners a fer. Possiblement algunes almoines podran anar als països poc desenvolupats
que puguin quedar prop dels abocadors. I el més probable és que els seus dirigents les inverteixin immediatament en armament. La recent exposició universal de Lisboa (1998) donà peu a una discussió més general i molt parcial d alguns temes d ecologia marina (Science, núm. 281, pàg. 190-240), especialment amb un article signat per Costanza i altres (1998), en el qual els interessos econòmics es manifesten plenament. A favor del projecte, en un sentit molt ampli (sustainable governance of the oceans) cal reconèixer que, en els temps presents, els grans fons oceànics estan ben ventilats, potser com mai no ho havien estat. És per això que actualment estarien absorbint molt diòxid de carboni de l atmosfera, si no fos per la vàlvula biològica dels estrats superiors, vàlvula que, d altra banda, com segurament deuran fer valer els paladins del nou projecte, ens podrà protegir tanmateix del fet que un futur excés de CO2 en el mar pugui fugir vers l atmosfera. Cal canviar els símbols de defensa de l entorn. Principalment, no defugint les qüestions de l evolució social i del poder financer, un tema encetat per Georgesco Roegen, l obra fonamental del qual val la pena que sigui coneguda per ecòlegs i ecologistes. Publicada en 1971, ha estat recentment editada en castellà (Fundación Argentaria, 1996). Les relacions entre economia i ecologia han estat considerades també per uns altres autors més proper a nosaltres (Martínez-Alier i Schulnepmann, 1987). De fet, la societat actual queda sota l imperi del diner, que és l expressió ampliada, pràcticament sense límits, del que es pot veure com un equivalent de l instint de territori. Aquesta qüestió es complica cada dia més. El diner en circuits d especulació ara sobrepassa en més de cinquanta-cinc vegades la circulació monetària que correspon, en sentit invers, a la circulació de béns i serveis. De manera que la quantitat de diner en
56 R. MARGALEF
els esmentats circuits d especulació ha arribat a tenir una capacitat de control fora mida. El diner lubrifica relacions i permet l explotació descarada de la resta, per una part relativament limitada del sistema econòmic. El tronc dels arbres i el territori del formiguer són certament capitals i un es podria preguntar fins a quin punt el diner és una mena d equivalent cultural de «l esperit del formiguer». QÜESTIONS SOBRE LA CONSTRUCCIÓ DE LA NATURA QUE ENS RETORNEN DE NOU A LA BIOLOGIA TRADICIONAL Les pàgines anteriors, preparades amb un confessat sentit del deure, expressen una visió càndida i força crítica, espero que amb un punt de subversió, d un ecòleg a l antiga. Poden deixar mal regust, especialment en relació amb la generació de forces internes a la humanitat i el poder que tenen aquestes forces per a crear el que veiem com a injustícies i conflictes. Dit això, proposo retornar a temes més afins a la biologia general i omplir uns fulls més per tractar d atreure l atenció envers algunes regularitats observables i encara poc explorades, relatives al món orgànic. En això seguiré l exemple d un botànic espanyol que, al final d unes pàgines on malparlava d algun col·lega, posava la descripció d alguna espècie nova, per tal que el lector, suposant que conservés una mica d esperit científic, no llancés directament el pamflet a la paperera. La constructivitat de la naturalesa té camins poc explorats, tot i que ara la investigació genètica va reconeixent mecanismes que operen de manera sistemàtica i semblant en l embriologia d organismes aparentment molt diversos. Simplifiquen i acceleren processos històrics i estableixen controls admi-
rables. Suposo que deuen tenir alguna relació amb una expressió molt general del mateix principi de Maupertuis-Volterra ja esmentat. Es tractaria d atènyer, al més ràpidament possible, una situació de relativa estabilitat, després d haver obert noves finestres i possibilitats en un món en perpètua transició, en el qual tota evolució no solament genera alguna cosa nova, sinó que, de retruc, mobilitza canvis que estaven en potència en altres organismes. Les relacions a les quals vull referir-me toquen tant l estudi de l ecologia com qualsevol visió subjectiva més generalitzable de com funciona el món. Sembla que la vida de vegades tingui pressa i altres vegades sembla que no repari en el temps, però sempre acaba trobant solucions relativament senzilles i elegants. En tot cas, molts estaríem disposats a acceptar que la vida aprofita de manera admirable un temps que sembla escolar-se sense remei. Un tema molt general ha de referir-se al control i evolució de la mida dels organismes i de la manera com els canvis de mida es reflecteixen sobre la forma i les funcions. És tema venerable, especialment en alguns dels seus aspectes més espectaculars. Entre nosaltres fou bastant llegit el llibre d Arcy Thompson, On Growth and Form, traduït al castellà, en edició abreujada, amb el títol Sobre el crecimiento y la forma. El tema ha interessat molt els paleontòlegs i és el clàssic Tempo and mode in evolution, de G. G. Simpson (1944) que es pot dir que actuà durant bastants anys com un estímul persistent. L evolució és l aventura dels camins infinits. El que ara escriuré s ha de prendre més com a suggeriment que no pas com a anàlisi acabada i em detindré especialment en temes poc fressats i que fan referència principalment a organismes de mida petita i mitjana. Tant en els organismes com en les cèl·lules, el futur no està contingut en el passat ni es pot predir a través d aquest, i les
ORGANITZACIÓ DE LA BIOSFERA I REFLEXIONS SOBRE EL PRESENT I EL FUTUR DE LA NOSTRA ESPÈCIE 57
possibilitats de nous viaranys i de futures exploracions deuen ser moltes i semblen indeterminades. Hi ha formes de variació amb regularitats que fan pensar. Així entre clorofícies colonials i cenobials (Volvox, Gonium, Pediastrum, Scenedesmus, Hydrodictyon...), el nombre variable de successives divisions vegetatives que porten a una nova generació influeix sobre la quantitat (4, 8, 16...) i, el que és més important, també sobre l ordre en què es disposen les cèl·lules resultants, quan romanen associades en una unitat de grau superior. Entre altres propietats, aquesta ordenació en l espai condiciona també la relació entre nombre de cèl·lules perifèriques i nombre de cèl·lules centrals, i aquesta relació influeix, al seu torn, sobre aspectes de mobilitat, sedimentació, probabilitat d ingestió per animals i capacitat de creixement de les respectives entitats compostes. Es donen, tanmateix, fluctuacions regulars que varien en dependència de les localitats, les condicions de vida i el pas de les estacions. Hi hauria altres històries meravelloses per explicar algú ho farà algun dia que fan referència a mides, formes, vida i capacitat de competició en grups d espècies d artròpodes, quan entre aquestes espècies existeixen relacions de parentiu indubtable. Comparant espècies prou afins per ser classificades dins d un mateix gènere, Hutchinson s interessà per la diferència de mida entre parells d espècies veïnes, que hom podria esperar que fos suficient per fer que les esmentades espècies tinguessin necessitats i règims de vida no coincidents, en un grau tal que permetés a les dues espècies coexistir en un mateix entorn, per haver alleugerit els efectes, esperables o possibles, de la competència entre unes i altres. Això Hutchinson ho exposa per primera vegada en un article, el títol del qual comença per «Homage to Santa Rosalia...», per recordar que el problema li havia suggerit l observació de
dues espècies d hemípters coríxids (adults de Corixa punctata, de 13-15 mm, i de Corixa affinis, de 8-9 mm) que convivien en un aljub al costat de la cova de santa Rosalia, en l entorn de la ciutat de Palermo. No faltà el mal educat que li replicà, en un article encapçalat: «Santa Rosalia was a goat», probablement fent al·lusió a la identitat dels ossos trobats en la tomba de la Santa (es veu que aquest autor ignorava que en els països més devots, entre els quals Espanya, els ossos dels sants eren tan apreciats fins i tot comercialment que sovint eren extrets dels respectius sarcòfags i substituïts per peces d origen biològic divers, a les quals no es demanava altra cosa que la de fer un embalum adient). Tornant a la diferència de mida necessària per evitar una competició intensa, poc després, el mateix Hutchinson em va comentar personalment la seva perplexa admiració en comprovar que en joguines d infants, en el seu cas tricicles produïts en mides diverses, la relació entre mides consecutives era semblant a la trobada entre coríxids coexistents. Em sembla que el mateix passa, més o menys, amb olles, cassoles, paelles i altres estris d ús comú. El mateix tema ha estat comentat per Eadie, Brookhoven i Colgan (1987) que afegeixen un nombre considerable de referències, encara que creuen que la constant suggerida inicialment per Hutchinson pot ser un artefacte. Un examen més acurat porta a veure que, almenys en alguns grups d artròpodes, les proporcions que assegurarien una suposada absència de competició seriosa podrien ser les mateixes que existeixen entre els successius estadis de creixement (mudes) en una mateixa espècie. Més senzillament, si el volum es duplica a cada muda, com passa sovint, les corresponents mesures lineals, suposant que les proporcions es mantinguin semblants, haurien de variar com l arrel cúbica de 2, és a dir, entorn d 1,3.
58 R. MARGALEF
En els cladòcers (dàfnies i parentela), per comprovar la duplicació del nombre de cèl·lules a cada muda, basta comptar les cèl·lules que es veuen delimitades formant un reticle en les valves que envolten el cos. El nombre es duplica, certament, a cada muda. En aquests animals, la fertilitat no sempre s aconsegueix a la mateixa edat i el creixement pot no ser tan regular ni el nombre de mudes tan fix com en els insectes. Les ales dels insectes són tan apropiades com les valves dels cladòcers per comptar les cèl·lules i aquesta facilitat esdevé més còmoda si a cada cèl·lula li correspon un petit pèl, o bé suporta escates de distribució regular. Era sabut que dintre d una mateixa espècie, les mosques més grosses ho són perquè tenen les cèl·lules més grosses, no perquè en tinguin més, encara que «oficialment» (almenys en la revista Nature) no se n hagi parlat fins fa relativament poc (Alexander, 1995). Ara bé, dins d un mateix grup taxonòmic d insectes, un troba formes en proximitat taxonòmica i filogenètica que difereixen, o difereixen també, per valors múltiples en el nombre de cèl·lules de les ales. Això passa entre mosques, papallones, diversos grups de neuròpters... Fins al punt que podríem dir que hi ha mosques del número u, del dos... fins a les grans Pollenia. Cal dir que la possible variació en la mida de cada cèl·lula, dins d aquest esquema en general, és relativament molt menor i, en part, depèn de factors externs, com pot ser la temperatura. És per a mi un deure molt plaent agrair a la professora Mercè Durfort tot un seguit d excel·lents fotografies d ales de mosques que facilitaren sensiblement aquestes observacions. No és estrany, doncs, que, per exemple, les llargades anteriors de les ales de papallones diurnes mostrin majors freqüències entorn de mides fixes, per ventura i aproximadament, de 10, 14, 20, 28, 40, 57, 80 mm, en forma d una progressió geomètrica de
raó propera a l arrel quadrada de dos, perquè les ales són òrgans de poc i semblant gruix, llurs cèl·lules són aplanades, i la seva variació majorment restringida al pla de l ala. Però els pesos respectius dels insectes enters deuen variar d acord amb una sèrie de duplicacions successives: 1, 2, 4, 8... Una conseqüència és que la càrrega per unitat de superfície alar no s incrementa tant com altrament succeiria a mesura que augmenta la mida d un insecte volador, el que ofereix un avantatge gens discutible i aprofitable del punt de vista de l aeronavegació. Val a dir que fa temps que els entomòlegs s havien adonat de regularitats d aquesta mena, expressades per l anomenada llei de Dyar, que acceptaria relacions mètriques lineals aproximadament d 1,4 entre estadis succesius del desenvolupament. En bona mecànica de la vida, sempre deu ser més planera la duplicació que la reducció a la meitat, que sembla que deuria implicar un major grau de dificultat o conflicte. Quan sorgeixen, de manera sovint casual, temes com l indicat, penso en Schlicher, que el 1926 demostrà el canvi relativament ràpid en les dimensions dels eritròcits de peixos en funció de la temperatura a què havien estat recentment exposats. Que jo sàpiga, ningú no s ha preocupat de proposar alguna hipòtesi explicativa, per ventura, de posar-ho en relació amb les freqüències relatives dels ponts d hidrogen en l aigua, sota temperatures diverses. Relacions semblants entre mida i temperatura són manifestes en les valves de diatomees i queden reflectides en les fluctuacions regulars, presumiblement anuals, de diatomees del gènere Aulacosira (antigament Melosira) que formen una gran part del rebliment del llac fòssil de la Cerdanya, dels temps miocènics. Hi ha moltes coses a fer encara i a cost relativament baix, en temes que poden semblar trivials, però que no crec que siguin curiosi-
ORGANITZACIÓ DE LA BIOSFERA I REFLEXIONS SOBRE EL PRESENT I EL FUTUR DE LA NOSTRA ESPÈCIE 59
tats intranscendents, sinó que tenen real importància en ecologia i també en evolució. BIBLIOGRAFIA ALEXANDER, R. M. (1995). «Big flies have bigger cells». Nature, núm. 375, pàg. 20. BEATON, M. J.; P. D. N. HEBERT, (1999). «Shifts in postembryonic somatic ploidy levels in Daphnia pulex». Hydorbiologia, núm. 394, pàg. 29-39. COSTANZA, R. et al. (1997). «The value of the world s ecosystem services and natural capital». Nature, núm. 387, pàg. 253-260. COSTANZA, R. (1998). «Principles for sustainable governance of the oceans». Science, núm. 281, pàg. 198199. DIXON, A. F. G.; P. KINDLMANN, (1999). «Cost of flight apparatus and optimum body size of aphid migrants». Ecology, núm. 80, pàg. 1678-1690. GEORGESCO ROEGEN, N. (1971). The entropy law and the economic process. Harvard Univ. Press. Traducció: 1996. La ley de la entropía y el proceso económico. Madrid: Fundación Argentaria. HSÜ, K. J. (1995). The geology of Switzerland. Princenton NJ.: Princeton University Press. HUTCHINSON, G. E. (1959). «Homage to Santa Rosalia or
why are there so many kinds of animals». Amer. Natur., núm. 93, pàg. 155-160. MARGALEF, R. (1974). Ecología. Barcelona: Omega. (1991). Teoría de los sistemas ecológicos. Barcelona: Universitat de Barcelona. (1997). «Our biosphere». Ecol. Inst., Oldendor/luhe., pàg. 1-176. MARTÍNEZ ALIER, J. ; K. SCHLUEPMANN, (1987). Ecological economics. Energy, environment and society. Oxford: Basil Blackwell. POPPER, K. R. (1982). Postcript to the logic of scientific discovery. Traducció del text i apèndixs: La lògica de la investigació científica. Barcelona: Laia. SALÓ, J. et al. (1986). «River dynamics and the diversity of Amazon lowland forest». Nature, núm. 322, pàg. 254-258. SCHLICHER, J. (1926). «Vergleichende physiologische Untersuchungen der Blutkorperzahlen bei Knochenfischen». Zool. Janrb. Abt. Allgem. Zool. Unit. Physiol, núm. 43, pàg. 121-200. SIMPSON, G. G. (1944). Tempo and mode in evolution. Nova York: Columbia Univ. Press. THOMPSON D ARCY, W. (1961). On growth and form. Cambridge: Cambridge Univ. Press. Traducció del text abreujat: Sobre el crecimiento y la forma. Madrid: Blume. VOLTERRA, V. (1937). «Principes de biologie mathématiques». Acta biotheor., núm. 3, pàg. 1-36.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 61-66
REFLEXIONS ENTORN D ASPECTES SOCIALS I DE LA SALUT IGNASI ARAGÓ Pediatre, Barcelona. Adreça per a la correspondència: Carrer Avió Plus Ultra, 6, pral. 2a. 08017 Barcelona.
PEDIATRIA La nostra aportació al debat de la Societat Catalana de Biologia «Cap on va la biologia moderna» de 1970 començava: «La ciència biològica creix en quantitat i qualitat, i els seus conceptes s endinsen en territoris veïns. La vella ratlla de la frontera ja no val, ara és un país nou, diferent, i encara poc explorat. En medicina es veu que l arbre, la torre de la ciència, s aixeca important i poderosa i assoleix èxits, premis, llorers, prestigi; però és difícil, després, de traduir aquesta ciència en assistència» (Aragó, 1971). En aquell treball vam comentar àmpliament els conceptes dels períodes preconcepcionals, prenatals i perinatals. Ara farem esment d un treball recent titulat Registros Poblacionales de Defectos Congénitos en España (Peral et al., 1998). En ell se ns diu que els defectes congènits (DC) són actualment la primera causa de mortalitat perinatal i una de les primeres causes de
morbiditat infantil en els països subdesenvolupats, i que desconeixem la causa del 80 % dels DC. La primera agrupació internacional de registres de defectes congènits va començar a funcionar l any 1974 i actualment recull informació de vint-i-quatre registres que pertanyen a vint-i-nou països. A Espanya, el seu representant és l Estudi Col·laborador Espanyol de Malformacions Congènites (ECEMC), el qual funciona des de 1976. Hi ha quatre registres en ple funcionament, amb diferents ubicacions geogràfiques: País Basc, Vallès, Astúries i Barcelona. Cadascun treballa amb períodes de detecció d anomalies diferents; comptant que tots comencen a partir del període prenatal, el del País Basc comprèn fins al final del primer any de vida, el del Vallès fins als sis mesos, el d Astúries fins a la primera setmana de vida i el de Barcelona fins als dos o tres primers dies de vida. La cobertura de l ECEMC és d uns 86.000 naixements, co-
62 I. ARAGÓ
rresponents a una població de 5.720 milions d habitants. Cadascun d aquests centres avalua els DC trobats, per ordre d importància: síndrome de Down, hipospàdies, llavi leporí, distròfies dels membres, espina bífida, i un llarg etcètera fins a vint-i-tres DC (Peral et al, 1998). Quant a les substàncies que poden produir lesions genètiques, n hi poden haver unes quantes i poden tenir, a més, diferents moments d actuació. Per exemple, a Portland, Oregon (Costa del Pacífic), s ha identificat una substància química derivada de la vitamina A, la qual és responsable d unes greus deformacions que pateixen gripaus i salamandres, que acaben morint colonitzats per fongs. Situacions similars s han produït a indrets de Panamà i Austràlia. Els avenços de la genètica permeten d anar identificant gens relacionats amb diverses malalties: metabòliques, de l aparell locomotor, d algunes vísceres, dels òrgans dels sentits, etc.; fins i tot es pot pensar que es trobaran altres indicadors que podran desvelar mecanismes de malalties mentals. Cada vegada més, al pediatre li caldrà afrontar les implicacions ètiques d aquests avenços. Un camp obert a l interès dels pediatres és l estudi sobre bessons monozigòtics, dizigòtics i fills adoptius, en relació amb l intel·lecte i amb la mesura estadística de l heretabilitat. Una cita del sociobiòleg Edward O. Wilson, proporcionada per Margarita Rivière (1998), diu: «tot cervell humà no neix essent una tabula rasa que l experiència s encarrega d omplir, sinó que és un negatiu exposat, en espera de ser introduït en el líquid revelador. Segons això, l home neix gairebé predeterminat pels gens i, per tant, no hi ha llibertat, ni capacitat d elecció, ni responsabilitat; la naturalesa a través dels gens no pot dominar-se». Aquesta és una cita que estimula la discussió i la investigació.
SOBREPOBLACIÓ I L AGLOMERACIÓ DE LES POBLACIONS Un altre tema que vam tractar als anys setanta fou el de malalties singulars d esgotament que pateixen alguns animals situats en espais reduïts. Algunes d aquestes malalties són: arteriosclerosi, lesions de les càpsules suprarenals, disminució de la fertilitat, inversió de la libido, etc. El tema de la sobrepoblació ha estat tractat recentment pel professor Ramon Parés (1994) en el llibre La catàstrofe i el catastrofisme, del qual reproduïm uns paràgrafs: L Homo sapiens ha transformat profundament el medi, aconseguint constantment una mitjana de naixements superior a la de morts. L any 6.000 aC, quan l agricultura i la pastura eren encara a la seva infància, la població humana total es calcula que estaria al voltant dels 10 milions. A l època de la Gran Piràmide, probablement arribava a uns 40 milions. En temps de Colom a 500 milions. En temps de Napoleó a 1.000 milions. A finals de la Primera Guerra Mundial a 2.000 milions. I, ara, la població humana ha ultrapassat els 5.000 milions. La taxa de creixement de la humanitat avui està ben poc per sota del 2 %. Encara que es rebaixi una mica més, és difícil evitar que en un temps no massa llarg, d un o dos segles, no s arribi als 50.000 milions d habitants. En qualsevol circumstància, un augment indefinit no pot continuar (...) La humanitat és com una massa viva que augmenta contínuament de grandària, amb un intercanvi de matèria i energia amb el medi cada cop més gran. Amb una població estable de 2.000 milions d habitants no hi hauria avui cap problema que no pogués ser tècnicament solucionable (...) Si ens parem a reflexionar sobre la perspectiva de l augment de població, hom pot evitar l ombra funesta del més radical catastrofisme. La massa actual de la humanitat és d uns 200.000 milions de Kg. Continuant el creixement d acord amb la taxa actual del 2 %, l augment en 1.800 anys donaria una massa igual a la de tota la Terra; pensem que 1.800 anys és només el temps que ha transcorregut des de l emperador Marc
REFLEXIONS ENTORN D'ASPECTES SOCIALS I DE LA SALUT 63
Aureli fins avui. Els astrofísics contemporanis donen a tot l Univers una massa de 5x1027 vegades la de la Terra, malgrat l enormitat d aquesta xifra, és la massa que tindria la humanitat després de 5.000 anys de continuar creixent al mateix ritme d ara. Aquest període de 5.000 anys és el que ha transcorregut des de la invenció de l escriptura».
Aquest tema ha estat presentat en l exposició La Ciutat Sostenible organitzada pel Centre de Cultura Contemporània de Barcelona, l any 1998. MALALTIES DE LA CIVILITZACIÓ Segons la definició de Sitges (presentada en la Reunió de l Acadèmia de Ciències Mèdiques de l any 1971), s entén per malaltia de la civilització la malaltia promoguda, mantinguda o agreujada per la insuficient adaptació individual o social a l ambient o tipus de vida que la mateixa naturalesa de l home va produint de manera progressiva. Mesurar científicament els nivells de salut no és senzill. Attilio Machiavello va introduir el concepte de sanimetria com a «ciència destinada a mesurar, valorar i avaluar els fets sanitaris susceptibles de ser expressats en forma quantitativa». A continuació, i a títol d exemple, es comenten breument alguns dels factors més comunament implicats en les malalties de la civilització: les deixalles i el soroll. La humanitat d avui, tècnicament poderosa, es troba assetjada per una massa creixent de residus nocius, els quals són incompatibles amb la vida damunt el planeta. Especialment enutjoses són les deixalles nuclears; actualment hi ha setze països coneguts oficialment com a posseïdors d armament nuclear. El segon factor és el soroll. És evident que la humanitat no pot disposar d una capaci-
tat il·limitada d adaptació a la creixent sobrecàrrega de soroll. Unes dades publicades al diari La Vanguardia (24 d agost de 1998) amb referència a un estudi realitzat en el quadrat urbà de Barcelona que comprèn els carrers Balmes, Urgell, Aragó i París (la zona inclou el Parc de Bombers i l Hospital Cínic), posen de manifest que «en la zona afectada, el soroll arriba a noranta db d intensitat, tant de dia com de nit i és causat per 365 ambulàncies diàries (133.000 a l any), quarantatres sortides diàries de cotxes de bombers (16.000 l any), dos mil autobusos diaris, a què cal afegir el trànsit de camions, la recollida d escombraries i els serveis de neteja». Des del punt de vista mèdic, el grup de malalties de la civilització és molt semblant a la polipatologia dels procés d envellir: símptomes de fer-se malbé progressiu sense un futur immediat de recanvi. Els físics ens parlen de la inèrcia com la resistència a moure s que presenten els cossos tant si estan en repòs com si estan en moviment; la massa del cos s oposa a l alteració que se li vol fer. Un cos pesant o un cos en moviment necessita una força superior per vèncer la inèrcia. Aquesta és la primera llei de Newton. Com a paral·lelisme amb aquesta llei, podríem dir que qualsevol de les malalties de la civilització es comporta com una gran massa. Aquestes malalties poden ser produïdes per diversos factors, com per exemple: L escalfament de la Terra: alguns països, com França, Alemanya i Holanda, renuncien al seu compromís de reduir les emissions de CO2 a l atmosfera (acords de Kyoto del 18 de setembre de 1998). L autisme dels països rics, cada vegada més rics, en detriment dels països pobres, cada vegada més pobres. Un model de ciutat on l agressivitat individual acabi transformant-se en agressivitat territorial (bulímia urbana).
64 I. ARAGÓ
L enigma nuclear. La sobreexplotació dels recursos, tant en el mar com en la terra. La saturació de l espai aeri i l expansió constant del món de l automòbil. Vistes les malalties de la civilització en conjunt, ens farien pensar en les trames dramàtiques de les tragèdies gregues. A continuació, descriuré algunes reflexions sobre alguns temes que he tractat al llarg de la meva carrera. ELS HOSPITALS Deia Marañón que hi ha persones que en un moment donat inicien una segona professió fonamentada en la primera. En el meu cas no ha estat una professió en el sentit tècnic del mot. Procuraré explicar-ho per si a algun jove li pogués passar el mateix. A l antic Hospital de la Santa Creu hi havia un càrrec, l hospitaler, que era la persona que tenia cura del benestar dels malalts. Jo em sento més hospitaler que no pas expert en res, malalties o hospitals. Potser el terme just per explicar el meu interès pels hospitals és el d adonar-se n. Adornar-se que hi ha alguna cosa que no va bé, però que té solució. Dins d una reflexió personal de passat, present i futur, em cal parlar del procés de desenvolupament hospitalari a Catalunya durant els darrers cinquanta anys. Podríem parlar de tres esglaons progressius: El primer fou des de la Secció d Estudis del Col·legi de Metges de Barcelona, on es va utilitzar un ideograma elemental: un rètol que hi havia per tot arreu i que deia Hospital, Silenci. Al costat, el dibuix d un altre: Estudis sobre Hospitals. Aquest va ser un logotip pueril, però tothom ho va entendre i va funcionar.
El segon va ser el Centre Tècnic d Estudis Hospitalaris (CTEH). Aquest centre va fer, entre altres coses, la planificació assistencial i sanitària de Sabadell, la primera que es va fer a Espanya, la qual va ser seguida de la de la de l Hospitalet, l any 1967, on es comptava amb 250.000 habitants i només seixanta-un llits. El tercer esglaó va ser constituir, amb un nom restrictiu imposat des de Madrid, l Asociación para el Desarrollo Hospitalario del Distrito Universitario de Barcelona, que a més d organitzar els quatre primers congressos nacionals d hospitals va redactar el Pla de Regionalització Hospitalària de Catalunya (1970). El procés hospitalari va anar endavant i una altra fita positiva va ser la reorganització d una quarantena d hospitals comarcals i locals. Amb això s ha comprovat l eficàcia, quant a actitud cooperadora, de les poblacions envers els seus centres assistencials. Els vells establiments, ara renovats, han esdevingut una peça clau de la localitat. Un bon exemple d aquesta evolució és el pas de l Antic Hospital de Pobres de Jesucrist a Moià, primer a asil i després a hospital local. Antigament, a l Escola de Medicina de Seattle, a la Universitat de Washington, es reunia l anomenat Comitè de Vida o Mort. Aquest comitè era l encarregat d escollir els malalts de ronyó que podrien tenir accés als equips de diàlisi. Els membres del comitè entraven a l hospital per portes diferents i, a mig camí, es tapaven la cara. Un cop el comitè estava reunit, el secretari llegia les històries clíniques i la situació personal de cada pacient necessitat de diàlisi i es decidia aleshores qui viuria i qui hauria de morir per manca de recursos. Avui dia aquesta situació es repeteix, tot i que ha perdut aquest dramatisme, el qual ha estat substituït per una raonada argu-
REFLEXIONS ENTORN D'ASPECTES SOCIALS I DE LA SALUT 65
mentació burocràtica: són les llistes d espera, les mancances de sang, les mancances d equips tècnics i un llarg etcètera d altres situacions. El previsible sobreús de l hospital té dos components actius: per una banda velles malalties que rebroten, com la tuberculosi, o bé noves malalties com la sida; per una altra, l augment de l esperança de vida, fet que comporta una progressiva disminució dels mecanismes de la immunitat natural. Podríem dir, a tall de resum, que l hospital d avui és una institució força vulnerable i per diverses raons se n podria veure malmesa la funció mèdica, científica o social. ENVELLIR Tornant de Tel Aviv, em trobava a Roma esperant un avió que em portaria a casa. La zona de trànsit de Fiumicino era una cruïlla de trajectòries; un espectacle acolorit i intrigant. Uns estudiants anglesos amb l escut de l escola cosit a la màniga, dues famílies amb nens petits, cinc homes de negocis amb rostres orientals, quatre monges i, ben a prop, una vintena de turistes de la tercera edat que anaven a Venècia, envoltant la seva guia que enarborava una bandereta com a nucli aglutinant per als seus clients. Assegut al meu davant, un senyor, amb els braços estesos, llegia un diari italià. Una frase publicitària escrita en lletres grosses ocupava la pàgina sencera: Si è vecchio una volta sola: s és vell només una vegada a la vida. Mirant de reüll el grup de jubilats, era fàcil descobrir diferències entre ells: la turista comunicativa i xerraire, el saberut, els que escoltaven, el que llegia una guia, el que s asseu de pressa i, en un grup ben precís, tres o quatre persones que parlen de mals i de remeis, una conversa animada i inacabable, com una roda dels cavallets de fira.
El millor equipatge per viatjar és el to vital, l estat d ànim. El to vital és una expressió d energia. La persona és transformadora de l energia i les coses que li passen al llarg del dia modulen successivament aquest to. Algunes persones, en fer-se grans, el van perdent de mica en mica, en d altres s enfonsa sobtadament. Segons dades del diari Avui, (Jordi Panyella, 30-7-98), la població de Catalunya no sols s està envellint, sinó que les persones grans viuen cada vegada més en pitjors condicions. En total son 185.040 les persones més grans de seixantacinc anys que viuen soles (segons dades del 1996), aquesta xifra suposa poc més del 50 % del total dels 313.115 catalans que viuen sense companyia. Es compta també que entre els setanta i vuitanta anys hi ha quasi cent mil persones que viuen soles i 522 més grans de noranta-cinc anys que també s han de valer per elles mateixes. La majoria d aquests avis solitaris són dones. En aquest ampli grup de persones, les mancances d estil de vida que pateixen intervindran de manera decisòria en la patogènia del seu envelliment. Amb tot això es podrà dir que un dels problemes més greus per a molta gent gran és la manca de comunicació, que inclou la manca de contacte físic. Pel que fa a la mesura del temps, és important diferenciar entre temps cronològic i temps existencial. Entenem per temps cronològic el que mesura el rellotge; aquest regula la major part de les nostres activitats. El temps cronològic configura el món, és l àmbit operatiu dels que compren i venen, diríem que és el centre de la societat de consum. En canvi, el temps existencial és el que està lligat a la vida de cadascú, és el que ens passa i com ens passa. Aquest temps es nota acusadament als hospitals: el pacient que espera l arribada del diagnòstic, el que ja porta uns dies a cures intensives, el que segueix tractaments citostàtics o radiacions, etc.
66 I. ARAGÓ
L ALEGRIA DE FER DES DE TRES ACTITUDS DIFERENTS Un amic meu ha tingut una vida difícil en tots els sentits, tot i que sempre ha estat un home intel·ligent. Quan el vaig veure la setmana passada tenia entre mans l Eclessiastès, escrit pel fill de David, rei de Jerusalem, a mitjan segle III aC. Em va explicar que algú li havia fet un comentari burleta en veure el que llegia i que ell li va contestar: «confiar en l altra vida potser sigui un absurd, però refiar-se del món d avui dia és ben segur cosa de ximples». Un segon amic, també un home intel·ligent, ha estat durant molt de temps una persona activa. Ha vist com les coses canvien més de pressa que els esquemes mentals que tenia per interpretar-les. S ha sortit molt bé d incidències dels seus fills i dels seus néts. Ara llegeix detingudament Marc Tuli Ciceró: Caio Maior de Senectute, però no li fa falta; ell és ja assenyat, raonable, comprensiu. La tercera referència és la veu del basc Imanol Zubero i diu així: «Canviar alguna cosa és comprovar que la realitat és transformable (...) Una anàlisi de la realitat que ens desanimi és una anàlisi mal feta. Un moviment negatiu, no és un moviment perquè no mou res, no canvia res (...) És fonamental valorar les coses petites. Els petits canvis proven que la realitat és transformable i que
nosaltres podem fer personalment alguna cosa per aconseguir-ho (...) S hauria de desencadenar l alegria de fer i traduir-la en actes; actuar sobre la realitat i transformar-la és l única manera de provar que la realitat és transformable.» (Zubero, 1998) Deia Pirandello que un fet és com un sac a terra, buit i rebregat. Fer-se vell és un fet i el que cal és poder ficar, en aquest sac imaginari, tots els esdeveniments, situacions i activitats. Escriure avui per a la Societat Catalana de Biologia és una ocasió estimable, que molt agraeixo, d aprofitar el passat per construir el present. BIBLIOGRAFIA ARAGÓ, I. (1971). «Ecologia i demografia humana». A: Cap on va la biologia moderna. Col·loquis de la Societat Catalana de Biologia. La vellesa a debat. Any internacional de la família. 1994. Edicions STU. Diàfora. L hospital d un poble. Passat, present i futur de l Hospital de Pobres de Jesucrist de la Vila de Moià. 1973. PARÉS, R. (1994). «Una perspectiva general sobre la catàstrofe i el catastrofisme». A: La catàstrofe i el catastrofisme. Barcelona. Departament de Cultura, Generalitat de Catalunya. PERAL, J. [et al.]. (1998). Registros poblacionales de defectos congénitos en España, núm. 48, pàg. 575-582. Pla de regionalització hospitalària de Catalunya. 1970. Estudios sobre hospitales. Núm. 41 i 42. RIVIÈRE, M. (1998). Crónicas virtuales. Anagrama. ZUBERO, I. (1998). «Los valores de nuestro momento. Fòrum Vida i Evangeli». Focnou, pàg. 278-288.
SEGONA PART
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 69-84
BIOLOGIA TEÒRICA RICARD V. SOLÉ Departament de Física i Enginyeria Nuclear. Grup de Sistemes Complexos. Universitat Politècnica de Catalunya. Adreça per a la correspondència: Departament de Física i Enginyeria Nuclear. Grup de Sistemes Complexos. Universitat Politècnica de Catalunya. Campus Nord. Edifici B4. Jordi Girona, 1-3. 08034 Barcelona. Telèfon: 34-93 401 69 67. Adreça electrònica: ricard@complex.upc.es
INTRODUCCIÓ Sir William Bragg aconsellà una vegada a un dels seus col·legues: «no et refiïs dels resultats experimentals si no els recolza una teoria». Aquesta afirmació és comprensible dins del camp de la física, on els triomfs de la teoria són nombrosos i de vegades sorprenents. No és difícil trobar exemples dins la física on els teòrics qüestionen resultats experimentals pel fet que aquests no coincideixen amb la predicció teòrica ... i encerten! La potència del marc teòric que trobem dins la física és de vegades difícil d assimilar en altres àrees on la mateixa dificultat que apareix en la descripció dels sistemes experimentals fa difícil fins i tot formular hipòtesis generals. En biologia aquesta dificultat és gran i és conseqüència del fet que els sistemes estudiats impliquen moltes escales diferents i són el resultat d un procés històric. El procés històric és també present en la física, en la mesura que la nostra comprensió de l univers passa per compren-
dre n els orígens i com la matèria i l energia han assolit la seva composició i distribució finals. Però en el procés d evolució biològica (amb uns principis bàsics que tenen més a veure amb la informació que amb la matèria i l energia) els canvis són sovint el resultat d innovacions revolucionàries en les quals la preservació i el processament de la informació presenten canvis radicals difícilment explicables (reduïbles) en termes de processos originals. Aquest capítol té a veure amb una aproximació a la biologia basada en la formulació de models teòrics. Sovint aquesta aproximació la dels models teòrics és considerada estranya pels biòlegs amb formació experimental. Però de fet sempre estem formulant models. Rarament fem experiments sense que darrere hi trobem un conjunt coherent d idees i una hipòtesi que construïm com una simplificació del problema i on és ben segur que no tindrem totes les peces. Les seccions següents intenten presentar alguns exemples del paper dels mo-
70 R. V. SOLÉ
dels en biologia. Alguns models han contribuït a canviar la nostra visió dels problemes. D altres han servit de forma crucial per modificar o evitar decisions polítiques relacionades amb la conservació d ecosistemes. D altres, finalment (com és el cas de la recerca en la sida), han permès modificar radicalment la visió d una malaltia. Alguns models han fracassat i han estat invalidats pels experiments però en el camí han permès dissenyar de manera clara i inequívoca protocols que han donat llum a problemes difícils. Els models, en definitiva, no són altra cosa que construccions simplificades de la realitat que ens permeten aproximar-nos al món d una manera clara i comprovable. Són, en definitiva, una part essencial del mètode científic. VIRUS, SIDA I LLINDARS D INFORMACIÓ Els efectes devastadors del virus de la sida (i d altres virus emergents, en menor escala) són ben coneguts. L aparició d aquesta pandèmia ha desencadenat una cursa científica amb pocs precedents dins les ciències de la vida. El virus de la sida és possiblement un dels virus de RNA millor coneguts. La seva capacitat de variació és, com succeeix amb la majoria dels retrovirus, un resultat de les pressions evolutives imposades pel sistema immunitari. En aquesta secció considerarem dues aportacions teòriques essencials en la nostra comprensió dels virus de RNA i de la dinàmica de la sida. A principis dels anys setanta, Manfred Eigen (Premi Nobel de Química) i Peter Schuster varen formular una teoria matemàtica sobre la dinàmica de conjunts de seqüències amb capacitat d autoreplicació i amb mutació. L objectiu d aquest model era comprendre millor el possible escenari que
va conduir a l origen de la vida i també les seves implicacions en l evolució de conjunts de molècules de RNA. El model d Eigen-Schuster és un model senzill i fàcilment formulable. Imaginem que cada seqüència possible es pot imaginar com un conjunt de L zeros i uns, corresponents a les unitats nucleotídiques bàsiques: 00101010001011 (estrictament això no és cert, ja que l alfabet del codi té quatre lletres, però el resultat és bàsicament el mateix). Imaginem que cada seqüència (n hi ha 2L possibles) es pot replicar amb certa probabilitat. Per simplicitat, imaginem que la seqüència 1111111 111111111 es replica amb probabilitat unitat (P=1) i que totes les altres ho fan amb una probabilitat inferior, diguem P=0,05. La seqüència 1111111111111 s anomena seqüència mestra i correspondria a un virus seleccionat amb una alta capacitat infectiva. La resta de seqüències, en principi mutants de la seqüència mestra, són netament menys infectives. Introduirem finalment un factor addicional: la taxa de mutació m. Cada cop que decidim replicar una seqüència, cadascuna de les seves unitats pot canviar (i. e. 1 ® 0 o bé 0 ® 1) amb probabilitat mu. Sabem que les polimerases encarregades de replicar l RNA viral no tenen mecanismes de correcció, característics de la maquinària molecular encarregada de replicar el DNA. Aquesta és en part l explicació de les altes taxes d error associades als genomes de RNA. Molts virus de RNA, en particular els retrovirus (com és el cas del virus de la sida, l HIV) utilitzen altes taxes de mutació per escapar del reconeixement específic del sistema immunitari. Aquesta observació ens fa pensar que potser l estratègia ideal és assolir les taxes de mutació mes grans possibles. És aquesta intuïció correcta? Considerem una població de N seqüències i apliquem-hi les regles anteriors. Supo-
BIOLOGIA TEÒRICA 71
FIGURA 1: un virus d RNA, com l HIV (A) pot representar-se mitjançant un «genoma» definit per una seqüència de bits. Si prenem una població de seqüències finita i fem evolucionar aquesta població sota unes regles simples de replicació i mutació, descobrim que existeix una taxa de mutació crítica (aquí m=0,1) per la qual es dóna una pèrdua d informació i la selecció darwiniana deixa d operar (B, vegeu el text). Per sota de la mutació crítica (figura C), la seqüència amb la taxa de replicació més alta (línia gruixuda) domina, però mes enllà de la mutació crítica, aquesta seqüència es perd (D).
sem que la seqüència inicial està formada únicament per seqüències 11111111. Escollim una taxa de mutació donada (m) i fem evolucionar el sistema. Per taxes de mutació petites (m<<1/2) la nostra intuïció ens diu que apareixeran poques seqüències mutants que, donada la seva baixa taxa de replicació, desapareixen ràpidament. En augmentar m aparentment tindrem un augment del nombre de seqüències mutants, però sempre dominades per la seqüència mestra. Més concretament, suposem que utilitzem N=100 seqüències mestres de longitud L=15 (tenim n=215 = 32.768 seqüències diferents possibles). Fem cent vegades l experiment
numèric amb l ordinador. Cada cop, replicarem totes les seqüències (una seqüència que es replica ho fa eliminant-ne una altra escollida a l atzar entre la població). Introduirem mutació i farem T=1.000 iteracions. Al final de cada simulació, mirem si existeix almenys una seqüència mestra. Finalment, per cada taxa de mutació mesurem amb quina freqüència trobem, al final de cada simulació, alguna seqüència mestra. El resultat d aquest experiment de simulació es mostra a la figura 1B-D. Si seguim l evolució de l experiment a taxes de mutació petites (figura 1C) i indiquem amb una línia gruixuda la dinàmica de la seqüència mestra, veiem
72 R. V. SOLÉ
que aquesta presenta una població estacionària amb fluctuacions al voltant d una mitjana N(111...111) = 40, clarament per sota del màxim N = 100. Però és clar que al final de la simulació ens trobarem seqüències 111111111 presents. Això no succeeix, però, un cop superem un cert valor crític de la taxa de mutació m = mc. Un exemple el veiem a la figura 1D: per a una taxa de mutació m = 0,12 la població de seqüències mestres desapareix. Malgrat que són les seqüències que es repliquen més ràpidament, també ho fan amb error gairebé segur. Això comporta que les noves seqüències presentaran sistemàticament errors i tendiran a escamparse per l espai de seqüències com un núvol que es difon a l atzar. La informació genètica s ha perdut i cap pressió de selecció pot actuar de manera efectiva. Aquest fenomen, conegut com la catàstrofe d error, imposa un límit a la màxima quantitat d informació en la replicació de molècules simples. Aquest resultat (demostrat per Eigen i Schuster i experimentalment comprovat posteriorment en virus de RNA) suggereix l existència d un límit a la capacitat de mutació imposat per la conservació de la informació. Com veiem en el model, la pèrdua d informació es produeix de forma abrupta (catastròfica) i això suggereix que els virus reals, sota la pressió del sistema immunitari, evolucionaran en el sentit d augmentar la taxa de mutació però amb un límit superior definit pel llindar anterior. Els estudis experimentals varen demostrar la validesa d aquest model: els virus de RNA es repliquen típicament prop de la catàstrofe d error, i el concepte d espècie, que és l habitualment utilitzat en genètica de poblacions, s ha de substituir pel de quasiespècie. La quasiespècie es el núvol de seqüències que es generen al voltant de la seqüència mestra i constitueix la unitat bàsica de selecció. Els estudis d Eigen i Schuster varen conduir a formular una teoria explicativa de l a-
parició del codi genètic i de mecanismes capaços de superar la catàstrofe de la informació representada pel llindar mc. El problema fonamental apareix quan introduïm la hipòtesi d un escenari prebiòtic basat en un món de RNA. Aquest sistema podria generar molècules amb capacitat d autoreplicació i sotmeses a la selecció darwiniana. Però existiria un límit superior clar, imposat pel fet que fins i tot minimitzant les taxes de mutació, existirà un límit superior al nombre de nucleòtids per seqüència i per tant un límit a la complexitat màxima assolible. Aquest és un capítol a part, però assenyalem que dins de l àrea de les teories que intenten explicar els orígens de la vida sobre la Terra, la teoria d Eigen-Schuster es en l actualitat una de les millors candidates. Un pas més enllà en la nostra comprensió dels virus de RNA implica la consideració del sistema immunitari com a part essencial d una visió completa. En aquest sentit, l alta variabilitat dels retrovirus els fa difícils de combatre pel sistema immunitari i és en gran mesura la responsable de la dinàmica característica de moltes malalties cròniques. Aquest és el cas del virus de la sida (HIV). Les estratègies d atac contra els efectes de l HIV han estat variades, però les més efectives són essencialment aquelles basades en la utilització de còctels de fàrmacs (qui sap quina serà la teràpia d aquí trenta anys). La contribució de la biologia teòrica en aquest problema és un bon exemple de la rellevància dels models quan es construeixen de manera simple però amb capacitat d ésser comprovats. Un contribució de gran importància al problema de la comprensió de la dinàmica de la sida com a resultat de la interacció del virus amb el sistema immunitari va ser formulada per Robert May i Martin Nowak (i altres teòrics del grup d Oxford) a principis dels noranta. Aquest model intentava explicar un conjunt d observacions relacionades amb la pro-
BIOLOGIA TEÒRICA 73
gressió de la resposta immunitària i l aparició final de la síndrome d immunodeficiència. La teoria, coneguda com el llindar de diversitat postulava que la interacció del virus amb el sistema immunitari donava com a resultat un increment lent (però molt variable, tal i com es veia en la realitat) on la caiguda progressiva dels CD4 anava de costat amb un increment en la diversitat antigènica del virus, que a poc a poc aniria acumulant més i més mutants als quals el sistema immunitari s hauria d enfrontar. Aquesta acumulació progressiva portaria finalment al col·lapse, que es traduiria en l aparició de la sida. Els resultats preliminars obtinguts fins aleshores donaven plausibilitat al model. Les implicacions del model eren que durant la fase asimptomàtica, quan l individu no mostra les característiques típiques de la sida, es donaria una cursa d armaments entre els mutants successius (seleccionats sota la pressió del sistema immunitari) i els clons específics de limfòcits. La teoria de fet incloïa també la resposta no específica, és a dir, associada al reconeixement de regions poc variables del virus. Però l èmfasi estava clarament posat en el llindar de diversitat. Les prediccions eren clarament comprovables. Vull remarcar aquest aspecte: la mateixa teoria es podria formular en termes purament verbals, sense cap mena de formalisme matemàtic. Però els models matemàtics (en contra del que de vegades es suposa) permeten, si es formulen en termes simples i biològicament consistents, presentar les hipòtesis amb tota claredat i sense ambigüitats. El model de Nowak-May va permetre comprovar les seves prediccions amb tota claredat. Avui sabem de fet que l escenari presentat és lluny de ser general. Malgrat que sovint era clar que es produïa un procés de selecció darwiniana al llarg de la malaltia, alguns pacients que acabaren presentant la sida no varen mostrar un increment es-
sencial de la variabilitat antigènica. En aquest cas possiblement el resultat final del procés és la selecció d un mutant especialment virulent. És aquest un fracàs del model? Certament el model general va demostrar ser incorrecte, però la seva formulació (com varen destacar alguns dels principals experts del camp) va obrir línies de recerca que, al final, varen permetre entendre millor alguns dels processos bàsics associats a les diferents fases de la malaltia i la interacció virus-sistema immunitari. Això és, al meu entendre, un èxit i no un fracàs. Molt sovint, gran part de l èxit de la recerca està en la formulació adequada de les qüestions. La història final acaba bé. Els models desenvolupats durant els darrers anys sobre la dinàmica de la interacció virus-sistema immunitari van tenir un paper crucial en la comprensió de la dinàmica de la infecció per l HIV. L any 1995, dos articles ja clàssics van aparèixer a la prestigiosa revista Nature. Tots dos abordaven el problema de la cinètica del virus i les poblacions de limfòcits en la fase asimptomàtica. Alguns investigadors havien deixat caure la possibilitat que el virus no fos l agent causal de la malaltia. Com que la fase asimptomàtica té l aparença d un quasiequilibri on el virus sembla estar controlat (la seva presencia en sang pot semblar aparentment massa baixa) no quedava gaire clar quin era l estat dinàmic del sistema ni quines eren les seves implicacions. Aquests articles (figura 2) varen canviar totalment la nostra perspectiva i coneixement sobre la sida. Varen demostrar que la fase asimptomàtica és en realitat un període on es dóna un reemplaçament gairebé complet de la soca del virus present en un moment donat i també un reemplaçament de les cèl·lules que produeixen virus. Demostraven que l HIV posseeix un enorme potencial per evolucionar sota la pressió del sistema immunitari i que aquesta renovació constant i ràpida era la principal força
74 R. V. SOLÉ
FIGURA 2: capçaleres dels dos articles apareguts a la revista Nature (1995) sobre la dinàmica del virus de la sida (HIV-1). Tots dos articles van ser el resultat de la col·laboració entre grups experimentals i teòrics.
implicada en la patogènesi d aquesta malaltia. Aquests articles compartien no només el tema, sinó el tipus d equip científic: ambdós articles eren el resultat del treball entre experimentadors i teòrics. Els teòrics eren el grup
de Nowak a Oxford i a l equip americà hi trobem Alan Perelson (del Laboratori Nacional de Los Alamos, New Mexico) i Avidan Neumann, aleshores al Santa Fe Institute. Pocs exemples ens serveixen tan bé d il·lustració del poder dels models dins la biologia.
BIOLOGIA TEÒRICA 75
FRAGMENTACIÓ D ECOSISTEMES I BIODIVERSITAT Dins l àmbit de l ecologia, les aproximacions teòriques tenen una llarga tradició que ha fet de l ecologia «teòrica» un camp de recerca força important. Els models en ecologia cobreixen un ventall molt ampli de fenòmens i aproximacions, des dels sistemes constituïts per una sola espècie als ecosistemes diversos, com les selves tropicals. Dins l àmbit ecològic, la idea que existeixen propietats emergents, és a dir, no reduïbles a les propietats de les unitats bàsiques, ha estat més o menys acceptada tàcitament. Entendre una comunitat implica entendre les interaccions entre espècies i això comporta obligatòriament un estudi del sistema com una xarxa d interaccions. Els problemes oberts en ecologia són nombrosos; destaca en particular el problema de la diversitat d espècies: com es genera aquest «barroc de la natura», com l anomena Ramon Margalef?, quins factors són responsables de les regularitats observades?, per què hi ha tantes espècies rares?, existeix un límit superior a la diversitat? Des d un punt de vista de recerca bàsica, el problema dels límits i del manteniment de la diversitat és de gran importància (i encara no esta resolt) però les seves implicacions pràctiques són igualment importants. En particular, la resposta del sistema a la destrucció o a la fragmentació de l hàbitat és especialment actual, ja que gran part dels efectes de l acció humana sobre els ecosistemes arreu del món està lligada a la fragmentació. El problema de la fragmentació ens permet il·lustrar molt clarament: a) l existència de fenòmens no lineals que sovint no es tenen en consideració en la gestió dels recursos naturals, i b) la importància pràctica d una bona formulació de models amb capacitat predictiva. Considerem en primer lloc el problema de la fragmentació de l hàbitat en
un ecosistema amb una sola espècie. Imaginem un espai format per un conjunt de L ´ L quadrats que representen petites fraccions de l hàbitat total. Imaginem que cadascuna d aquestes unitats està connectada a les seves quatre veïnes mes properes en el sentit que una espècie que pot ocupar aquestes parcel·les té la capacitat (en certa escala de temps) d ocupar aquestes quatre parcel·les properes amb certa probabilitat c. Imaginem també que dins de la mateixa escala de temps l espècie pot extingir-se en una parcel·la donada amb certa probabilitat e. Podem formular un model molt simple associat a la dinàmica d aquest sistema simplificat. Aquest model, conegut com model de Levins, està definit per una variable X que indica la fracció de llocs ocupats per l espècie. És clar que la dinàmica queda definida per una expressió del tipus: [variació de X] = [creixement]-[extinció] El creixement serà logístic: proporcional al nombre d individus ja presents i a la taxa de colonització c. Existeix però una limitació evident a la població màxima: el nombre total de llocs ocupables. L extinció tanmateix serà proporcional a la població present i al valor de e. Matemàticament això s escriu com una equació diferencial:
a
f
dX = cX 1 - X - eX dt Aquesta equació té un parell de punts d equilibri, que obtindrem d igualar a zero dX/dt = 0, és a dir, aquells punts pels quals el sistema no canvia. Seran doncs X* = 0 i X* = 1 e/c. Clarament, si e > c tindrem població zero també en el segon cas (la colonització no té capacitat de compensar l extinció local). Podem introduir l efecte de la fragmentació en aquest sistema de manera molt simple: si una fracció 1 > D > 0 de les parcel·les és destruïda, només tindrem una
76 R. V. SOLÉ
Llocs ocupats (V*)
Llindar d’extinció Llindar d’extinció
Habitat destruït (D)
FIGURA 3. Models de fragmentació de l hàbitat. Indiquem dues situacions diferents, definides pels paràmetres a) e = c = 0,2 i b) e = 0,6, c = 0,3, respectivament. Amb línia discontínua indiquem el resultat teòric obtingut del model de Levin i amb cercles negres el resultat de la simulació amb el model espacialment explícit, que difereix considerablement del teòric quan ens apropem al llindar d extinció.
fracció 1 D efectiva de llocs potencialment ocupables. Això vol dir que l equació anterior s escriurà com:
a
f
dX = cX 1 - D - X - eX dt i ara el nou punt d equilibri no-zero és X* = 1 D e/c I és fàcil demostrar que la població es farà zero si la destrucció assoleix un valor crític Dc = 1 e/c. Això vol dir que de fet la màxima població sostenible sempre serà inferior al màxim, ja sigui M = 1 o M = 1 D, ja que típicament serà superior a zero i e inferior a 1. Imaginem ara que fem un model d aquesta dinàmica sobre un domini espacial explícitament definit amb L ´ L parcel·les. Ara, el que farem es introduir una simulació per ordinador definida amb un conjunt de regles simples. L estat S de cada parcel·la quedarà definit per S = 1 si està destruïda
(i per tant no pot ser mai ocupada), S = 0 si està desocupada però no destruïda i finalment S = 1 si està ocupada per l espècie. Començarem la nostra simulació amb un hàbitat sense destrucció (D = 0) i definirem per D el nombre de llocs destruïts dividit pel nombre de llocs total. Ocuparem a l atzar un cert nombre de parcel·les i deixarem que la població creixi utilitzant dues regles bàsiques: a) Si una casella està ocupada, pot passar a estar buida (S = 1 ® S = 0) amb probabilitat e. b) Una parcel·la desocupada pot ésser ocupada (S = 0 ® S = 1) amb probabilitat c per una parcel·la veïna que estigui ocupada. Aquestes regles són fàcilment implementables i permeten simular la dinàmica en el temps de l espècie. Si no hi ha fragmentació, podem fer una estimació del nombre de caselles ocupades. Aquesta aproximació resulta prou exacta per validar el model de Levins
BIOLOGIA TEÒRICA 77
sense destrucció de l hàbitat. Ara, si incrementem la destrucció (fem passar parcel·les escollides a l atzar a l estat S = 1) progressivament, veurem que la fracció de llocs ocupats per l espècie disminueix progressivament d acord amb el model de Levins, però es desvia notablement d aquest a mesura que incrementem la destrucció (figura 3). Aquesta diferència és resultat de les correlacions a l espai que no es donen en el model més simple, on de fet assumim que tots els punts de l hàbitat es poden connectar entre si. El model de Levins i la seva extensió a l espai són interessants però aparentment massa simples per tenir utilitat directa. Aquesta simplicitat però, ha estat la clau de l aplicació dels models de fragmentació a la gestió de parcs naturals. En un estudi molt elegant (Moffat, 1994) Russell Lande va aplicar els conceptes anteriors al problema de la persistència del gamarús piguellat (Strix occidentalis caurina, un rapinyaire nocturn en perill d extinció). Aquest ocell estava amenaçat per un conjunt de plans d urbanització dels boscos que constituïen el seu hàbitat natural. Lande demostrà amb contundència utilitzant models simples que l espècie estava abocada a la desaparició si la destrucció continuava (malgrat que bona part dels boscos originals es mantinguessin en bon estat). Aquest estudi teòric va ésser incorporat finalment a les directrius del Servei Forestal dels Estats Units, que van modificar totalment els seus plans originals. EVOLUCIÓ, CAOS I EXTINCIÓ El gran evolucionista T. Dobzhanski va assenyalar que «res no te sentit en biologia si no és sota la llum de l evolució». És una afirmació molt certa: els organismes i en general l organització de la vida sobre la Terra són el resultat d un procés on les formes d organització apareixen, de vegades pro-
gressivament o de tant en tant de forma sobtada. Poques àrees de la biologia han estat tan explorades des del punt de vista teòric com la genètica de poblacions i de fet el segle XX serà recordat dins de la teoria de l evolució com el de l aparició de la teoria sintètica, una teoria general que incorpora els desenvolupaments principals de la genètica dins d un marc teòric on les poblacions i les freqüències genètiques són els protagonistes fonamentals. La síntesi neodarwiniana és un edifici imponent. Ara bé, la genètica de poblacions i el concepte de fitness (eficàcia biològica) d una espècie són aplicables dins d una escala temporal donada. El fet d assumir que les espècies poden considerar-se objectes separats amb certa fitness associada a un ambient extern és en si mateix problemàtic. Tots sabem que les espècies són (excepte en el laboratori) part d un ecosistema i que interaccionen entre si. Quin és el valor general de la teoria si tenim en compte aquest fet? És possible que, sota certes condicions, una espècie estigui prou «desacoblada» de la resta d espècies per fer que certes propietats que traduïm en freqüències gèniques es comportin de manera compatible amb el que esperaríem de la genètica de poblacions. Però aquest escenari ideal és de fet un cas excepcional: les espècies interaccionen i a llarg termini són les interaccions les responsables de la sort final de cada element (espècie) de l ecosistema. La informació bàsica de què disposem per entendre la dinàmica a gran escala de la biosfera (la macroevolució) procedeix del registre fòssil i de les inferències que podem fer a partir de filogènies moleculars (amb tots els problemes associats). El registre fòssil que coneixem dels darrers sis-cents milions d anys (el període fanerozoic) i on trobem parts fossilitzades d organismes multicel·lulars ens dóna una informació fragmentada i parcial del drama evolutiu. En certa manera el registre fòssil fa que, en lloc d espectadors
78 R. V. SOLÉ
que assisteixen a l obra, ens limitem a escoltar-la darrere d una porta. Un aspecte especialment interessant del registre fòssil és la presència d extincions: de fet, s estima que el 99,9 % de totes les espècies que han aparegut sobre la Terra s han extingit. Aquest fet ens recorda que cap grup biològic no té una duració indefinida. La dinàmica de les extincions és en si mateixa un procés de gran complexitat i suggereix que la biosfera és un sistema força allunyat de l equilibri. En la figura 4 observem grans extincions i petites extincions: cinc d aquestes grans extincions han estat anomenades «extincions en massa», de la més popular (però no la més devastadora), la que correspon a la transició cretàcic-triàsic (K-T), fa seixanta-cinc milions d anys. Aquesta extinció en massa va eliminar una gran quantitat de grups d organismes en hàbitats terrestres i marins. Els dinosaures i
FIGURA 4. Fluctuacions en la intensitat d extinció (estimada dins famílies) dins del període fanerozoic.
els ammonits són només dos exemples a esmentar. La transició K-T marca la desaparició d una biota que és substituïda per una nova biosfera on la radiació dels mamífers representa un dels fets crucials en el desenvolupament de les comunitats terrestres posteriors. L observació de la presència d una capa
d iridi associada a la transició K-T va generar una hipòtesi apassionant: l extinció en massa que es donà al final del mesozoic seria el resultat de l impacte d un objecte astronòmic (asteroide o cometa) de prou grandària per provocar uns canvis a gran escala. Un escenari molt plausible es l anomenat efecte hivernacle, proposat entre d altres per l astrònom Carl Sagan. El refredament del planeta resultant de la injecció de grans quantitats de pols i cendra a l atmosfera tindria uns efectes espectaculars sobre les xarxes tròfiques i «explicaria» una extinció d aquesta escala. Cal assenyalar que la proposta és certament atractiva: la teoria disposa d una evidència experimental molt favorable (l iridi apareix en molts llocs arreu del món i és un element molt poc freqüent a l escorça terrestre, però habitual en meteorits) i fins i tot d una predicció contrastada. La predicció era que l autor del crim hauria deixat les seves empremtes en algun lloc de la Terra (possiblement encara visibles) i donava una estimació del rang de la mida de l objecte i del cràter d impacte. Aquest cràter és molt possiblement el que s ha trobat a Yucatan, que correspon a l edat de la transició K-T i que està dins de l interval de diàmetre esperat. Tot un èxit, certament. Una conclusió d aquest treball (i del coneixement sobre extincions i cràters d impacte) és que potser totes o gran part de les grans extincions estarien causalment lligades a l impacte d asteroides. Els principals defensors d aquesta idea són David Raup i John J. Sepkoski. Aquests autors fins i tot proposaren que els impactes seguien una periodicitat aproximada d uns 26 milions d anys i suggeriren un possible causant necessàriament de tipus astronòmic. A la literatura especialitzada van aparèixer tot un seguit de treballs on semblava que l evidència d una distribució periòdica de cràters d impacte era clara. Amb el temps també les erup-
BIOLOGIA TEÒRICA 79
cions volcàniques apareixien associades i també les inversions de camp magnètic. Més recentment, però, l evidència de la periodicitat ha anat quedant arraconada a mesura que els mètodes de datació i l acumulació de noves dades milloraven el registre fòssil i el registre d impactes. Ara disposem de proves que apunten, en alguns casos (i no amb total seguretat) a connexions entre fenòmens de caràcter físic i extincions en massa. Ara bé, també existeixen cràters d impacte associats a moments on el registre no indica una resposta proporcional de la biosfera. En general, les explicacions externalistes, que intenten reduir el problema de l extinció a una sola causa externa, tenen problemes associats al fet que la resposta dels ecosistemes pot ser altament no lineal. La no-linealitat va directament lligada a l estructura de les interaccions en les comunitats (que poden implicar escales molt grans). Podria un mecanisme bàsicament intern (però possiblement pertorbat per esdeveniments externs aleatoris) donar lloc a les observacions accessibles al registre fòssil? Ara considerarem un possible escenari on un model simple basat fonamentalment en interaccions internes (però que també inclou les pertorbacions externes) permet recuperar de manera consistent un cert nombre de propietats bàsiques de l estructura i de la dinàmica del procés de macroevolució. En primer lloc, considerem les evidencies qualitatives i quantitatives. La gràfica anterior (figura 4) és una corba altament fluctuant, sense periodicitats aparents. De fet, aquest comportament és característic d una família de sistemes que presenten l anomenat soroll 1/f i que es caracteritzen per la seva complexitat interna. Les fluctuacions d alguns índexs macroeconòmics, la música clàssica o els terratrèmols són exemples d aquest comportament. De fet, aquest tipus de senyal és fractal, i això vol dir que existeixen propietats estadístiques que es
repeteixen a diferents escales. D altra banda, si analitzem l histograma de freqüències d extincions (és a dir, el nombre d extincions N(E) de mida E agrupades en períodes de certa duració) obtenim una llei N(E) = aprox. E 2. Aquesta distribució s anomena distribució potencial i és característica també dels sistemes fractals. Suposem ara que calculem la distribució de duracions de gèneres amb el temps: també ens dóna una distribució N(T) = aprox. T-a on 1,7 <a< 2. I finalment considerem la taxonomia obtinguda a partir de les dades del registre fòssil: el nombre de gèneres G(S) que inclouen S espècies segueix també una distribució potencial: G(S)=aprox. S 2. Una observació addicional procedeix de l estudi de la taxa d extinció d un grup d organismes donat al llarg del temps. Si explorem aquest problema seguint la informació que ens dóna el registre fòssil, arribem a un resultat sorprenent: la taxa d extinció és bàsicament constant i afecta igualment qualsevol grup. Una conclusió sorprenent si s admet la idea que aquells grups que han durat més temps haurien d estar més adaptats i per tant serien menys propensos a extingirse. Això no és el que observem, i d alguna manera aquesta observació suggereix que a llarg termini la (possible) adaptació a l ambient de les espècies individuals no té un paper important. Leigh Van Valen va interpretar aquest resultat formulant una teoria coneguda com la «hipòtesi de la Reina Roja». Van Valen imagina les espècies com a part d un ecosistema on l ambient físic és una part de l ambient total, del qual forma part l anomenat ambient biòtic. L ambient biòtic d una espècie és el conjunt d espècies amb les quals interacciona (preses, depredadors, paràsits, etc.). Si imaginem aquest conjunt total (l ecosistema) com un joc on cada espècie és un jugador, Van Valen suggereix que cada espècie està obligada a variar en resposta a les variacions d aquelles espècies
80 R. V. SOLÉ
FIGURA 5. Model d evolució i extinció.
amb les quals interacciona directament. Una població de preses on apareix una variant que pot escapar amb més efectivitat de l atac d un depredador o d un paràsit obligava a la coevolució del paràsit o del depredador. Però en aquesta teoria els canvis no milloren l adaptació sinó que actuen amb l únic resultat de mantenir cada jugador dins del joc. Si algun d aquests jugadors no té la suficient variabilitat genètica per respondre, s extingeix. El nom de la teoria procedeix del llibre de Lewis Carrol (A través del mirall, segona part d Alícia al país de les mera-
velles). En algun lloc de la història, la Reina Roja agafa la mà d Alícia i totes dues corren, cada cop «mes ràpid, mes ràpid!», crida la reina. Alícia comprova que no es mouen de lloc i li pregunta a la Reina Roja el motiu. La Reina contesta que: «aquí, saps, per no arribar enlloc, cal córrer molt». Una teoria consistent del procés de macroevolució ha d incorporar necessàriament el procés d extinció, assumir-ne el nombre mínim de paràmetres i generar resultats quantitativament consistents amb les observacions. Aquests resultats no es poden limi-
BIOLOGIA TEÒRICA 81
tar a una distribució o a un aspecte concret, sinó que haurien de cobrir el màxim nombre de propietats. Sovint, en revistes d evolució trobem «teories» del procés macroevolutiu que amb massa freqüència assoleixen «resultats» purament qualitatius o molt parcialment quantitatius. I massa sovint també s afirma que el procés de macroevolució es pot, de fet, reduir al de microevolució. A continuació presentarem un model d evolució a gran escala (Solé et al., 1996) que permet obtenir d una forma simple i quantitativa diferents aspectes implicats en l anàlisi del registre fòssil i donar una interpretació a la llei d extinció constant observada per Van Valen i reinterpretar de manera nova aquest efecte. El model no te paràmetres i ens donarà també un mecanisme de desacoblament entre micro i macroevolució. Imaginem el nostre sistema format per un conjunt de N espècies (figura 5). Aquestes espècies interaccionen entre si a través de certes «connexions». L espècie I enviarà un input W(I,J) a l espècie J i al revés, tindrem una connexió W(J,I) de J ® I. Aquestes connexions poden ser positives o negatives, i suposarem 1 < W(I,J) < +1. El signe positiu indica una interacció favorable i el negatiu desfavorable. Indicarem per S(I) l estat de l I-èssima espècie: S(I) = 0 si està extingida i S(I) = 1 si esta present. Considerem la dinàmica resultant del conjunt de regles següent: 1) Per a cada espècie I, escollim una connexió a l atzar, p. ex. W(I,J}) i en modifiquem el valor (amb total independència del seu estat) a un nou valor 1 < W(I,J) < +1. Aquesta modificació pot estar associada a un procés d evolució d una de les espècies (I o J) o pot resultar de canvis en el medi físic. 2) Com a resultat d un d aquests canvis, alguna especie pot extingir-se. El criteri d extinció és: si la suma d entrades a una espècie donada és menor o igual que zero,
l espècie desapareix (és a dir S(I) = 1 ® S(I) = 0). La mida de l extinció, E, serà el nombre d espècies tal que S(I) = 0. 3) La regla 2 pot donar lloc a un cert nombre d espècies extingides. Ara, les noves espècies podran «omplir» els espais (nínxols) vacants per diversificació dels supervivents. Per fer-ho, ens limitem a «copiar» les connexions dels supervivents als llocs ara desocupats i hi afegim una petita modificació de les connexions de procedència (figura 5). Concretament, si S(K) = 0, escollim una nova espècie, r, present S(r) = 1 i fem: S(K) = 1, W(I,K) = W(I,r) i W(K,I) = W(r,I). Aquest model simple (on les iteracions tenen lloc en una escala temporal molt gran, on les dimensions poblacionals són poc rellevants) permet explorar les conseqüències de la dinàmica interna en l evolució d un sistema ecològic. En primer lloc podem explorar l aspecte qualitatiu de la dinàmica de les extincions, que resulta ser molt fluctuant i que dóna una corba similar a la que hem vist abans per al registre fòssil. El mateix mecanisme dóna lloc de fet a extincions de grans dimensions i a extincions petites. La distribució d extincions resulta ser precisament una corba potencial N(E) = CE2 tal com indica el registre fòssil. Però encara hi ha més qüestions: desprès de l extinció d una espècie, les espècies presents tenen l oportunitat de diversificar-se i generar-ne de noves. Això permet establir una filogènia i veure com s agrupen les espècies dins de gèneres. Observem que el model de partida no defineix gèneres i que per tant les propietats estadístiques d aquests últims seran una conseqüència de la dinàmica. De fet, es pot seguir en el temps la manera en què els gèneres apareixen i desapareixen. Podem fer un còmput en el temps i obtenir una corba amb la dinàmica de la diversitat (mesurada en termes de nombre de gèneres). Aquesta corba presenta un aspecte molt similar a les grà-
82 R. V. SOLÉ
fiques del registre: una acumulació progressiva puntuada per episodis d extinció. El model anterior és un model simplificat del comportament a gran escala de la biosfera, representada aquí com un ecosistema o conjunt d ecosistemes interconnectats. Els efectes d un canvi en una espècie (que poden ser el resultat d una modificació ambiental) poden donar lloc a canvis molt importants en el sistema com a resultat d un allau de pertorbacions que es propaguen per la xarxa. La importància d aquesta xarxa d interaccions es fa molt evident si pensem en el fet que la teoria darwiniana ens parla sovint de coevolució, de les respostes coevolutives com a motor del canvi en les espècies. Aquesta idea es pot contrastar amb facilitat: l observació de la natura ens dóna molts exemples de coevolució (el cas de plantes amb flors i els seus polinitzadors n és només un exemple). Així, els canvis en una espècie obliguen a una altra espècie amb la qual està connectada directament (és a dir, amb la qual manté algun tipus d interacció directa) a canviar, sempre i quan disposi de la variabilitat genètica suficient. Si no pot canviar, aleshores pot arribar a extingir-se. Aquest escenari clàssic ens diu, doncs, que existeix un cert grau de predicció potencial: si podem mesurar una tendència al canvi en una espècie i identifiquem clarament aquelles espècies amb les quals interacciona, podrem fer en principi una predicció del seu comportament futur. És aquesta predicció possible en general? Probablement no. El coneixement de què disposem en l actualitat sobre la resposta dels ecosistemes a les pertorbacions ens indica que existeixen trets bàsics que es reprodueixen i que els ecosistemes que apareixen després de la pertorbació presenten regularitats estadístiques clares. Però el destí final d una espècie donada, allò que constituiria una veritable predicció, està condemnat a la impredicció imposada per l estructura en
xarxa dels ecosistemes. També en biologia, com ja en la física i en d altres camps de la ciència, el caos imposa les seves regles: podem entendre els sistemes globalment, però no podem fer prediccions sobre el comportament dels seus elements a llarg termini. CONCLUSIONS I PERSPECTIVES En les seccions anteriors hem presentat tres exemples de diferents aproximacions teòriques a tres aspectes de la biologia que impliquen escales i mecanismes diferents. Però aquests són només tres exemples. En cada cas, el nivell d aproximació i les capacitats d explicació/predicció són diferents (tal i com passa en cadascuna de les àrees implicades). Però la biologia és molt més àmplia i els èxits dels models teòrics nombrosos. Les properes dècades, si la tendència actual es confirma, seran molt fructíferes per a la biologia teòrica. Només comencem a explorar noves aproximacions, com la vida artificial. Aquesta àrea d estudi analitza sistemes (de vegades molt abstractes) buscant regularitats fonamentals que tard o d hora ens donaran una idea del perquè la vida sobre la Terra ha aparegut i s ha organitzat en la forma actual. Ja disposem de resultats (com el model «Tierra» de Thomas Ray) que ens permeten començar a entendre el perquè de l aparició de paràsits i la seva contribució a la diversitat dels ecosistemes o bé com la multicel·lularitat podria emergir com a resultat d un increment de l estabilitat enfront de mutacions. Algunes idees de la biologia teòrica, com és la teoria de jocs aplicada a l evolució del comportament, ja són part integrant dels llibres de text. Altres idees són fa temps part de la teoria bàsica dels manuals d ecologia i evolució. I un nou corrent molt poderós apareix dins l àrea de les neurociències, on la introducció de les xarxes neurals ha mo-
BIOLOGIA TEÒRICA 83
dificat substancialment les aproximacions a problemes d enorme importància com són la percepció, la memòria o els mecanismes d atenció. En aquest sentit, cada cop es reconeix amb més claredat que l aproximació reduccionista és insuficient per comprendre el món. És cert que un coneixement detallat dels mecanismes moleculars dels processos biològics és necessari. No podríem formular teories basades en el nostre desconeixement de les unitats bàsiques. Sovint, les implicacions biomèdiques del descobriment del mecanisme d expressió gènica d un sol gen poden ser enormes. Però no és menys cert que els sistemes vius són entitats que integren un cert nombre d estructures que interaccionen i que no podem entendre per separat. No entendrem el mecanisme de la memòria en termes moleculars si no traslladen aquest mecanisme (adequadament simplificat) a una escala més gran on els circuits neuronals són la unitat bàsica (i no les neurones). No entendrem completament l emergència de les societats d insectes si no entenem i assumim que les propietats d aquests col·lectius depenen fortament de la interacció entre els seus elements. La genètica hi té quelcom a dir, sens dubte, però l existència de propietats emergents (que no entendrem per molt que mirem els gens) és una part intrínseca del problema. El com i el perquè s han donat les grans transicions en biologia (des de l origen de la vida, del codi genètic, de la cèl·lula, la cèl·lula eucariota, la multicel·lularitat, el sexe o el llenguatge) seran grans reptes per als Darwins del futur. Una lectura que sempre recomano als meus estudiants és La doble hèlix, de James Watson. Descriu una veritable aventura científica, que va culminar amb un dels descobriments més importants de la història de la ciència: la dilucidació de l estructura del DNA. El llibre és emocionant i la meva experiència mostra que emociona igualment
biòlegs i físics. Ens parla de fet de la cursa cap a un descobriment que va canviar la nostra visió del món viu i que va obrir les portes de la biologia moderna. La van portar a terme un físic (Francis Crick) i un biòleg (James Watson) i van atacar el problema amb eines simples, imaginació i models moleculars, aparentment massa simples per ésser útils. Una associació fructífera, sens dubte. Aquesta i altres associacions han estat en el passat font d idees innovadores. Avui, la biologia viu una situació sense precedents en relació amb la quantitat d informació de què disposem. És molt el que sabem però dins l enorme biblioteca del coneixement encara estem obrint els llibres dels primers prestatges. Les fronteres estan per explorar. A l equipatge cal portar l artilleria dels coneixements acumulats i la constatació que sovint els detalls són importants. Però cal no deixar de costat la nostra capacitat d abstracció i el fet que els models, sempre més simples que la realitat, són finestres indispensables per entendrela. Com va dir un altre famós científic: «la teoria sense els experiments és pura fantasia, però els experiments sense teoria son el caos». Aquest treball està dedicat als meus mestres Ramon Margalef i Jaume Baguñà, i a la memòria de Pere Alberch. BIBLIOGRAFIA BASCOMPTE, J.; R. V. SOLÉ (1996). «Habitat fragmentation and extinction thresholds in spatially explicit models». J. Anim. Ecol., núm. 65, pàg. 465-473. DOMINGO, E.; J. J. HOLLAND (1994). «Mutation rates and rapid evolution of RNA viruses». A: MORSE, S. [ed.] The Evolutionary Biology of RNA Viruses. Raven Press, pàg. 118-121. NOWAK, M. A.(1992). «What is a Quasispecies?». Trends in Ecology and Evolution, núm. 7, pàg. 118-121. LANDE, R. (1988). «Demographic models of the northern spotted owl». Oecologia, núm. 74, pàg. 601-607.
84 R. V. SOLÉ RAUP, D. (1993). Extinction: Bad Genes or Bad Luck? Oxford: Oxford U. Pres. SCHUSTER, P. (1994). «How RNA molecules and viruses explore they worlds?» . A: COWAN [et al.] [ed.] Complexity: Metaphors, Models and Reality. Santa Fe: Santa Fe Institute Series. Addison-Wesley, pàg. 383418, . SOLÉ, R. V.; J. BASCOMPTE; S. C. MANRUBIA (1996). «Extinc-
tion: Bad Genes or Weak Chaos?». Proceedings of the Royal Society, B 263, pàg. 1407-1413. SOLÉ, R. V.; S. C. MANRUBIA ; M. BENTON ; P. BAK (1997). «Self-similarity of extinction statistics in the fossil record». Nature, núm. 388, pàg. 764-767. SOLÉ, R. V. [et al.] (1999). «Criticality and scaling in evolutionary ecology». Trends in Ecology and Evolution, núm. 14, pàg. 156-160.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 85-95
BIOLOGIA ESTRUCTURAL: TRENTA ANYS FILANT PRIM LLUÍS RIBAS I DE POUPLANA The Scripps Research Institute. La Jolla, EUA. Adreça per a la correspondència: The Scripps Research Institute BCC-379. 10550 North Torrey Pines Rd. La Jolla, CA 92117, EUA. Adreça electrònica: Lluis@hermes.scripps.edu
INTRODUCCIÓ Ara fa exactament trenta anys (el 1968) es proclamava la fi de la primera era daurada de la biologia molecular (Stent, 1968). Aquest període havia començat aproximadament a la fi dels anys trenta, amb els primers estudis sobre la biologia del bacteriòfag lambda (Luria i Delbrück, 1943), i les anàlisis de les característiques físiques de proteïnes i DNA (Franklin i Gosling, 1953; Kendrew, 1950). El descobriment de l estructura del DNA el 1953 (Watson i Crick, 1953) va representar la culminació d aquesta fase de la biologia molecular, que va acabar amb la determinació del codi genètic universal i la definició aproximada dels mecanismes de replicació, transcripció i traducció genètics, a finals dels anys seixanta (Sagdopal, 1968). Al cap de dos anys altres autors anunciaven el començament de la segona edat d or de la biologia molecular (Lewin, 1970). Aquest segon renaixement va coincidir amb
la publicació de les tertúlies dedicades al futur de la biologia moderna, organitzades per la Societat Catalana de Biologia, el 1970 (Margalef et al., 1971). Llegida avui, la transcripció de les tertúlies reflecteix aquest estat de transició en què es trobava la comunitat d investigadors. Per una banda, en les converses es detecta la convicció general que els principis fonamentals de la vida havien estat descoberts. Per l altre costat, la manca d informació estructural i funcional detallada sobre aquests mateixos principis dóna a les converses un aire preliminar. Sembla clar que un capítol acabava de tancar-se, i que la tasca de refinar els descobriments assolits fins al moment encara no havia començat. Els trenta anys que han seguit han generat una explosió de coneixements biològics sense precedents, atiada pel desenvolupament de les tècniques d enginyeria genètica. Entre les disciplines que han experimentat un creixement més accelerat cal incloure-hi aquella dedicada a l estudi de l estructura i
86 L. RIBAS I DE POUPLANA
de les interaccions físiques entre biomolècules, que aquí anomenarem biologia estructural. Una revisió completa dels avenços de la biologia estructural en els últims trenta anys és una tasca excessiva, tant per al revisor com per al lector. Aquest article és, per tant, una perspectiva personal d alguns dels aspectes que (potser) caracteritzen millor els últims trenta anys de recerca en aquest camp. He dedicat una primera part a l evolució tecnològica de la qual s ha beneficiat l estudi estructural de les biomolècules. En particular descriuré breument les millores en el camp de la cristal·lografia i la ressonància magnètica nuclear. Faré menció de l evolució dels mètodes computacionals per a l anàlisi de proteïnes i àcids nucleics, però per una discussió més detallada és recomanable llegir la revisió dedicada a la biocomputació, en aquest mateix volum. La segona part de l article és una limitada revisió de dues qüestions que representen bé l evolució de la investigació estructural en els últims trenta anys. Donaré, sobretot, exemples de molècules relacionades amb els mecanismes de replicació i expressió gènica. Aquest camp de recerca resulta especialment adequat, perquè els avenços en aquesta disciplina marquen els límits dels dos períodes de la biologia molecular mencionats abans. La seva trajectòria encaixa amb el període de temps que ens interessa, i podria ser un model per predir (si el lector s hi veu amb cor) la futura evolució d altres camps de la biologia. AVENÇOS TECNOLÒGICS La cristal·lografia de raigs X, la ressonància magnètica nuclear (RMN), i la biocomputació són les tècniques més utilitzades en recerca estructural. Altres mètodes, com la
difracció d electrons (Dorset, 1996), la ultracentrifugació analítica (Hansen et al., 1994), i diverses tècniques d espectroscòpia (Ferreira i Coelho-Sampaio, 1996; Kelly i Price, 1997), són també útils, però no generen informació tan detallada com les tres primeres. L increment en la quantitat d informació estructural generada per aquestes tècniques en els últims trenta anys queda reflectit pel creixement del banc de dades d estructures tridimensionals de macromolècules biològiques (PDB). Aquest magatzem digital de coordenades tridimensionals de proteïnes i àcids nucleïcs va ser fundat el 1971, amb les estructures de cinc proteïnes diferents (Meyer, 1997). Vint-i-set anys després el PDB conté 7.373 estructures obtingudes per cristal·lografia de raigs X, 1.388 estructures obtingudes per RMN, i 201 estructures construïdes amb mètodes computacionals. Actualment, el volum del PDB augmenta a un ritme aproximat de 100 estructures al mes (vegeu http://pdb.pdb.bnl.org)
FIGURA 1. Creixement del banc de coordenades tridimensionals de biomolècules (PDB). Nombre d estructures (coordenades) dipositades per any, des de 1973.
Abans d entrar en detall en les millores que aquestes tècniques han experimentat en els últims trenta anys cal destacar que un dels principals factors que han contribuït a aquests avenços ha estat el desenvolupa-
BIOLOGIA ESTRUCTURAL: TRENTA ANYS FILANT PRIM 87
ment dels mètodes d enginyeria genètica. La revolució del DNA recombinant ha permès, no només aïllar i seqüenciar informació genètica, sinó també expressar gens i purificar-ne els productes en quantitats i amb nivells de puresa molt superiors al que era possible abans. Aquests avenços han permès també la generació de proteïnes modificades i marcades (ja sigui amb isòtops o amb aminoàcids poc freqüents, com la selenocisteïna). Com veurem més endavant, aquestes molècules mutades o marcades faciliten en gran manera els seu estudi estructural. La cristal·lografia de raigs X La cristal·lografia de raigs X és l única de les tres tècniques que discutiré que ja havia proporcionat les primeres estructures de proteïnes a escala molecular fa trenta anys. La primera estructura tridimensional obtinguda per una proteïna va ser la de la mioglobina, resolta per Kendrew i col·laboradors, el 1958 (Kendrew et al., 1958). La primera estructura tridimensional d una molècula d àcid nucleic (l RNA de transferència), va ser obtinguda el 1973 (Kim et al., 1973). Des d aleshores l eficiència i la sensibilitat de la tècnica han augmentat espectacularment. Els principis teòrics de la cristal·lografia es basen en la relació matemàtica entre l estructura d una molècula i el patró de difracció que la mateixa molècula produeix en ser exposada a una font de radiació. L observació d un objecte en un microscopi segueix el mateix principi, en aquest cas la difracció de la llum provocada per l objecte observat és captada (desprès de ser enfocada a través de prismes òptics) per l ull humà. L anàlisi per difracció d estructures moleculars requereix radiacions de longitud d ona suficientment petita, i d energia suficientment alta, per provocar difracció a escala molecular. En el cas de la cristal·lografia
convencional la radiació utilitzada són els raigs X, i els elements moleculars que generen la difracció són els electrons de les molècules irradiades. Per poder obtenir un patró de difracció amb suficient energia per ser detectat, la cristal·lografia de raigs X requereix que la molècula que s estudiï hagi, prèviament, format un cristall uniforme. D aquesta manera les difraccions de tots els àtoms equivalents en totes les molècules del cristall es consoliden, i formen un senyal que pot ser observat i mesurat amb un detector. Gràcies a les relacions matemàtiques entre el patró de difracció i l estructura molecular de l objecte irradiat, és teòricament possible calcular la distribució espacial d electrons en la molècula cristal·litzada. Un cop la distribució dels electrons (o densitat electrònica) de la molècula ha estat calculada, és possible reconstruir l estructura atòmica de la molècula fent-ne encaixar les unitats (aminoàcids, o nucleòtids) dins de la densitat electrònica. El procés de cristal·lització de proteïnes o d àcids nucleïcs és el primer escull que cal superar a l hora d estudiar aquestes molècules per difracció de raigs X. La qualitat dels cristalls obtinguts és el principal factor que determina la resolució de l estructura final (McPherson, 1976). En essència, el procés de cristal·lització d una macromolècula és, encara avui, un procés empíric molt sovint limitat per la quantitat i la puresa del material que s ha de cristal·litzar. En aquest sentit, com hem dit abans, les noves tècniques de clonatge, expressió i purificació de proteïnes i àcids nucleïcs han suposat un gran avenç, perquè permeten l obtenció de grans quantitats de material en un estat de moltíssima puresa (McPherson, 1976). Un altre aspecte de la cristal·lografia que ha estat millorat en els últims trenta anys és el referent a la producció i detecció dels patrons de difracció de les molècules cristal·litzades. Moltes d aquestes millores són degu-
88 L. RIBAS I DE POUPLANA
des a avenços procedents de la recerca en física de partícules, que ha permès obtenir fonts de radiació més potents i uniformes (Moffat i Ren, 1997). Una altra millora substancial ve de l increment en el poder computacional, que ha permès accelerar el gran nombre de càlculs requerits per la construcció dels mapes de densitat electrònica a partir dels patrons de difracció. Per altra banda, la millora i l abaratiment dels sistemes de visualització gràfica en tres dimensions (desenvolupats a partir dels anys setanta) han facilitat en gran manera la construcció i la difusió dels models cristal·logràfics. El 1972, per exemple, els únics aparells disponibles per dur a terme aquestes operacions (que avui estan a l abast de qualsevol ordinador personal) tenien un preu aproximat de setcents mil dòlars de l època (al canvi actual, uns cent milions de pessetes. Meyer, 1997). La cristal·lografia ha experimentat també importants avenços metodològics i teòrics. La principal limitació del càlcul de densitats electròniques és el fet que, a partir de la difracció que es recull d un cristall, és impossible obtenir un dels paràmetres essencials per a les posteriors operacions matemàtiques. Aquest paràmetre és la fase de cada difracció, que no es pot mesurar, perquè cada difracció prové de tots els àtoms estructuralment equivalents en el cristall (Tivol, 1995). L estratègia habitual per obtenir les fases d un patró de difracció es basa en la introducció, en els cristalls, d àtoms de gran densitat electrònica, que són detectats per la seva potent difracció, i utilitzats per calcular les fases de les difraccions dels àtoms del seu voltant. Aquest mètode, conegut com a reemplaçament isomorf, requereix que els àtoms de gran densitat s incorporin a un nombre limitat de posicions específiques en la molècula, sense afectar ni la conformació d aquesta ni l estructura del cristall. En els últims quinze anys han aparegut diversos mètodes alternatius que permeten obtenir les
fases de difracció amb més facilitat en utilitzar els avenços en els mètodes d enginyeria genètica. Un elegant exemple ve donat pel mètode desenvolupat per Hendrickson i col·laboradors, el 1985, per incorporar àtoms pesants en la seqüència de proteïnes a mesura que aquestes són sintetitzades dins la cèl·lula, substituint residus específics de cisteïnes per l aminoàcid selenocisteïna (Hendrickson et al., 1985). La selenocisteïna funciona, en essència, com un àtom pesant amb gran potència de difracció. La mutació específica de gens per incorporar aquest tipus d aminoàcids a posicions determinades permet, dons, la incorporació d un àtom pesant directament al cristall. La ressonància magnètica nuclear La ressonància magnètica nuclear (RMN) és el segon mètode més important a l hora d obtenir estructures moleculars de macromolècules (Wagner, 1997). A grans trets, la tècnica consisteix a definir la posició relativa de cada nucli de la molècula d interès, a partir de la identificació del altres nuclis de la mateixa molècula amb els quals interacciona. La RMN va començar a ser aplicada per la resolució d estructures tridimensionals de macromolècules a mitjan dècada dels setanta (Wagner, 1997). Les primeres estructures detallades de proteïnes resoltes per RMN no van ser publicades fins a principis dels vuitanta (Williamson et al., 1985). Avui una cinquena part de totes les estructures tridimensionals disponibles al PDB provenen d experiments de RMN. Les millores tècniques en aquest camp han estat també molt importants, i han incrementat tant el grau de resolució de la RMN com el pes molecular de les molècules a l abast de la tècnica (Clore i Gronenborn, 1998). Tots els nuclis atòmics posseeixen un cert moment magnètic que ve determinat per la seva distribució de càrregues. Sota la
BIOLOGIA ESTRUCTURAL: TRENTA ANYS FILANT PRIM 89
influència d un camp magnètic extern, el moment nuclear s orienta respecte al camp extern en la direcció més energèticament estable. Aquest estat pot ser alterat amb radiacions electromagnètiques. L energia requerida per alterar l orientació inicial dels moments magnètics dels nuclis és específica per a cada tipus de nucli, i depèn del seu entorn molecular (Roberts, 1993). L objectiu dels experiments de RMN en biologia estructural és identificar cada nucli individual de la molècula que s estudia, els nuclis que l envolten i la posició tridimensional relativa de tots. Aquesta identificació es basa en les característiques energètiques del moment magnètic de cada nucli. Els principals avantatges de la tècnica són tres. En primer lloc, les estructures obtingudes corresponen als estats en solució, sense els possibles artefactes de les interaccions entre molècules cristal·litzades. En segon lloc, l anàlisi de les interaccions físiques entre els nuclis proporciona una imatge dinàmica, que permet identificar les característiques de mobilitat de les molècules. Finalment, les tècniques de RMN són molt sensibles a interaccions moleculars de baixa afinitat, i resulten molt útils per a l estudi de les interaccions intermoleculars, ja siguin entre inhibidors moleculars i les seves dianes, o en processos de reconeixement molecular de dues biomolècules (Roberts, 1993). D una manera equivalent a la cristal·lografia, el desenvolupament de mètodes d expressió de proteïnes en bacteris ha permès també millorar molt els resultats dels experiments de RMN. Un primer avenç ha estat la conseqüència de les millores en quantitat i qualitat del material disponible. D altra banda, la possibilitat d expressar proteïnes o àcids nucleïcs en bacteris crescuts en medis enriquits amb isòtops químics (especialment 15N i 13C) ha permès purificar molècules marcades amb aquests isòtops, la qual cosa facilita el procés d i-
dentificació dels seus nuclis (Kainosho, 1997). La biocomputació Els principis teòrics de la biocomputació estructural comencen a establir-se a principis dels anys setanta, quan les primeres anàlisis estadístiques de les estructures cristal·logràfiques de proteïnes es duen a terme (Bajorath et al., 1993; Rost i Sander, 1994; Rost et al., 1993). Les tècniques de biocomputació estructural es basen en la utilització de dades experimentals per a la predicció de l estructura de biomolècules a partir de la seva seqüència. Per aquesta raó, el seu desenvolupament es troba necessàriament lligat al creixement dels bancs de dades de seqüències i estructures, tant de proteïnes com d àcids nucleics. D altra banda, les tècniques de modelatge s han pogut beneficiar de la constant millora de les prestacions dels ordinadors disponibles, i de l aparició de noves tècniques de programació. La importància de la biocomputació rau, sobretot, en la velocitat amb què permet l obtenció de models estructurals, útils per a la generació d hipòtesis experimentals. Aquesta velocitat fa que les tècniques computacionals siguin els únics mètodes viables per a l anàlisi dels bancs de dades de seqüències, que estan experimentant creixements exponencials. Aquest creixement es deu, sobretot, a la proliferació de projectes de seqüenciació de genomes (al moment d escriure aquest article el nombre de genomes complets seqüenciats és de divuit. Vegeu http://www.tigr.org). El principal banc de dades de sequències genètiques, el GenBank, conté més de 2.800.000 seqüències, 1.200.000 de les quals han estat incorporades des de l agost de 1997 (Benson et al., 1998). A aquest ritme de creixement, la mida de GenBank es duplica cada quinze mesos. Els mètodes biocomputacionals, i el de-
90 L. RIBAS I DE POUPLANA
senvolupament de la xarxa Internet, han posat a l abast de la majoria d investigadors la capacitat de a) identificar les famílies estructurals a les quals pertany qualsevol nova seqüència, b) predir la funció de la molècula i determinar quins residus poden ser importants, i c) predir el plegament terciari de noves proteïnes, si l estructura d una altra proteïna suficientment homòloga ja ha estat resolta per cristal·lografia o RMN. La biologia estructural ha deixat de ser la disciplina minoritària, extremadament complicada i difícil de valorar i/o d utilitzar que devia ser fa trenta anys. Les generacions futures de biòlegs moleculars seran educades en l ús i l anàlisi rutinària de dades estructurals. Els experiments biològics, des de l anàlisi biofísica de macromolècules fins a estudis de genètica de poblacions, es duran a terme en el context d informació molecular detallada. Aquesta base molecular permetrà una integració del coneixement nova, i una gran interacció de disciplines diferents, tal i com demanava Margalef en el col·loqui de 1970 (Margalef et al., 1971). TRENTA ANYS DE DESCOBRIMENT Ara fa tres dècades, els descobriments del codi genètic i dels seus mecanismes de replicació i expressió van marcar un canvi en la història de la biologia. Els principis més fonamentals de la vida havien estat delineats, i l esforç dels investigadors es començava a centrar en els detalls d aquests processos. Lògicament, trenta anys de recerca han incrementat el nostre grau de comprensió de molts aspectes de la biologia molecular i han proporcionat imatges atòmiques de moltes de les interaccions que regulen la divisió i el creixement de les cèl·lules. Un aspecte d aquest desenvolupament, impossible de predir a finals dels seixanta, ha estat l explosió d aplicacions mèdiques i
tecnològiques derivades del progrés de la biologia molecular. Hi ha hagut, també, sorpreses i descobriments que han canviat qualitativament la nostra percepció de la vida, i de la seva evolució. D entre aquest grup nombrós de resultats en discutiré dos amb un cert detall: la natura essencialment física dels processos de regulació de la vida i el paper de l RNA en l origen de la vida. Tractem doncs d interaccions moleculars que són física i només física. Al llarg dels segles la complexitat dels sistemes vius ha sorprès i fascinat tots aquells que han volgut estudiar-los. Aquesta complexitat és prou intimidatòria com per convèncer més d un il·lustre pensador que la seva base fonamental no podria ser explicada per simples principis físics. Aquestes teories vitalistes han estat una de les víctimes conceptuals de la biologia estructural. La noció que la vida, com a fenomen, no podria ser explicada per lleis físiques va arribar a ser defensada fins a mitjan segle. El 1932 Niels Bohr («pare» de la física quàntica) argumentava: «la qüestió, de fet, és saber si ens manquen encara per descobrir trets fonamentals de la vida, que haurem de determinar abans de poder explicar-la en termes físics» (traduït a partir de Bohr, 1933). Max Delbruck, deixeble de Bohr i un dels fundadors de la biologia molecular, reafirmava aquesta opinió en escriure el 1949: «és possible que trobem característiques de les cèl·lules vives que no són reductibles a principis físics, i que representen lleis complementàries a les de la física atòmica» (traduït a partir de Delbrück, 1935). Naturalment aquesta opinió tenia, ja aleshores, importants crítics, entre els quals destacava un altre notable físic: Erwin Schrödinger. En el seu llibre Què és la vida? (Schrödinger, 1945) Schrödinger escriu: «l evident incapacitat de la física i de la química d avui per explicar els fenòmens que tenen lloc en un ésser
BIOLOGIA ESTRUCTURAL: TRENTA ANYS FILANT PRIM 91
viu no és raó per dubtar que aquests processos puguin ser inclosos dins d aquestes ciències». El descobriment de l estructura del DNA i les implicacions mecanicistes per a la comprensió de la transmissió de l herència van ser els primers revessos importants que va rebre el «vitalisme molecular» (Watson i Crick, 1953). Els models de manteniment de la fidelitat del codi genètic en la seva replicació, regulació i expressió, que van començar a aparèixer a principis dels seixanta, eren ja purament mecanicistes, basats en interaccions físiques entre components cellulars (Pardee et al., 1959). Els primer model de regulació descrit, el de l operó Lac d Escherichia coli, va demostrar el paper de les interaccions moleculars en la regulació gènica, i va evidenciar la necessitat d obtenir informació atòmica per arribar a una comprensió total dels sistemes de control biològics (Pardee et al., 1959). En particular, era necessari explicar quin era el mecanisme que permetia a les proteïnes reconèixer seqüències específiques de DNA i RNA. Aquesta informació a escala atòmica no va començar a arribar fins vint anys més tard. Les primeres estructures tridimensionals de proteïnes d unió al DNA van ser resoltes a principis dels vuitanta (Pabo i Sauer, 1984). Al mateix temps, tècniques de modelatge computacional i RMN van ser utilitzades per construir els primers models atòmics de les interaccions proteïna-DNA (Pabo i Sauer, 1984). El 1988 les cinc primeres estructures de complexos entre proteïnes reguladores i DNA van ser publicades, una d elles resolta per RMN (Pabo i Sauer, 1992). El 1989 la primera estructura cristal·logràfica de la interacció entre una proteïna i una molècula de RNA va ser publicada (Rould et al., 1989). A la fi de 1998 el banc de dades PDB conté unes cent vint estructures de complexos entre DNA i proteïnes, i
unes cinquanta de complexos entre proteïnes i RNA. Amb el detall a escala atòmica va arribar la confirmació que els mecanismes reguladors dels processos biològics estan basats en interaccions atòmiques clàssiques, de tipus electroestàtic i hidrofòbic. La seva complexitat només és la conseqüència del gran nombre total d interaccions i del complicat equilibri termodinàmic entre cada biomolècula, el conjunt total de molècules presents dins la cèl·lula i el solvent (Pabo i Sauer, 1992). L estudi experimental d aquestes forces (utilitzant tècniques biofísiques, bioquímiques i genètiques), i el disseny de mètodes computacionals per a la simulació molecular, han generat un grau de comprensió relativament bo dels principis fonamentals de l estructura de biomolècules. La utilització racional d aquests principis per manipular aquestes interaccions és, avui en dia, un procés rutinari per al disseny de fàrmacs, nous biocatalitzadors, etc. (Hoog et al., 1995; Hunter, 1995; Nagase et al., 1998). Del món de RNA al món de DNA i proteïnes: nissaga de poder El descobriment del sistema genètic va generar el famós dogma de la biologia: «del DNA se n fa RNA, de l RNA se n fa proteïna». El dogma donava al DNA el paper de sistema documental, o llibre d instruccions, i a les proteïnes el rol de catalitzadors, o maquinària. El paper que l RNA tenia dins d aquest esquema es limitava a ser sistema de transferència, o intermediari sense cap funció important de control. Aquesta visió, però, generava una paradoxa sense solució: si el DNA fa les proteïnes i les proteïnes fan el DNA, qui va fer el primer DNA i/o la primera proteïna? Intrigats per la ubiqüitat de l RNA, Woese, Crick i Orgel van publicar les primeres es-
92 L. RIBAS I DE POUPLANA
peculacions sobre el seu possible rol funcional durant l evolució de la vida (Crick, 1968; Orgel, 1968; Woese, 1967). Es va començar a perfilar la hipòtesi d un món prebiòtic, on les funcions d emmagatzematge del material genètic i de catàlisi de reaccions metabòliques havien estat dutes a terme per molècules de RNA. Aquests autors, però, no van anticipar la possibilitat que algunes d aquestes molècules de RNA catalític haguessin sobreviscut fins als sistemes actuals. Els primers estudis estructurals sobre l RNA van demostrar que l estructura tridimensional d aquesta molècula és molt diferent a la de la doble hèlix del DNA (Kim et al., 1973). L estructura tridimensional de l RNA de transferència (tRNA) va revelar una arquitectura globular, amb un plegament complicat, i amb una distribució de grups funcionals més semblant a les proteïnes que al DNA (Kim et al., 1973). El primer indici experimental de l existència d excepcions al dogma general, i de la capacitat de l RNA per dur a terme altres funcions, va arribar el 1970 (Baltimore, 1970). El descobriment de la retrotranscriptasa inversa, l enzim responsable de la síntesi de DNA a partir del genoma de RNA dels retrovirus, va demostrar la capacitat de l RNA per dur a terme funcions de codificador del genoma, normalment associades al DNA. L RNA, doncs, podia generar estructures tridimensionals globulars, semblants a les dels enzims, i podia ser utilitzat en lloc del DNA com a material genètic. La peça que faltava per acabar el trencaclosques va arribar el 1982 amb el descobriment pels grups de Cech i Altman de les ribozimes, o molècules de RNA que catalitzen reaccions metabòliques in vivo (Guerrier-Takada et al., 1983; Kruger et al., 1982). La capacitat de l RNA per dur a terme les tres funcions contingudes en el dogma de la biologia va res-
suscitar les hipòtesis sobre el paper de l RNA en l evolució inicial de la vida, i el terme món de RNA (Gilbert, 1986) es va crear per referir-se a aquesta fase hipotètica de l evolució. La dificultat de provar l existència d un metabolisme que hauria existit fa més de 3.500 milions d anys és immensa, i és possible que la hipòtesi del món de RNA no pugui ser mai provada inequívocament. Però el volum de les dades circumstancials continua creixent. A finals dels vuitanta van començar a aparèixer els primers treballs dedicats a la selecció in vitro de molècules de RNA amb noves activitats catalítiques. Des d aleshores els laboratoris de Joyce, Szostak i altres han estat capaços de seleccionar molècules de RNA que catalitzen diverses de les funcions essencials per a la replicació i l expressió d un genoma de RNA, inclosa la catàlisi de l enllaç peptídic entre dos aminoàcids (Ellington i Szostak, 1990; Joyce i Orgel, 1986; Zhang i Cech, 1997). L estudi dels components de l aparell de traducció genètica ha aportat dades directes de la relativa antiguitat de les molècules de RNA respecte a les proteïnes en aquest procés metabòlic. El pas central en la transmissió del codi genètic a informació en forma d aminoàcid és la reacció d aminoacilació del tRNA per l enzim aminoacil-tRNA sintetasa (Schimmel i Soll, 1979). Aquesta reacció és l únic punt del procés de síntesi de proteïnes on la informació continguda en el sistema de codons és transformada a seqüència proteica. La relació de reconeixement estructural entre el tRNA i les aminoacil-tRNA sintetases lliga l evolució de les dues molècules i permet comparar-ne les antiguitats respectives utilitzant mètodes filogenètics (Brown i Doolittle, 1995; Schimmel i Ribas de Pouplana, 1995). D aquests estudis es desprèn que l aparició de les molècules de tRNA, i la seva especificitat per aminoàcid, precedeix l aparició de les
BIOLOGIA ESTRUCTURAL: TRENTA ANYS FILANT PRIM 93
aminoacil-tRNA sintetases (Ribas de Pouplana et al., 1998). Per tant, en un escenari biòtic anterior, les molècules de tRNA eren probablement aminoacilades per algun altre catalitzador, possiblement altres molècules de RNA. Però l evidència més convincent del paper ancestral de la catàlisi per RNA ha vingut dels estudis estructurals sobre el ribosoma (Green i Noller, 1997; Noller, 1991a; Noller, 1991b). L obtenció de l estructura tridimensional del ribosoma és un dels objectius més ambiciosos de la biologia estructural. La complexitat del problema ve donada per la massa molecular del ribosoma (~ 3x10⁶ daltons) i pel fet que és el resultat de la interacció de tres molècules de RNA i més de cinquanta proteïnes diferents. Els ribosomes es componen de dues subunitats, de diferent massa molecular. La subunitat gran del ribosoma bacterià (anomenada 50S, en relació amb el seu coeficient de sedimentació) conté dues molècules de RNA (23S i 5S) i trenta-una proteïnes diferents. Aquesta subunitat forma el centre catalític del ribosoma i interactua amb l extrem aminoacilat del tRNA. Diversos estudis estructurals han localit-
FIGURA 2. Esquema de les interaccions entre el ribosoma bacterià i la molècula de tRNA. La regió de l RNA 23S que conté la zona activa del ribosoma està detallada dins del model de la subunitat gran. (Modificat a partir de Schimmel i Alexander, 1998).
zat el centre actiu del ribosoma bacterià en la proximitat de la molecula de RNA 23S, (una cadena de RNA de 12.900 bases; vegeu la figura 2). Experiments duts a terme el 1992 pel grup de Noller havien ja fet intuir que el centre catalític del ribosoma podia estar format únicament per les molècules de RNA de la subunitat gran (Noller et al., 1992). Però la resposta definitiva a aquesta qüestió arribarà només amb la imminent obtenció de l estructura tridimensional del ribosoma a escala atòmica (Moore, 1998). A partir d aquesta fita la recerca sobre les bases estructurals de l origen de la vida continuarà, tant esbrinant les bases de les transicions moleculars que varen donar lloc al nom de DNA, com provant de reproduir les reaccions centrals de metabolisme cel·lular amb hipotètics catalitzadors primitius. Potser no haurem d esperar trenta anys abans de poder veure les primeres protocèl·lules creades in vitro exclusivament sobre la base de molècules de RNA. CONCLUSIÓ Els principis teòrics de la cristal·lografia i la RMN ja havien estat definits fa trenta anys. Però la seva aplicació a la biologia molecular i, sobretot, la disponibilitat dels seus resultats per a la majoria dels investigadors és un fet molt més recent. El creixement dels bancs de dades i la proliferació de sistemes per estudiar-los, han posat a les mans de tots els biòlegs moleculars eines d anàlisi estructural fins fa molt poc inexistents. La paraula clau és ara «educació». Les futures generacions d investigadors han de ser formades en la utilització d aquestes eines, i estimulades a considerar els problemes biològics com a xarxes de qüestions interdisciplinàries, amb bases moleculars que, gràcies als estudis estructurals, comencem a entendre amb detall.
94 L. RIBAS I DE POUPLANA
AGRAÏMENTS Gràcies a la Dra. Àngels Almenar, pels comentaris i discussions, i a la Dra. Rebecca Alexander, per permetre m adaptar la figura dos. BIBLIOGRAFIA BAJORATH, J.; R. STENKAMP; A. ARUFFO (1993). «Knowledge-based model building of proteins: concepts and examples». Protein Sci., núm. 2, pàg. 1798-810. BALTIMORE, D. (1970). «RNA-dependent DNA polymerase in virions of RNA tumour viruses». Nature, núm. 226, pàg. 1209-11. BENSON, D. A.; M. S. BOGUSKI; D. J. LIPMAN; J. OSTELL; B. F. OUELLETTE (1998). «GenBank». Nucleic Acids Res., núm. 26, pàg. 1-7. BOHR, N. (1933). «Light and Life». Nature, núm. 131, pàg. 421. BROWN, J. R.; W. F. DOOLITTLE (1995). «Root of the universal tree of life based on ancient aminoacyl-tRNA synthetase gene duplications». Proc. Natl. Acad. Sci. USA, núm. 92, pàg. 2441-5. CLORE, G. M.; A. M. GRONENBORN (1998). «Determining the structures of large proteins and protein complexes by NMR». Trends Biotechnol., núm. 16, pàg. 22-34. CRICK, F. H. C. (1968). «The origin of the genetic code». Journal of Molecular Biology, núm. 38, pàg. 367-379. DELBRUCK, M. (1935). «Ueber die Natur der Genmutationund der Genstruktur». Nachr. Akad. Wiss. Goettingen Math. Physik Kl., núm. 6, pàg. 223. DORSET, D. L. (1996). «Electron crystallography». Acta Crystallogr. B., núm. 52, pàg. 753-69. ELLINGTON, A. D.; J. W. SZOSTAK (1990). «In vitro selection of RNA molecules that bind specific ligands». Nature, núm. 346, pàg. 818-22. FERREIRA, S. T.; T. COELHO-SAMPAIO (1996). «Intrinsic fluorescence as a probe of structure-function relationships in Ca(2+)-transport ATPases». Bioscience Reports, núm. 16, pàg. 87-106. FRANKLIN, R. E.; R. G. GOSLING (1953). «Evidence for 2chain helix in crystalline structure of sodium deoxyribonucleate». Nature, núm. 172, pàg. 156. GILBERT, W. (1986). «The RNA world». Nature, núm. 319, pàg. 618. GREEN, R.; H. F. NOLLER (1997). «Ribosomes and translation». Annu. Rev. Biochem., núm. 66, pàg. 679-716. GUERRIER-TAKADA, C.; K. GARDINER; T. MARSH; N. PACE; S. ALTMAN (1983). «The RNA moiety of ribonuclease P is the catalytic subunit of the enzyme». Cell, núm. 35, pàg. 849-57.
HANSEN, J. C.; J. LEBOWITZ; B. DEMELER (1994). «Analytical ultracentrifugation of complex macromolecular systems». Biochemistry, núm. 33, pàg. 13155-63. HENDRICKSON, W.A.; J. L. SMITH; S. SHERIFF (1985). «Direct phase determination based on anomalous scattering». Methods Enzymol., núm. 115, pàg. 41-55. HOOG, S. S.; B. ZHAO; E. WINBORNE; S. FISHER; D. W. GREEN; R. L. DESJARLAIS; K, A. NEWLANDER; J. F. CALLAHAN; M. L. MOORE; W. F. HUFFMAN; [et al.] (1995). «A check on rational drug design: crystal structure of a complex of human immunodeficiency virus type 1 protease with a novel gamma-turn mimetic inhibitor». J. Med. Chem., núm. 38, pàg. 3246-52. HUNTER, W. N. (1995). «Rational drug design: a multidisciplinary approach». Mol. Med. Today, núm. 1, pàg. 31, 34. JOYCE, G. F.; L. E. ORGEL (1986). «Non-enzymic template-directed synthesis on RNA random copolymers. Poly(C, G) templates». J. Mol. Biol., núm. 188, pàg. 433-41. KAINOSHO, M. (1997). «Isotope labelling of macromolecules for structural determinations». Nat. Struct. Biol., núm. 4, pàg. 858-61. KELLY, S. M.; N. C. PRICE (1997). «The application of circular dichroism to studies of protein folding and unfolding». Biochim. Biophys. Acta, núm. 1338, pàg. 161-85. KENDREW, J. C. (1950). «The crystal structure of horse met myoglobin. I. General features: the arrangement of the polypeptide chains». Proceedings of the Royal Society of London, núm. A201, pàg. 62-89. KENDREW, J. C.; G. BODO; H. M. DINTZIS; R. G. PARRISH; H. W. WYCKOFF; D. C. PHILLIPS (1958). «A three dimensional model of the myoglobin molecule obtained by x-ray analysis.». Nature, núm. 181, pàg. 662-666. KIM, S. H.; G. J. QUIGLEY; F. L. SUDDATH; A. MCPHERSON; D. SNEDEN; J. J. KIM; J. WEINZIERL; A. RICH (1973). «Three-dimensional structure of yeast phenylalanine transfer RNA: folding of the polynucleotide chain». Science, núm. 179, pàg. 285-8. KRUGER, K.; P. J. GRABOWSKI; A. J. ZAUG; J. SANDS; D. E. GOTTSCHLING; T. R. CECH (1982). «Self-splicing RNA: autoexcision and autocyclization of the ribosomal RNA intervening sequence of Tetrahymena». Cell, núm. 31, pàg. 147-57. LEWIN, B. (1970). «Second golden age of molecular biology». Nature, núm. 227, pàg. 1009-1013. LURIA, S. E.; M. DELBRÜCK (1943). «Mutations from virus sensitivity to virus resistance». Genetics, núm. 28, pàg. 491-511. MARGALEF, R.; R. PARÉS; A. PREVOSTI; J. VINAS; J. BAGUNYA; I. ARAGÓ (1971) MARGALEF, R. [ed.] «Cap on va la biologia moderna». Col·loquis. Barcelona: Societat Catalana de Biologia, Vol. 6. MCPHERSON, A., JR. (1976). «The growth and preliminary investigation of protein and nucleic acid crys-
BIOLOGIA ESTRUCTURAL: TRENTA ANYS FILANT PRIM 95 tals for X-ray diffraction analysis». Methods. Biochem. Anal., núm. 23, pàg. 249-345. MEYER, E.F. (1997). «The first years of the Protein Data Bank». Protein Science, núm. 6, pàg. 1591-7. MOFFAT, K.; Z. REN (1997). «Synchrotron radiation applications to macromolecular crystallography». Curr. Opin. Struct. Biol., núm. 7, pàg. 689-96. Moore, P. B. (1998) «The three-dimensional structure of the ribosome and its components» Annu. Rev. Biophys. Biomol. Struct., núm. 27, pàg. 35-58. NAGASE, H.; K. KAWAI; J. HAYAKAWA; H. WAKITA; A. MIZUSUNA; H. MATSUURA; C. TAJIMA; Y. TAKEZAWA; T. ENDOH (1998). «Rational drug design and synthesis of a highly selective nonpeptide deltaopioid agonist, (4aS*, 12aR*) -4a -(3-hydroxyphenyl) -2 -methyl 1,2,3,4,4a,5,12,12a -octahydropyrido [3,4-b]acridine (TAN-67) [In Process Citation]». Chem. Pharm. Bull. (Tokyo), núm. 46, pàg. 1695-702. NOLLER, H. F. (1991a). «Ribosomal RNA and translation». Annu. Rev. Biochem., núm. 60, pàg. 191-227. NOLLER, H. F. (1991b). «Ribosomes. Drugs and the RNA world». Nature, núm. 353, pàg. 302-3. NOLLER, H. F.; V. HOFFARTH; L. ZIMNIAK. (1992). «Unusual resistance of peptidyl transferase to protein extraction procedures». Science, núm. 256, pàg. 1416-9. ORGEL, L. E. (1968). «Evolution of the genetic apparatus». Journal of Molecular Biology, núm. 38, pàg. 381393. PABO, C. O.; R. T. SAUER (1984). «Protein-DNA recognition». Annu. Rev. Biochem., núm. 53, pàg. 293-321. PABO, C. O.; R. T. SAUER (1992). «Transcription factors: structural families and principles of DNA recognition». Annu. Rev. Biochem., núm. 61, pàg. 1053-95. PARDEE, A. B.; F. JACOB; J. MONOD (1959). «The genetic control and cytoplasmic expression of inducibility in the synthesis of B-galactosidase by E. coli.». Journal of molecular biology, núm. 1, pàg. 165-178. RIBAS DE POUPLANA, L.; R. J. TURNER; B. A. STEER; P. SCHIMMEL (1998). «Genetic code origins: tRNAs older than their synthetases?». Proc. Natl. Acad. Sci. USA, núm. 95, pàg. 11295-300. ROBERTS, G. C. K. (1993). «NMR of macromolecules. A practical approach.». A: RICKWOOD, D., B. D. HAMES [eds.], The parctical approach series. Oxford: IRL press.
ROST, B., C. SANDER (1994). «Structure prediction of proteins where are we now?». Curr. Opin. Biotechnol., núm. 5, pàg. 372-80. ROST, B.; R. SCHNEIDER; C. SANDER (1993). «Progress in protein structure prediction?». Trends Biochem. Sci., núm. 18, pàg. 120-3. ROULD, M. A.; J. J. PERONA; D. SÖLL; T. A. STEITZ (1989). «Structure of E. coli Glutaminyl-tRNA synthetase complexed with tRNA_Gln and ATP at 2.8 Å resolution». Science, núm 246, pàg. 1135-1142. SAGDOPAL, A. (1968). «The genetic code after the excitement». Advances in Genetics, núm. 14, pàg. 325-404. SCHIMMEL, P.; R. ALEXANDER (1998). «Perspectives: protein synthesis. All you need is RNA». Science, núm. 281, pàg. 658-9. SCHIMMEL, P.; L. RIBAS DE POUPLANA (1995). «Transfer RNA: from minihelix to genetic code». Cell, núm. 81, pàg. 983-6. SCHIMMEL, P. R.; D. SOLL (1979). «Aminoacyl-tRNA synthetases: general features and recognition of transfer RNAs». Annu. Rev. Biochem., núm. 48, pàg. 60148. SCHRÖDINGER, E. (1945). What is life? Nova York: Cambridge University press. STENT, G. S. (1968). «That was the molecular biology that was». Science, núm. 160, pàg. 390-395. TIVOL, W. F. (1995). «Solution of the phase problem in crystallography and application to dynamical electron diffraction». Acta Crystallogr. A., núm. 51, pàg. 708-16. WAGNER, G. (1997). «An account of NMR in structural biology». Nat. Struct. Biol., núm. 4 Suppl, pàg. 841-4. WATSON, J. D.; F. H. C. CRICK (1953). «A structure for desoxyribose nucleic acid». Nature, núm. 171, pàg. 737-738. WILLIAMSON, M. P.; T. F. HAVEL; K. WUTHRICH (1985). «Solution conformation of proteinase inhibitor IIA from bull seminal plasma by 1H nuclear magnetic resonance and distance geometry». J. Mol. Biol., núm. 182, pàg. 295-315. WOESE, C. (1967) «The evolution of the genetic code». The genetic code. Nova York: Harper & Row, pàg. 179-195. ZHANG, B.; T. R. CECH (1997). «Peptide bond formation by in vitro selected ribozymes». Nature, núm. 390, pàg. 96-100.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 97-106
LA BIOLOGIA COMPUTACIONAL RODERIC GUIGÓ Institut Municipal d Investigació Mèdica (IMIM) i Facultat de Ciències de la Salut i de la Vida. Universitat Pompeu Fabra. Adreça per a la correspondència: Institut Municipal d Investigació Mèdica (IMIM). Doctor Aiguader, 80. 08003 Barcelona. Adreça electrònica: rguigo@imim.es
ELS INICIS Després de la Segona Guerra Mundial es produeix l eclosió de dues disciplines científiques, la informàtica i la biologia molecular, el progrès de les quals des d aleshores ha estat espectacular i ha afectat profundament les nostres vides. A la fi dels anys quaranta entraven en funcionament els primers ordinadors digitals programables en memòria és a dir, els ordinadors tal com els entenem avui en dia. Poc després, l any 1953, Watson i Crick publicaven el famós article en el qual es descrivia l estructura del DNA, el mateix any que Sanger determinava per primera vegada la seqüència d aminoàcids d una proteïna. L any 1959, Perutz i Kendrew aconseguien determinar per primer cop l estructura tridimensional d una proteïna. És també als voltants d aquest any que apareix el primer llenguatge de programació d alt nivell d utilització general, el FORTRAN. Amb els llenguatges d alt nivell hom pot escriure les instruccions per tal que
un ordinador resolgui un determinat problema, sense necessitat de conèixer com l ordinador resol realment el problema: la utilització dels ordinadors deixa d estar limitada als enginyers que els dissenyen. Al principi dels anys seixanta els transistors començaven a substituir els tubs de buit en els circuits dels ordinadors i, en conseqüència, aquests esdevenien més petits, ràpids i econòmics. Cap a mitjan anys seixanta, la majoria de grans empreses processaven ja la informació financera utlitzant ordinadors digitals. D´altra banda, durant la primera meitat d aquella dècada, experiments de Korana, Brenner, Ochoa i altres permeteren desxifrar el codi d acord amb el qual la seqüència de nucleòtids del DNA especifica la seqüència d aminoàcids de les proteïnes. L any 1965 es determinava la primera seqüència d un àcid nucleic: la seqüència d una molècula de RNA de menys de cent nucleòtids. Mentrestant, el nombre de proteïnes de les quals hom havia pogut deduir la seqüència primària d ami-
98 R. GUIGÓ
noàcids augmentava. A mitjan anys seixanta Margaret Dayhoff i Ledley van començar a compilar les seqüències d aminoàcids conegudes. Tot i que inicialment aquesta compilació estava motivada per les necessitats de la recerca d aquests investigadors, successives actualitzacions d aquestes compilacions van ser posades de seguida a disposició de la comunitat científica; eren els Atlas of Protein Sequence and Structure, llibres en els quals Dayhoff presentava les seqüències agrupades en famílies de proteïnes funcionalment homòlogues. En la seva quarta edició a la fi dels anys seixanta, l Atlas contenia al voltant de tres-centes seqüències de proteïnes. A la fi dels anys seixanta, amb l aparició dels circuits integrats, els ordinadors esdevenien encara més petits, ràpids i assequibles. La possibilitat de disposar d ordinadors no es limitava ja a les grans empreses i als centres d investigació i desenvolupament militar, sinó que els ordinadors començaven a ser a l abast també de les universitats i dels centres de recerca. Amb l assequibilitat dels ordinadors i la popularització dels llenguatges de programació d alt nivell, la computació va anar esdevenint, en molts camps, part habitual de la pràctica científica. En el cas de la biologia, la repercussió va ser més gran en aquells camps en els quals l anàlisi estadística o la modelització matemàtica tenen un paper més rellevant, com ara la genètica, l ecologia o la fisiologia. En particular, els ordinadors van permetre dur a terme anàlisis més exhaustives de la compilació de seqüències d aminoàcids de Dayhoff i col·laboradors. Durant els seixanta, aquestes seqüències s utilitzaren sobretot per establir arbres filogenètics. Aquestes filogènies es construïen sota l assumpció que la distància evolutiva entre dues espècies era proporcional a la freqüència de canvis en la seqüència d aminoàcids de les seves proteïnes: naixia la filogènia
molecular. L any 1969 es produïa un altre fet rellevant: investigadors del Bell Laboratories creaven el sistema operatiu UNIX. Per les seves característiques, UNIX esdevindria amb els anys la plataforma sobre la qual es desenvoluparien la major part d aplicacions computacionals en biologia molecular. Durant els anys setanta, la tendència a la progressiva miniaturització dels components dels ordinadors i, en conseqüència, a l increment de la seva potència i a la disminució del seu preu, va continuar. Cap a la meitat d aquesta dècada, els fabricants de computadores van treure al mercat els primers miniordinadors: els ordinadors deixen de ser monopoli de les grans universitats i centres de recerca, i comencen a ser presents als departaments i laboratoris. La proliferació d ordinadors i els avenços paral·lels en programació van conduir a l aparició i el creixement de les xarxes informàtiques. És durant aquests anys que es produeix el desenvolupament d ARPAnet, la xarxa del Departament de Defensa dels Estats Units, basada en el protocol TCP/IP. Hom considera habitualment ARPAnet la xarxa predecessora d Internet. Pel que fa a la biologia molecular, l any 1973 s establia a Brookhaven la base de dades de les coordenades estructurals de les proteïnes. La confrontació de les seqüències de les proteïnes amb les seves estructures va permetre desenvolupar, a la fi dels setanta, els primers mètodes estadístics per a la predicció de l estructura secundària de les proteïnes. Aquests mètodes es basaven en la propensió diferencial dels aminoàcids a trobar-se en els diferents elements estructurals. És també durant els anys setanta que es desenvolupen les tècniques de clonatge del DNA i de DNA recombinant. La seqüenciació de molècules de DNA, però, romania elusiva: si a la fi dels anys seixanta s´havien compilat ja alguns centenars de seqüències de proteïnes, el
LA BIOLOGIA COMPUTACIONAL 99
nombre de molècules de DNA seqüenciades no era superior a la vintena. Fins i tot, hom havia arribat a afirmar que la seqüenciació del DNA era intrínsecament impossible. Aquesta situació va canviar radicalment a partir de l any 1975 amb el desenvolupament dels mètodes de seqüenciació de Maxam i Gilbert, i de Sanger. L any 1977, al laboratori de Sanger hom obtenia la seqüència completa del primer genoma d un organisme: els gairebé 5.400 nucleòtids del genoma del virus fX174. En pocs anys, la seqüènciació de DNA esdevindria rutinària. Al final dels anys setanta havia estat determinada ja la seqüència d un nombre elevat de proteïnes i molècules de DNA, i els ordinadors eren potents i fàcilment programables: les eines necessàries per emmagatzemar i analitzar les noves dades que la recerca en biologia molecular genera s´han desenvolupat, doncs, paral·lelament, però independentment de les eines necessàries per generar aquestes dades. Tot i així, els mètodes estadístics i de modelització matemàtica, orientats essencialment al tractament de les quantitats, es mostraven limitats davant la peculiar naturalesa de les noves dades que la investigació en biologia molecular generava: seqüències de lletres. Dades de naturalesa diferent, que plantejaven nous problemes i requerien noves maneres de pensar. L agrupació que Dayhoff havia fet de les seqüències d aminoàcids en famílies homòlogues relacionades funcionalment o evolutiva havia demostrat que la seqüència concreta d aminoàcids de les proteïnes i la seqüència de nucleòtids del DNA són portadores de gran quantitat d informació sobre la funció i la història d aquestes molècules: seqüències semblants indiquen una funció o una història similar. Així, el problema de determinar el grau de similitud entre dues seqüències esdevenia clau en biologia molecular. És en resposta a aquest problema que
Needelman i Wunsch, primer, i Sellers després, durant els setanta, i Smith i Waterman, al principi dels vuitanta, varen elaborar els primers algoritmes de programació dinàmica per a l alineament, comparació i determinació del grau de similitud de dues seqüències. En cert sentit podríem dir que és amb el desenvolupament d aquests algoritmes que neix la biologia molecular computacional: en el moment en el qual les tècniques estadístiques o matemàtiques conegudes deixen de ser suficients per afrontar els nous problemes que les noves dades moleculars plantegen i es fa necessari desenvolupar noves tècniques matemàtiques, algorítmiques i computacionals. LES GRANS COMPILACIONS DE SEQÜÈNCIES Al principi dels vuitanta, el nombre de seqüències conegudes havia crescut de manera espectacular. Els avenços en tecnologia de seqüenciació del DNA havien convertit la seqüenciació del DNA en més simple que la seqüenciació de proteïnes, i cada cop era més freqüent inferir la seqüència d aminoàcids d una proteïna a partir de la seqüència de DNA que la codificava que no pas seqüenciar directament la proteïna. Es feia evident que la distribució de les col·leccions de seqüències en format imprès no podia mantenir-se gaire més temps. Així, l any 1982 es creava a Los Alamos National Laboratory la base de dades americana de seqüències de nucleòtids en format electrònic, GenBank. Gairebé al mateix temps, el Laboratori Europeu de Biologia Molecular (EMBL) creava la seva pròpia base de dades electrònica de seqüències de DNA a Heidelberg. El primer release de la base de dades d EMBL, el juny de 1982, contenia 582 seqüències que sumaven poc menys de 600.000 nucleòtids. L existència de compilacions electròni-
100 R. GUIGÓ
ques de seqüències va facilitar-ne enormement l anàlisi computacional. Durant els primers anys de la dècada dels vuitanta, tècniques computacionals van ser desenvolupades tant per definir i identificar senyals sintàctics en les seqüències de DNA i proteïnes, com per mesurar regularitats estadístiques en la seva composició. En línies generals, els patrons sintàctics correspondrien als senyals efectivament responsables de les diverses funcions de les seqüències llocs de splicing, elements promotors, llocs antigènics... , mentre que les regularitats estadístiques com ara les que caracteritzen les regions codificants en el DNA o les regions hidrofòbiques en les proteïnes reflectirien el resultat sobre la composició de les seqüències de l exercici d aquestes funcions. La biologia molecular computacional es consolidava. L existència de bases de dades en format electrònic, però, va fer possible sobretot la comparació sistemàtica de les noves seqüències amb les seqüències ja existents. L any 1982, Lipman va proposar un mètode basat en la construcció de les anomenades hash tables per dur a terme recerques eficients en les bases de dades de seqüències. Aquest és el mètode en el qual estan basats programes tan populars, avui en dia, com FASTA o BLAST. El mateix any, IBM treia al mercat el primer ordinador personal, el PC: als laboratoris i als centres de recerca, els ordinadors començaven a ocupar les taules dels investigadors. Va ser precisament utilitzant el seu ordinador personal que Doolittle va descobrir l any 1983, mentre duia a terme recerques rutinàries en les bases de dades de seqüències, la similaritat entre un oncogen i un factor de creixement. Una relació que havia passat desapercebuda a investigadors de Harvard i de Caltech, i que contribuïa substancialment a la comprensió dels mecanismes moleculars involucrats en el càncer. Aquest i altres resultats similars, en els quals la funció d un
gen era (almenys parcialment) inferida a partir de la similaritat de la seva seqüència amb seqüències de funció coneguda, van demostrar la importància de la biologia computacional. En la història de la biologia, la investigació purament teòrica (o, millor dit, no experimental) mai no s havia demostrat tan rellevant. La recerca en biologia molecular començava a ser dependent de la computació. Durant els anys vuitanta, el nombre de seqüències conegudes augmentava a un ritme exponencial. Tant a GenBank com a EMBL, però, les seqüències continuaven sent copiades a la base de dades directament dels articles on havien estat publicades. El manteniment i l actualització de les bases de dades requeria, en conseqüència, una intervenció humana considerable. Òbviament, els recursos humans de què hom disposava per mantenir i actualitzar les bases de dades no podien créixer al mateix ritme que el nombre de seqüències. El resultat era que el període de temps transcorregut des de la publicació d una seqüència a la seva introducció a la base de dades creixia continuadament. A la fi de l any 1986, aquest endarreriment s havia estimat en prop de dos anys, i no feia altra cosa que augmentar. El model original d operació de les bases de dades era clarament insostenible. A mitjan anys vuitanta, però, les xarxes d ordinadors Internet, en particular s estenien per les universitats i centres de recerca. La concurrència d´aquest fet amb la creixent popularització dels ordinadors personals va fer possible la implantació d un nou model de manteniment i actualització de les bases de dades: els autors enviaven directament a la base de dades les seqüències en format electrònic, amb freqüència creixent a través d Internet. La intervenció humana necessària per mantenir i actualitzar les bases de dades es reduïa considerablement. Al principi dels noranta, aquest model
LA BIOLOGIA COMPUTACIONAL 101
s havia implantat plenament, i les bases de dades estaven, essencialment, actualitzades. L any 1990 començava «oficialment» el projecte del Genoma Humà als Estats Units. L objectiu d aquest projecte és l obtenció de la seqüència dels tres mil milions de nucleòtids que constitueixen el genoma humà i la identificació dels aproximadament cent mil gens codificats en aquesta seqüència. Donada la magnitud del volum de dades que aquest projecte i els projectes de seqüenciació dels genomes d altres organismes hauria de generar, i la rellevància que l anàlisi computacional de seqüències havia demostrat, hom era conscient des que es va concebre que el projecte del Genoma Humà era impossible sense el concurs de la computació. Com es pot llegir en un document de principis dels noranta del Department of Energy (DOE), l organisme que juntament amb els National Institutes of Health (NIH) és el reponsable del desenvolupament del projecte del Genoma Humà als Estats Units: «El Programa del Genoma Humà produirà grans quantitats de dades complexes tant sobre la seqüència de DNA com sobre els mapes que se n construeixen. El desenvolupament de projectes informàtics en algoritmes, programari i bases de dades és crucial per a l acumulació i la interpretació d aquestes dades de manera robusta i automatitzada en els centres de seqüenciació genòmica... Els sistemes computacionals tenen un paper essencial en tots els aspectes de la recerca genòmica, des de l adquisició de les dades fins a la seva anàlisi i manipulació. Sense computadors potents i sistemes apropiats per al tractament de dades, la recerca genòmica és impossible.» CAP A UNA RECERCA INTEGRADA Al principi dels noranta, però, no era només als centres de seqüenciació massiva
on la informàtica s havia convertit en essencial; la utilització dels ordinadors s estenia a pràcticament qualsevol laboratori de biologia molecular, i la utilització, ja fos local o remota a través d una xarxa informàtica, de programes d anàlisi de seqüències esdevenia rutinària. Al marge dels projectes genòmics, doncs, durant la primera dècada dels noranta, el volum de dades moleculars acumulades a les bases de dades continuava creixent de manera exponencial. No es tractava només de seqüències de DNA i de proteïnes, sinó de moltes altres dades de diferents tipus: mapes físics i genètics, estructures de proteïnes, xarxes metabòliques, dades funcionals a diferents escales. Els investigadors en biologia molecular desitjaven accés immediat a tota aquesta informació. Per exemple, els investigadors interessats en un determinat gen voldrien conèixer la seqüència, la localització cromosòmica, la funció i l estructura de les proteïnes codificades per gens similars, els teixits o estadis del desenvolupament en els quals el gen s expressa, els potencials gens homòlegs en organismes models... Aquesta informació, tanmateix, es troba dispersa en dotzenes de bases de dades especialitzades independents, cada una amb la seva pròpia estructura i el seu peculiar mecanisme d accés. La necessitat de disposar d un sistema integrat i consistent d accés transparent en aquestes bases de dades heterogènies esdevenia òbvia. L any 1991, de manera totalment aliena a les necessitats de la biologia molecular, investigadors de l Organització Europea per l Energia Nuclear (CERN) inventaven el World Wide Web (WWW), un sistema hipermedia a Internet. Amb el desenvolupament l any 1993 al National Center for Supercomputer Applications (NCSA) de Mosaic, un dels primers navegadors, WWW i, en conseqüència, Internet adquirien una difusió extraordinària. En pocs anys, Internet formaria part de la nostra vida quotidia-
102 R. GUIGÓ
na. Possiblement mai abans en la història de la humanitat, una nova tecnologia no s havia imposat amb tanta celeritat. La infraestructura proporcionada per WWW a Internet resolia molts dels problemes d accés, integració i anàlisi d informació amb què s enfrontava la investigació en biologia molecular cap a la meitat dels noranta. Internet permetia l actualització constant de les bases de dades i WWW proporcionava als usuaris una interfície consistent per a l accés, la consulta i fins i tot l anàlisi d aquestes dades. La tecnologia hipertext permetia la navegació transparent a través de bases de dades heterogènies i distants. Aprofitant aquesta tecnologia, dos sistemes integrats d accés a les bases en biologia molecular a Internet, Entrez i Sequence Retrieval System (SRS), van ser desenvolupats gairebé simultàniament al National Center for Biotechnology Information (NCBI) i a l Institut Europeu de Bioinformàtica (EBI), dues institucions públiques creades al final dels vuitanta i principi dels noranta als Estats Units i a Europa, respectivament, per fer front a les necessitats creixents de recursos computacionals de la recerca en biologia molecular. En cert sentit, hom podria dir que a partir de mitjan anys noranta una part important de la investigació en biologia molecular té lloc a Internet: Internet és el lloc on resideixen les dades i on es duen a terme les computacions. Certament, els projectes genòmics, tal com els entenem avui en dia projectes cooperatius a escala mundial on la comunicació instantània entre productors de dades i entre aquests i els seus consumidors és essencial no serien possibles sense Internet. Cap a la meitat dels anys noranta, hom posava de manifest una nova vessant, fins a cert punt insospitada, de la relació cada cop més estreta entre biologia molecular i computació. L any 1994, Adelman demostrava que el DNA té capacitat de calcular. Concretament, utilitzant tècniques estàndard de
biologia molecular, va resoldre un problema típic en computació dels anomenats NP-complets: el de decidir si un graf és hamiltonià, és a dir, si existeix un camí que passa per tots els nodes del graf només una vegada. Tot i que la versió concreta del problema que va resoldre era molt senzilla, el fet que en la resolució intervinguessin només molècules de DNA i enzims implicats en el seu processament anticipava la possibilitat de construir ordinadors moleculars. Des d aleshores s´han publicat dotzenes d articles sobre el problema i hi ha qui manté que, en determinades aplicacions, els ordinadors basats en DNA poden constituir una alternativa viable als ordinadors digitals actuals. Mentrestant, els projectes genòmics continuaven progressant. L any 1992 es publicava la seqüència del cromosoma III de llevat (315.000 nucleòtids) el primer cromosoma d un organisme eucariota completament seqüenciat. L any 1995, la companyia privada TIGR anunciava l obtenció de la seqüència d Haemophilus influenzae (1,8 milions de nucleòtids), el primer genoma no víric completament seqüenciat. Aquest fet posava de manifest l interès de la indústria farmacèutica i biotecnològica en la recerca genòmica i, en conseqüència, en la biocomputació: un gran nombre de companyies realitzaven inversions en alguns casos milionàries per dotar-se de departaments de recerca i desenvolupament en bioinformàtica. L any 1996 hom completava el genoma de llevat (dotze milions de nucleòtids), el primer d un organisme eucariota; l any 1997 el genoma d Escherichia coli (4,5 milions de nucleòtids), al final de l any 1998 el genoma de Caenorhabditis elegans (noranta-set milions de nucleòtids), el primer d un organisme eucariota multicel·lular. En tots aquests casos, l anàlisi computacional ha estat essencial per interpretar les seqüències d aquests genomes, en particular per identificar-ne els
LA BIOLOGIA COMPUTACIONAL 103
gens i per inferir la funció probable d un gran nombre d aquests. En el cas de C. Elegans, per exemple, els sis articles publicats a la revista Science que descriuen la seqüenciació i l anàlisi del seu genoma contenen anàlisis computacionals, dos d aquests articles depenen substancialment d aquestes anàlisis i un d ells en el qual hom compara exhaustivament les proteïnes de llevat i les de C. Elegans és exclusivament computacional. Al principi de l any 1999, una vintena de genomes, sense comptar els genomes vírics, han estat ja seqüenciats la majoria d organismes procariotes , i l etapa de seqüenciació massiva del projecte Genoma Humà ha començat. Durant els propers anys, milions, potser desenes de milions o, fins i tot, centenars de milions de nucleòtids seran seqüenciats diàriament arreu del món. Aquesta empresa afectarà de manera radical el desenvolupament de la biologia i tindrà un impacte extraordinari en la medicina, l agricultura i molts processos industrials. El desenvolupament i l aplicació de tècniques computacionals per a la col·lecció, emmagatzematge, anàlisi i interpretació de la informació evolutiva, estructural i funcional que les seqüències d aquests genomes contenen aquesta disciplina que he anomenat aquí biologia molecular computacional, però que hom també coneix com a bioinformàtica, biocomputació, informàtica del genoma o, simplement, anàlisi de seqüències és part essencial d aquesta empresa. LA BIOLOGIA IN SILICO Amb aquesta breu i incompleta revisió històrica de la creixent dependència durant la segona meitat del segle XX que la biologia molecular té de la computació, he volgut posar en relleu que la biologia del segle XXI és impensable sense la computació. Com escrivia John Maddox, l antic editor de la re-
vista Nature, l any 1993, a l alba dels projectes genòmics: «... La computació i la biologia molecular, ja interdependents, són a punt d esdevenir inextricablement lligades... Els ordinadors són, cada cop més, un dels mitjans a través dels quals els problemes en biologia molecular poden ser resolts.» Hom pot objectar que aquesta revisió és esbiaixada i que la computació ha estat i és rellevant en altres àmbits de la biologia diferents de la biologia molecular. Això és cert; la utilització de la computació té una llarga tradició en la recerca en biologia i biomedicina. L anàlisi computacional i matemàtica ha contribuït notablement a l avenç científic en camps tan diversos dins les ciències de la vida com l ecologia, la genètica, l antropologia, la fisiologia, la farmacologia... Segons la meva opinió, tanmateix, amb l adveniment de les dades moleculars, la relació entre computació i biologia esdevé radicalment diferent. La peculiar naturalesa d aquestes dades seqüències de símbols les fa particularment apropiades per a l anàlisi computacional. El fet que les seqüències siguin per si mateixes portadores d una enorme quantitat d informació si més no la que deriva del fet que seqüències similars exhibeixen usualment una funció i una història similars, una íntima i singular relació entre sintaxi i semàntica fa aquesta anàlisi excepcionalment rellevant. En biologia molecular, els ordinadors, en conseqüència, no serveixen tant per modelitzar la realitat com per observar-la, analitzar-la i interpretar-la. És a dir, a diferència de la modelització matemàtica tradicional en biologia, on la realitat ha de ser sovint (extraordinàriament) simplificada per construir models simbòlics susceptibles de ser tractats matemàticament i computacionalment, en biologia molecular la realitat és intrínsecament simbòlica i l ordinador és l instrument mitjançant el qual aquesta realitat és observada sense intermediació. És per
104 R. GUIGÓ
això que en biologia molecular i genòmica, la computació no és només una eina per resoldre determinats problemes, sinó que molts problemes no poden ni tan sols ser plantejats si no és en termes computacionals. La biologia in silico emergeix amb la mateixa entitat que la biologia in vivo o que la biologia in vitro. En el sentit restringit en el qual l he entès aquí, la biologia computacional, com a disciplina cientificotecnològica recent i en rapidíssima evolució, manca encara de sistematització. Tanmateix, entre les àrees de recerca pròpies del seu domini en trobem algunes que han esdevingut gairebé clàssiques. Destaquen, entre d altres, l alineament i la similitud entre seqüències, els algoritmes exactes per l alineament òptim de seqüències i l estimació de la significació estadística de la similitud entre seqüències. Els algoritmes aproximats per a la recerca eficient de similituds en les bases de dades. El reconeixement de patrons en seqüències: la representació de senyals sintàctics i els algoritmes de recerca d aquests senyals (search by signal). Els models estadístics de les seqüències i els algoritmes per la segmentació de seqüències en dominis d acord amb aquests models (search by content). La reconstrucció de filogènies moleculars. La predicció de l estructura de les proteïnes i dels àcids nucleics a partir de la seqüència. L anàlisi global de genomes i l anàlisi comparativa de genomes. MIRANT CAP AL FUTUR És difícil preveure quina serà l evolució en el futur de la biologia computacional. Recordem que només vint-i-cinc anys després que, a causa de la complexitat tecnològica, hom considerés gairebé impossible la seqüenciació del DNA, s ha obtingut la seqüencia de prop de cent milions de nucleò-
tids del genoma d un animal multicel·lular. Així d errònia pot arribar a ser la predicció dels esdeveniments científics. La història de la biologia molecular i la informàtica, a més, il·lustra fins a quin punt el progrés d una disciplina científica depèn del desenvolupament d altres disciplines aparentment no relacionades i, en conseqüència, la dificultat de predir-ne el desenvolupament sense considerar el desenvolupament global de la ciència. La història de la biologia molecular i la informàtica il·lustren d altra banda, però, que tot allò que la humanitat imagina acaba, d alguna manera, esdevenint realitat. L obtenció de la seqüència del genoma humà no més tard de l any 2005 serà la culminació d un projecte de magnitud insòlita en biologia. Serà, però, al mateix temps, l inici d una nova manera de fer biologia. Després del genoma humà seguiran els genomes de moltes altres espècies. La comparació dels genomes a través de tot l espectre filogenètic permetrà una reconstrucció més acurada de la història de la vida sobre la Terra. Aquesta és una història complexa i en la qual les recombinacions i les duplicaciones genòmiques han tingut un paper important. L assumpció en què es basen els mètodes de reconstrucció filogenètica actuals, d acord amb la qual similitud de seqüència implica proximitat evolutiva, haurà de ser flexibilitzada, i nous mètodes computacionals hauran de ser desenvolupats en els quals la proximitat entre genomes sigui funció no nomès de la similitud de la seva seqüència primària, sinò de la similitud d elements estructurals de jerarquia superior, com ara l ordre relatiu dels gens o la seva estructura exònica. La comparació dels genomes d espècies properes permetrà definir aquells gens que defineixen una espècie a escala molecular. En particular, la comparació del genoma humà amb el genomes dels primats més pròxims permetrà identificar aquells (poquíssims) gens responsables de l especi-
LA BIOLOGIA COMPUTACIONAL 105
ficitat humana la nostra manera peculiar de viure en el món. A l altre costat de l espectre filogenètic, la comparació dels genomes de soques patògenes de microbis amb el d´aquelles que no ho són permetrà identificar els gens responsables d aquesta patogenicitat, la qual cosa facilitarà, per exemple, el desenvolupament de nous antibiòtics. Amb els anys, allò que ara ha estat un costosíssim projecte internacional que s´ha desenvolupat durant més d una dècada, esdevindrà un procés rutinari que hom durà a terme de manera automàtica en un xip minúscul: dels genomes de les espècies hom passarà a seqüenciar els genomes dels individus. Podrem quantificar, aleshores, l aportació del component genètic en la individualitat i haurem d encarar de manera més desapassionada la vella polèmica ambient versus herència. La seqüenciació del genoma dels individus generarà un volum de dades de magnitud gairebé incommensurable en relació al volum de dades que els projectes genòmics generen avui en dia, i que ja ens sembla difícilment tractable. Avenços en maquinari són, òbviament, imprescindibles per al tractament d aquestes dades, però també són necessaris els avenços en programari: programes molt més eficients que permetin alinear la seqüència de cromosomes sencers, i prou sensibles per detectar de manera inequívoca variacions lleugeríssimes en aquesta seqüència. Les dades moleculars són particularment rellevants quan poden ser correlacionades amb dades funcionals. És per això que bases de dades de funcions a diferents escales, com ara d expressió gènica, de xarxes metabòliques, d interacció entre proteïnes, de patrons de desenvolupament, d efectes fenotípics etc., esdevindran cada cop més rellevants. Noves tecnologies informàtiques hauran de ser desenvolupades per tal d integrar informació d heterogeneïtat crei-
xent i fer possible la inferència de generalitzacions a partir de les instàncies particulars acumulades a les bases de dades. En el cas del DNA, com que la funció a escala molecular és essencialment especificada en la seqüència de nucleòtids, la mineria de les bases de dades de seqüències (per data mining s entén l aplicació de tècniques informàtiques per extreure coneixement de manera més o menys automàtica de grans col·leccions sistemàtiques de dades, com ara bases de dades) pot contribuir a un millor coneixement dels mecanismes moleculars responsables de la seva funcionalitat, essencialment dels mecanismes implicats en els processos de transcripció (inclosa la seva regulació mitjançant la caracterització de les regions promotores dels gens), splicing i traducció. En aquest sentit, el recent descobriment i caracterització d un nou tipus d introns, els U12, que són processats de manera diferent per la maquinària de l splicing, ha estat resultat d una investigació essencialment computacional. D una manera o d una altra, doncs, la computació contribuirà a incrementar el nostre coneixement del funcionament dels organismes i, en particular, de la manera com la funció està codificada en la seqüència. La integració de dades funcionals a diferents escales i dades de seqüència farà possible en algun moment la simulació realista de la cèl·lula en l ordinador. Podrem aleshores investigar en l ordinador com els canvis en la seqüència es propaguen a l organisme; en altres paraules, predir l organisme a partir de la seqüència. La capacitat d anticipar la naturalesa en fa possible la manipulació; en el cas dels genomes, l enginyeria tindrà un component computacional essencial. A causa de l enorme volum i de la complexitat de les dades que genera la biologia, la utilització de l ordinador esdevindrà imprescindible, tal i com ocorre en tantes altres disciplines científiques; però és, sobretot,
106 R. GUIGÓ
perquè la vida té a escala molecular un caràcter essencialment simbòlic, i perquè, en conseqüència, a escala molecular els processos de la vida són computacions en un sentit gairebè paradigmàtic, que biologia i computació romandran en el futur «inextricablement unides». BIBLIOGRAFIA BISHOP, M. J. Ed. (1998). Guide to Human Genome Computing. Nova York: Academic Press. JUDSON, H. F. (1996). The Eighth Day of Creation: Makers of the Revolution in Biology. Nova York: Cold Spring Harbor Laboratory. SHURKIN, J. N. (1996). Engines of the Mind : The Evolution of the Computer from Mainframes to Microprocessors. Nova York ; London: WW Norton & CO. SMITH T. F. (1990). «The History of the Genetic Sequence Databases», Genomics, núm. 6, pàg. 701-707.
RECURSOS D INTERNET «Biocomputing Course Resource List: Course Syllabia». <http://www.techfak.uni-bielefeld.de/bcd/Curric/ syllabi.html> «A list of Bioinformatics Courses». <http://linkage.rockefeller.edu/wli/bioinfocourse.html>
NOTA A LA BIBLIOGRAFIA En aquests moments hi ha un bon nombre de llibres sobre bioinformàtica al mercat i no se n presenta un llistat exhaustiu. N hi ha un de recollit, Guide to Human Genome Computing, que és molt emprat pels biòlegs moleculars que fan servir eines computacionals. Com que l article té un fort component històric, hi ha una història de la biologia molecular (possiblement la més completa) i una història de la computació. La història del seu maridatge encara ha de ser escrita, tot i que l article de Temple F. Smith és una crònica de primera mà del naixement d aquesta relació. Tal com es reflecteix en l article, el desenvolupament de la biologia molecular computacional es produeix (no de manera casual) paral·lelament al desenvolupament d internet. A internet hi ha, literalment, milers de pàgines sobre bioinformàtica. Els dos llocs citats són simplement llistats de pàgines d internet que contenen cursos de bioinformàtica. Alguns d aquests cursos són introduccions excel·lents en aquesta disciplina.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 107-118
DISSENY DE FÀRMACS ENRIQUE PÉREZ-PAYÁ Departament de Bioquímica i Biologia Molecular. Universitat de València. Adreça per a la correspondència: Departament de Bioquímica i Biologia Molecular. Universitat de València. 46100 Burjassot. València. Adreça electrònica: paya@uv.es
INTRODUCCIÓ Durant la primera meitat d aquest segle, la química orgànica i en particular la síntesi orgànica va assolir el desenvolupament metodològic suficient per posar les bases de la química mèdica moderna. Aquesta metodologia, que comprèn la seqüència des del lead compound fins al drug candidate, xifrava entorn de les cinquanta molècules per any i químic el subministrament necessari per abastar el potencial d assaigs biològics, realitzats majoritàriament amb tècniques in vivo. En aquestes condicions, el desenvolupament d un fàrmac requeria la síntesi i assaig de centenars de molècules, un període superior en molts casos a deu anys per arribar al mercat i un cost mitjà de tres-cents cinquanta milions de dòlars (Hogan, 1997). L espectacular avenç experimentat per la bioquímica i per la biologia molecular, cel·lular i estructural a partir dels anys setanta i vuitanta ha conduït, entre altres assoliments, al desenvolupament d un gran
potencial d assaigs d activitat biològica in vitro. Una de les característiques d aquests asssaigs ha estat la possibilitat d automatitzar-los i robotitzar-los donant origen al que es denomina high throughput screening (HTS, cribratge d alt rendiment), amb el qual la capacitat d assaig dels laboratoris moderns en la indústria farmacèutica pot assolir els milers de molècules que alimenten la infraestructura de HTS. És en aquest context on pot inserir-se la creixent aplicació i l enorme impacte experimentats per la química combinatòria en la dècada dels noranta. En realitat, existeix un ample consens en acceptar que el desenvolupament de la indústria farmacèutica, i per tant, el disseny de nous fàrmacs, en els propers anys, haurà d estar basat en quatre pilars: el coneixement derivat de les investigacions genòmiques amb la consegüent aparició de noves dianes terapèutiques, la química combinatòria, l HTS i el disseny racional. Comentaré breument cadascuna d elles, per a continuació revisar amb detall el paper desenvolupat
108 E. PÉREZ-PAYÁ
i el potencial inherent de la química combinatòria en el disseny de fàrmacs. La publicació de la seqüència completa del genoma de llevat el 24 d abril de 1996 marcà l inici de la que s ha denominat l era postgenòmica. Des de llavors s han intentat desenvolupar tècniques que permetin abordar l anàlisi global de les sis mil pautes obertes de lectura (ORF, de l anglès open reading frame). L assignació de funció a un determinat gen en un determinat context biològic, es considera com un dels reptes que cal assolir en els propers anys (Goffeau, 1998). Una de les tècniques més prometedores per definir xarxes de gens entrellaçats és la dels denominats bioxips. És a dir, la microdistribució de DNA en suports que permetin la quantificació dels nivells de mRNA, que a la vegada podria permetre la identificació de gens que, de forma específica, s expressen en determinades condicions. Aquesta tècnica també s està prenent com a base per al desenvolupament de la farmacogenètica, on mitjançant la definició de polimorfismes individualitzats podrà, en un futur, permetre l administració individualitzada de les dosis convenients d un fàrmac en particular. Per altra banda, de la publicació del genoma de llevat, també caldria destacar la identificació dels anomenats gens orfes (aproximadament un 30 % del total), o sigui gens de funció desconeguda. Si ens permetem una extrapolació dels esdeveniments derivats de la seqüenciació del genoma de llevat a la seqüenciació del genoma humà, és fàcil d imaginar l adveniment de tota una sèrie de noves dianes terapèutiques. El nombre de gens orfes, dels quals es poden derivar nous receptors i senyalitzadors cel·lulars per als quals fóra interessant identificar molècules agonistes i/o antagonistes, podria disminuir en un futur proper gràcies a l aparició de les noves tècniques experimentals que es poden englobar sota el nom de química combinatòria. El principi
comú a aquestes tècniques es basa en generar, in vitro o in vivo, col·leccions (biblioteques o també quimioteques) compostes per un gran nombre de molècules (pèptids, oligonucleòtids, molècules orgàniques) o bé per seqüències, o estructures aleatòries, d entre les quals una o diverses poden tenir les propietats biològiques desitjades. En principi, sembla evident que com més diversitat posseeixi la quimioteca, més possibilitats hi haurà de trobar la molècula desitjada. Tanmateix, encara que la multiplicitat teòrica d aquestes quimioteques és astronòmica, existeixen aspectes pràctics que imposen limitacions estrictes sobre el nombre de molècules que es pot manipular de forma experimental. Els sistemes de HTS han estat plenament integrats en el procés de descobriment de nous fàrmacs per les grans companyies farmacèutiques. Tal com s ha comentat, en un passat no gaire llunyà, l assaig de l activitat biològica de noves molècules de síntesi era un procés tediós i en ocasions car, però els recents avenços en la biologia han servit per proveir assaigs en què es poden analitzar múltiples productes al mateix temps. En general, els assaigs de quimioteques per mitjà de HTS impliquen la utilització d assaigs en dissolució, per regla general en format de placa amb múltiples pouets de reacció i amb sistemes automatitzats de càrrega de reactius i anàlisis (Khosla, 1996). Els assaigs biològics per a qualsevol sistema de diversitat molecular cal que siguin altament sensibles, precisos i reproduïbles. Això fa que actualment s estigui dedicant una especial atenció al desenvolupament de nous equips i eines de control per ordinador per tal de satisfer i, en la mesura del possible, millorar els requisits dels sistemes HTS. El disseny racional de fàrmacs assistit per ordinador ha suscitat multitud de controvèrsies en els darrers anys. A la dècada dels vuitanta s augurava un futur brillant
DISSENY DE FÀRMACS 109
per a aquesta tècnica però, com en moltes altres facetes de la ciència, analitzant els resultats obtinguts vint anys després, podem considerar-los, si no decebedors, sí per sota de les expectatives creades. Possiblement, encara avui, podríem fer la reflexió que existeixen paràmetres que cal desenvolupar, i que cal profunditzar en certs aspectes abans de decidir un disseny molecular final. Per exemple, la complexitat, la interdependència i les redundàncies de la fisiologia humana seguiran essent un obstacle a les solucions, una mica simplistes, aportades en alguns casos pel disseny assistit per ordinador, en què a partir de l estructura terciària d una proteïna pretenem dissenyar una molècula que s uneixi al centre actiu i bloquegi l acció fisiològica. En ocasions, el desconeixement dels detalls, en particular els detalls d integració de funcions a escala fisiològica, condueix a composts inefectius o amb efectes secundaris no acceptables. Per tant, el disseny racional seguirà essent una poderosa eina en el disseny de fàrmacs, però s haurà d intentar dotar d una major informació (derivada de la bioquímica i de la fisiologia) els programes informàtics. També caldria destacar que la unió d esforços derivats del disseny racional i de l irracional (química combinatòria), davant d un mateix problema farmacològic, serà una estratègia que s haurà de considerar. QUÍMICA COMBINATÒRIA EN EL DISSENY DE FÀRMACS Definim la química combinatòria com un terme molt ampli que cobreix un gran espectre d aplicacions amb implicacions sintètiques i analítiques. Entre aquestes aplicacions es poden incloure la síntesi en paral·lel de molècules orgàniques, la síntesi de mescles complexes de molècules orgàniques, la síntesi de biblioteques d expressió
en fags i totes les tècniques de maneig en la pràctica experimental d aquestes biblioteques i l anàlisi dels resultats. La química combinatòria s ha utilitzat per generar biblioteques o quimioteques inespecífiques amb l objecte d identificar noves funcionalitats químiques capaces de realitzar una determinada funció biològica (Houghten et al., 1991; Pinilla et al., 1995; Ferrer-Montiel et al., 1998; Silen et al., 1998), o bé per crear col·lecions de molècules més petites, amb una menor diversitat funcional, i en general basades en una molècula o esquelet (scaffold) determinat, dels quals ja es coneix algun tipus d activitat biològica (Gordon et al., 1994; Blondelle et al., 1996; Thompson i Ellman, 1996). L optimització d un producte cap de sèrie (lead compound) fóra un bon exemple d aquest segon cas. Per raons de confidencialitat hi ha poca cosa publicada sobre aquest tema, però per exemple, tant Pfizer com Eli Lilly han comunicat que utilitzant aquesta estratègia han optimitzat un producte cap de sèrie en un període de sis a dotze mesos (Myers, 1997). Pfizer ha aconseguit augmentar en dos ordres de magnitud l activitat antiescleròtica d un cap de sèrie mitjançant la síntesi múltiple i anàlisi d aproximadament mil anàlegs. De manera similar, Lilly ha descrit el descobriment d un nou fàrmac antimigranya després de tan sols sis mesos d iniciar un projecte de desenvolupament basat en la síntesi combinatòria en paral·lel. La química combinatòria va nèixer en el camp dels pèptids a principis d aquesta dècada i va tenir la seva expressió inicial en la construcció de quimioteques de molt elevat nombre de molècules (fins a milions), per tal d avaluar-les en la major gamma possible d assaigs (Hougthen et al., 1991; Lam et al., 1991). La construcció d aquestes quimioteques es va veure afavorida pel domini de la tecnologia de síntesi en fase sòlida en el camp dels pèptids i va donar lloc al desco-
110 E. PÉREZ-PAYÁ
briment de nous caps de sèrie per a diverses aplicacions terapèutiques. Aquests èxits inicials representaren un gran impuls per a la introducció i futura expansió de la metodologia. De fet, la química combinatòria no ha substituït el treball de disseny dels grups que investiguen sobre molècules bioactives. Una característica fonamental d aquestes quimioteques, i que és la clau que permet accelerar la recerca dels compostos actius que s hi troben, és el disseny estructurat de les mescles o combinacions de productes que les formen, el qual ha d assegurar l organització necessària que faci possible la identificació de compostos individuals amb activitats concretes. En principi, les mescles obtingudes s hauran construït de manera que serà sempre possible determinar l estructura dels components més actius i portar a terme les seves síntesis específiques. Un segon format de disseny de quimioteques el constitueix la seva construcció a través d un procés de síntesi per separat de cada component. És el que es coneix com a síntesi múltiple en paral·lel i s ha aplicat fonamentalment a l optimització de caps de sèrie, encara que aquests darrers anys és el format que es va imposant en el sector industrial. Quimioteques de pèptids sintètics En l actualitat existeixen diferents estratègies sintètiques basades en la síntesi de pèptids en fase sòlida (Merrifield, 1963) per preparar conjunts d alta diversitat química en formats que possibliten la seva utilització en assaigs biològics (Blondelle et al., 1995; Pérez-Payá, 1997). Les estratègies de síntesi de quimioteques, prenen com a punt de partida els mètodes de síntesi múltiple de pèptids desenvolupats per Geysen (Geysen et al., 1984) i Houghten (Houghten, 1985). Ambdós mètodes de síntesi múltiple de pèptids es basen en el fet que durant la síntesi en fase sòlida,
tots els rentats, neutralitzacions i etapes de desprotecció són idèntics i per tant no dependents de la seqüència; únicament l etapa en què es realitza l addició de l aminoàcid protegit a la cadena peptídica immobilitzada en creixement, és específica per a una seqüència peptídica donada. Les dues aproximacions difereixen principalment en la naturalesa del suport sòlid on es desenvolupa la síntesi: múltiples segments plàstics en el mètode conegut com pin de Geysen front a múltiples partícules de resina compartimentades en bosses de polipropilè en el mètode anomenat T-bag d Houghten. El producte final és l obtenció d un pèptid diferent per a cada pin en el primer mètode i un pèptid diferent en cada bossa en el mètode d Houghten. Les diferents aproximacions utilitzades fins ara per a l obtenció de quimioteques de pèptids es poden classificar en tres àmplies categories depenent de la forma en què les seqüències peptídiques són sintetitzades o assajades. Dins d una primera categoria es podrien considerar aquells mètodes sintètics en què les mescles de pèptids, després d ésser sintetitzades i tallades del suport sòlid, són assajades com a pèptids lliures en dissolució. En aquesta categoria s inclouen les peptidoteques combinatorials sintètiques (PCS). En una segona categoria, s inclourien els mètodes sintètics en què les mescles de pèptids són sintetitzades i assajades mentre romanen unides al suport sòlid, ja sigui aquest segments plàstics o partícules de resina (Lam et al., 1991; Gallop et al., 1994). La tercera categoria estaria formada pels mètodes basats en biologia molecular, en els quals els pèptids són expressats en la superfície de fags filamentosos (Burritt et al., 1996; Lowman, 1997). El 1991, l equip d investigació de Richard A. Houghten (Torrey Pines Institute for Molecular Studies, San Diego, CA, EUA) va desenvolupar quimioteques de pèptids
DISSENY DE FÀRMACS 111
solubles que, per la seva naturalesa, es poden utilitzar en tot tipus d assaig biològic (Houghten et al., 1991). Això representa un avantatge important sobre altres procediments, atès que en un gran nombre d interaccions moleculars es veuen embolcallades en membranes localitzades en diferents teixits. Les PCS solubles descrites abasten des de tres fins a deu aminoàcids en la seqüència peptídica, i el nombre de pèptids per peptidoteca varia des de milers fins a milers de milions. Les PCS es poden preparar en diferents formats, i poden estar compostes per seqüències de L-aminoàcids, de D-aminoàcids, o per combinacions de L-, D-, i aminoàcids no naturals. A més, la possibilitat de sintetitzar peptidoteques d hexapèptids o àdhuc decapèptids en un format de rastreig posicional ha permès, en ocasions, la identificació de seqüències amb l activitat desitjada, a partir de desenes de milions de seqüències, d un dia per altre (Pinilla et al., 1995).
questa mena de quimioteques. Aquest inconvenient es convertí en un esperó, de tal manera que tan sols en uns anys des de la publicació de la primera síntesi múltiple d una quimioteca de benzodiazepines (Bunin i Ellman, 1992), s han produït avenços suficientment importants com per pensar que la metodologia de síntesi ja no constitueix un obstacle insuperable per al desenvolupament d una quimioteca de molècules orgàniques. A tall d exemple, en un monogràfic de la revista Biorganic and Medicinal Chemistry Letters (vol 8, 1998) es descriu la síntesi de compostos derivats de diazepines, de tiomorfolinones, mimètics de girs-b, derivats d estatines, tetrasacàrids, derivats d àcid iminodiacètic, piperazinil-poliazaciclofans, piperazindiones, hidantoïnes i difenils.
Quimioteques de molècules orgàniques
Des d un punt de vista conceptual, aquesta és la forma més simple de preparar una quimioteca: sintetitzar molts compostos en paral·lel i mantenir cada compost en un vial diferent. Al final de la síntesi, la identitat de cadascun dels compostos és coneguda i pot ser fàcilment confirmada per mètodes analítics. A més, l avaluació de l activitat biològica de la quimioteca podrà aportar informació específica de cadascun dels seus components. Com s ha comentat, els primers mètodes de síntesi múltiple es basaren en la síntesi de pèptids (Geysen et al., 1984; Houghten, 1985), i actualment el mètode de compartimentalització de resina s ha adaptat també a la síntesi de molècules orgàniques de baix pes molecular (Nefzi et al., 1997). Quant a la instrumentalització, en l actualitat existeixen multitud de propostes de diferents cases comercials amb instru-
Malgrat la gran utilitat de les quimioteques de pèptids i el consegüent desenvolupament de pèptids específics com a potencials fàrmacs (Blondelle i Houghten, 1995; Rutter i Santi, 1995; Blondelle et al., 1998), es va veure molt aviat la necessitat d ampliar el camp de la química combinatòria a les molècules orgàniques més convencionals en la química mèdica; és a dir, aquelles de pes molecular mitjà, generalment més estables i susceptibles d oferir una major diversitat química i determinats avantatges a l hora de la seva manipulació. Així i tot, en aquest camp es partia d un desavantatge en comparació amb el cas dels pèptids: el pràctic desconeixement de la metodologia de síntesi en fase sòlida necessària per escometre la construcció d a-
Síntesi de quimioteques i estratègies d assaig Síntesi múltiple en paral·lel
112 E. PÉREZ-PAYÁ
ments capaços de portar a terme síntesi múltiple automàtica, generalment basats en una organització múltiple de vials de reacció i programació i automatització de tasques. Utilitzant la compartimentalització de la fase sòlida on es porta a terme la reacció, bé mitjançant T-bags o bé per separació de vials de reacció, s han estimat que es poden sintetitzar quimioteques de fins a deu mil compostos individuals. La síntesi de quimioteques d ordre superior, o sigui de cents de mils o milions de compostos individuals, no és assequible per aquests procediments. Per tal de superar aquesta limitació, s ha realitzat la preparació de quimioteques utilitzant mètodes fotolitogràfics que han servit per preparar quimioteques de més de cent mil compostos individuals (Jacobs i Fodor, 1994). Com s ha comentat anteriorment, la síntesi de quimioteques de molècules orgàniques de pes molecular mitjà és el format que més acceptació està tenint en la indústria farmacèutica. El treball que es pot considerar pioner en aquest camp és la síntesi en fase sòlida d 1,4-benzodiazepines pel grup liderat per J. Ellman (Bunin i Ellman, 1992). S utilitzaren tres fonts de diversitat química com a punt de partida: 2-aminobenzofenones, aminoàcids i agents alquilants (Figura 1). En el procediment inicial, s acoblà mitjançant síntesi en dissolució una 2-N-Fmoc-aminoben-
zofenona hidroxi-substituïda a un espaiador [4-(hidroximetil)fenoxi] derivat d àcid acètic (espaiador HMP). L aminobenzofenona derivatitzada amb l espaiador HMP s acoblà a la fase sòlida utilitzada per tècniques emprades en la síntesi de pèptids en fase sòlida. A continuació, es desprotegí el Fmoc i es realitzà l acoblament del Fmoc-aminoàcid escollit. La consegüent desprotecció del Fmoc i tractament amb medi àcid generà la benzodiazepina. Finalment, mitjançant una reacció d alquilació s obtenen els corresponents derivats d 1,4-benzodiazepines. Síntesi de quimioteques combinatòries basades en mescles Existeixen dues formes de portar a terme la síntesi d aquestes quimioteques: el primer és el mètode conegut com split and mix (separació i barreja), és a dir, separar la fase sòlida en conjunts, procedir a l etapa sintètica i recombinar la fase sòlida (figura 2); i en segon lloc, el mètode de mescla química (figura 3), en què, prèviament a la reacció química, les funcionalitats químiques que es pretenen utilitzar en una posició de diversitat es barregen en relacions predeterminades en funció de criteris cinètics i termodinàmics, per tal d assegurar l equimolaritat del producte. El procediment de split and mix s utilitzà per a la síntesi de la primera quimioteca de
FIGURA 1. Esquema de síntesi de 1-4-benzodiazepines (Bunin i Ellman, 1992).
DISSENY DE FÀRMACS 113
FIGURA 2. Síntesi pel mètode de split and mix d una quimioteca dimèrica utilitzant tres funcionalitats químiques diferents. Nombre total de compostos que cal sintetizar 32 = 9.
pèptids soluble descrita pel grup d Houghten (Houghten et al., 1991). Els dos primers aminoàcids en cada cadena peptídica foren definits individualment i específica, mentre que els quatre restants consistien en una mescla aproximadament equimolar de dinou dels vint L-aminoàcids naturals. Aquestes peptidoteques es poden representar per les fòrmules O1O2XXXX on O1 i O2
representen AA, AC, AD, etc. fins a YV, YW i YY, per a un total de quatre-centes combinacions (202), i cada posició X representa una mescla equimolar dels dinou aminoàcids (la cisteïna es va ometre de les posicions de mescla). Quatre posicions de mescla resulten en un total de 130.321 possibles combinacions (194). Cadascuna de les quatre-centes mescles de pèptids diferents que
114 E. PÉREZ-PAYÁ
FIGURA 3. Síntesi pel mètode de mescla prèvia d una quimioteca dimèrica utilitzant tres funcionalitats químiques diferents. Nombre total de compostos a sintetizar 32 = 9.
formen la peptidoteca consisteix, per tant, en 130.321 hexàmers individuals que en total representen 52.321.400 pèptids. Quan la quimioteca s assaja en un determinat assaig biològic d interès, les posicions de barreja es defineixen per mitjà d un procés interactiu de selecció dirigit a la identificació de la més activa de les seqüències possibles (figura 4). En els assaigs inicials d activitat d una peptidoteca, cadascuna de les mescles de pèptids s acostumen a assajar a concentracions pròximes a 2,5 mg/ml. Les mescles de pèptids que mostren una activitat significativa són seleccionades i es tornen a assajar utilitzant el mètode de les dilucions consecutives per determinar els valors d IC50 (per
exemple, en estudis antigen-anticòs, la concentració necessària per inhibir en un 50 % la unió de l anticòs a l antigen). Aquest mètode permet la selecció de la mescla, o mescles, de pèptids més activa a l assaig inicial. A continuació es porta a terme un procés iteratiu en el qual la següent posició X de les mescles de pèptids es defineixen individualment amb cadascun dels vint L-aminoàcids naturals. En cada etapa del procés iteratiu, les mescles de pèptids amb una o més posicions definides s assagen per identificar la mescla peptídica més activa. Aquest procés comporta selecció i reducció en el nombre de seqüències peptídiques, mentre que al mateix temps es defineix sintèticament una posició més en cada etapa.
DISSENY DE FÀRMACS 115
FIGURA 4. Rastreig d una quimioteca utilitzant el mètode de format iteratiu. Les fletxes negres indiquen les etapes sintètiques. Les fletxes blanques indiquen les etapes de selecció de les seqüències més actives a l assaig biològic. Ac, acetil; O, aminoàcid definit; X, mescla equimolar dels vint L-aminoàcids.
Amb l objecte de reduir el temps necessari per a la identificació de pèptids actius a partir d una mescla de milions de compostos, es desenvolupà el concepte de format en rastreig posicional. Aquestes quimioteques peptídiques s acostumen a sintetitzar pel procediment de barreja prèvia d aminoàcids activats. Aquestes quimioteques estan compostes per subquimioteques individuals en les quals una posició queda definida mentre que les altres s ocupen amb mescles d aminoàcids. La posició definida es «mou» al llarg de tota la seqüència. D aquesta manera, el nombre de subquimioteques posicionals és igual al nombre de residus en cada pèptid de la quimioteca. Cal destacar que amb cadascuna de les subquimioteques posicionals, s obté informació
sobre una única posició de la seqüència. A partir de la informació global obtinguda amb cadascuna de les posicionals, es defineixen els aminoàcids més importants en cadascuna de les posicions al llarg de la seqüència. Amb aquesta informació, es sintetitzen les molècules individuals que representen totes les possibles combinacions dels aminoàcids més importants en cada posició. La següent etapa, consisteix en l assaig d activitat biològica dels pèptids sintetitzats. La primera PS-PCS (peptideca combinatorial sintètica per rastreig posicional) descrita fou una quimioteca d hexapèptids de L-aminoàcids. Constava de sis subquimioteques posicionals diferents, cadascuna composta per vint mescles peptídiques diferents
116 E. PÉREZ-PAYÁ
FIGURA. 5. Rastreig d una quimioteca en format de rastreig posicional. La fletxa negra indica l etapa sintètica. Les fletxes blanques indiquen el procés de selecció de la posició definida més activa. Ac, acetil; O, aminoàcid definit; X, mescla equimolar dels 20 L-aminoàcids.
amb una posició definida amb cadascun dels vint L-aminoàcids naturals (representada com O, figura 5). Les cinc posicions restants estan compostes per mescles dels dinou aminoàcids (representades amb X; la cisteïna es va ometre). Les sis diferents subquimioteques posicionals difereixen únicament en la localització de la posició definida en la seqüència i es poden representar com O1XXXXX, XO2XXXX, XXO3XXX, XXXO4XX, XXXXO5X, i XXXXXO6 (per a un total de cent vint mescles de pèptids). Cadascuna de les mescles representa aproximadament 2,5 milions (195) de seqüències individuals; per tant, cadascuna de les sis subquimioteques conté al voltant de cinquanta milions d hexàmers (figura 5).
A TALL DE CONCLUSIÓ Els canvis conceptuals són un element constant en tots els camps de la investigació. En ocasions aquests canvis no sols excedeixen en magnitud les consideracions inicials, sinó que poden afectar profundament disciplines científiques relacionades amb aquella on s originà el canvi. Possiblement la química combinatòria sigui un d aquests canvis conceptuals. Les possibilitats obertes per la química combinatòria des d un punt de vista tant conceptual com d aplicació, estan accelerant notables avenços en la disciplina que l originà, la química orgànica sintètica, influint entre altres, sobre disciplines com la química mèdica, la farmacologia, la
DISSENY DE FÀRMACS 117
biologia estructural i fins i tot la catàlisi. L aparició de cada cop més col·leccions de compostos estructuralment relacionats, està originant, a més, la necessitat d adaptació dels sistemes d anàlisi i assaig biològic; per tant, també s hi està implicant l enginyeria tècnica per mitjà d una demanda d equips cada cop més especialitzats a les necessitats pròpies de la química combinatòria. Possiblement es pot definir com a paràmetre d acceptació d un canvi conceptual el moment en què des dels laboratoris d investigació es trasllada a les aules universitàries. Per a la química combinatòria, aquesta acceptació acadèmica es produí el 1996 a la Universitat de Louisville (EUA). Els químics de promocions futures no es sorprendran quan en els seus treballs se ls encomani la síntesi d uns quants cents d anàlegs per a un determinat projecte, els assaigs d activitat dels quals començaran en un parell de setmanes. Si això es compara amb el fet que tan sols fa uns anys, quan s exposava un projecte de química combinatòria a una empresa farmacèutica la resposta era d escepticisme i convenciment que mai s aplicaria a disciplines de química mèdica, el canvi és clar. En l actualitat totes les multinacionals del sector disposen de grups de química combinatòria en els seus departaments d investigació i desenvolupament. A més d això, està sorgint tot un univers d aliances empresarials amb l objecte d assegurar un aprofitament màxim de la potencialitat de la tècnica (Hogan, 1997). Per tant, i en opinió del signant d aquesta comunicació (que no té perquè ésser la més encertada), en un futur que ja es confon amb el present, s identificarà una nova diana farmacològica des del departament de genòmica; es dissenyarà un assaig in vitro i s optimitzarà per a la seva utilització en HTS; es passaran per HTS quimioteques pròpies, començant per les bàsiques (per exemple de pèptids) d alta diversitat que
puguin oferir indicis de les funcionalitats químiques necessàries per tal de portar a terme l acció biològica desitjada. Durant aquest temps inicial d assaigs, s intentarà obtenir el màxim possible d informació estructural sobre la nova diana farmacològica i aquesta informació serà recollida pel departament de disseny racional, que més que dissenyar un candidat a fàrmac final, proposarà esquelets (scaffolds) sobre els quals es dissenyaran quimioteques (de compostos definits) utilitzant la informació obtinguda de les quimioteques bàsiques. Aquests compostos individualitzats de nou abastaran l HTS, de manera que generin resultats de relació estructura-activitat. Però, per sobre de tot, el futur del disseny de fàrmacs segueix estant en la investigació científica. S ha de seguir posant atenció a la investigació bàsica, sense la qual el procés biotecnològic es pot quedar orfe d idees, fet que podria passar en camps com la química combinatòria, que poden representar una revolució conceptual i metodològica amb implicacions múltiples en diverses àrees de coneixement. AGRAÏMENTS Als doctors Antonio Ferrer-Montiel (Universitat Miguel Hernández, Elx) i Àngel Messeguer (Centre d Investigació i Desenvolupament, CSIC, Barcelona) per la lectura crítica del manuscrit inicial. El grup de l autor és finançat per la CICYT (SAF 970067) i la Comunitat Europea (Biotechnology Grant BIO4-CT97-2086). BIBLIOGRAFIA BLONDELLE, S. E.; R. A. HOUGHTEN (1995). «Peptides of the Formula (KFmoc)ZZZ and their Uses». Patent núm. 5.440.016.
118 E. PÉREZ-PAYÁ BLONDELLE, S. E.; R. A. HOUGHTEN; E. PÉREZ-PAYÁ (1998). «Peptide Inhibitors of Calmodulin». Patent núm. 5.840.697. BLONDELLE, S. E.; E. PÉREZ-PAYÁ; C. T. DOOLEY; C. PINILLA; R. A. HOUGHTEN (1995). «Soluble Combinatorial Libraries of Organic, Peptidomimetic and Peptide Diversities». Trends Anal. Chemistry, pàg. 14831492. BLONDELLE, S. E.; E. TAKAHASHI; R. A. HOUGHTEN; E. PÉREZ-PAYÁ (1996). «Rapid Identification of Compounds with Enhanced Antimicrobial Activity by Using Conformationally Defined Combinatorial Libraries». Biochemistry Journal, núm. 313, pàg. 141147. BUNIN, B. A.; J. A. ELLMAN (1992). «A General and Expedient Method for the Solid-phase Synthesis of 1,4benzodiazepine Derivatives». Journal of American Chemistry Society, núm. 114, pàg. 10997-10998. BURRITT, J. B.; C. W. BOND; K. W. DOSS; J. A. JESAITIS (1996). «Filamentous Phage Display of Oligopeptide Libraries». Anal. Biochemistry, núm. 238, pàg. 1-13. FERRER-MONTIEL, A.; J. M. MERINO; S. E. BLONDELLE; E. PÉREZ-PAYÁ; R. A. HOUGHTEN; M. MONTAL (1998). «Selected Peptides Targeted to the NMDA Receptor Channel Protect Neurons from Excitotoxic Death». Nature Biotechnology, núm. 16, pàg. 286-291. GALLOP, M. A.; R. W. BARRET; W. J. DOWER; S. P. A. FODOR; E. M. GORDON (1994). «Applications of Combinatorial Technologies to Drug Discovery. 1. Background and Peptide Combinatorial Libraries». Journal of Medical Chemistry, núm. 37, pàg. 12331251. GEYSEN, H. M.; R. H. MELOEN; S. J. BARTELING (1984). «Use of Peptides Synthesis to Probe Viral Antigens for Epitopes to a Resolution of a Single Amino-acid». Proceedings National Academy of Sciences USA, núm. 81, pàg. 3998-4002. GOFFEAU, A. (1998). «Genomic-scale Analysis Goes Upstream?». Nature Biotechnology, núm. 16, pàg. 907-908. GORDON, E. M.; R. W. BARRETT; W. J. DOWER; S. P. A. FODOR; M. A. GALLOP (1994). «Applications of Combinatorial Technologies to Drug Discovery. 2. Combinatorial Organic Synthesis, Library Screening Strategies, and Future Directions». Journal Medical Chemistry, núm. 371, pàg. 385-401. HOGAN, J. C. (1997). «Combinatorial Chemistry in Drug Discovery». Nature Biotechnology, núm. 15, pàg. 328-34. HOUGHTEN, R. A. (1985). «General Method for the Rapid Solid-phase Synthesis of Large Numbers of Peptides: Specificity of Antigen-antibody Interaction at the Level of Individual Amino-acids». Procee-
dings National Academy of Sciences USA, núm. 82, pàg. 5131-5135. HOUGHTEN, R. A.; C. PINILLA; S. E. BLONDELLE; J. R. APPEL; C. T. DOOLEY; J. H. CUERVO (1991). «Generation and Use of Synthetic Peptide Combinatorial Libraries for Basic Research and Drug Discovery». Nature, núm. 354, pàg. 84-86. JACOBS, J. W.; S. P. A. FODOR (1994). «Combinatorial chemistry: Aplications of Light Directed Chemical Synthesis». Trends Biotechnology, núm. 12, pàg. 19-26. KHOSLA, C. (1996). «Combinatorial Chemistry and Biology: an Opportunity for Engineers». Curr. Op. Biotechnology, núm. 72, pàg. 19-22. LAM, K. S.; S. E. SALMON; E. M. HERSH; V. J. HRUBY; W. M. KAZMIERSKI; R. J. KNAPP (1991). «A New Type of Synthetic Peptide Library for Identifying Ligandbinding Activity». Nature, núm. 354, pàg. 82-86. LOWMAN, H. B. (1997). «Bacteriophage Display and Discovery of Peptide Leads for Drug Development». Annuals Review Biophysics and Biomolecular Structures, núm. 26, pàg. 401-424. MERRIFIELD, R. B. (1963). «Peptide synthesis. I. The Synthesis of a Tetrapeptide». Journal of American Chemistry Society, núm. 85, pàg. 2149-2154. MYERS, P. L. (1997). «Will combinatorial Chemistry Deliver Real Medicines?» Curr. Op. Biotechnology, núm. 8, pàg. 701-707. NEFZI, A; J. M. OSTRESH; R. A. HOUGHTEN (1997). «The Current Status of Heterocyclic Combinatorial Libraries». Chemistry Review, núm. 97, pàg. 449-472. PÉREZ-PAYÁ, E. (1997). «Péptidos en biología y biomedicina». A: ANDREU, D. ; L. RIVAS, [ed.]. Peptidotecas combinatoriales sintéticas. Madrid: Consejo Superior Investigaciones Científicas 9, pàg. 239-254. PINILLA, C.; J. R. APPEL; S. E. BLONDELLE; C. DOOLEY; B. DÖRNER, J. OSTRESH; R. A. HOUGHTEN (1995). «A Review of the Utility of Soluble Peptide Combinatorial Libraries». Biopolymers (Peptide Science), núm. 37, pàg. 221-240. RUTTER, W. J.; D. V. SANTI (1995). «Method of Obtaining a Peptide with Desired Target Property». Patent núm. 5.438.119. SILEN, J. L.; A.T. LU; D. W. SOLAS; M.A. GORE; D. MACLEAN; N. H. SHAH; J. M. COFFIN; N. S. BHINDERWALA; Y. WANG; K. T. TSUTSUI et al. (1998). «Screening for Novel Antimicrobials from Encoded Combinatorial Libraries by Using a Two-dimensional Agar Format». Antimicrobian Agents Chemotherapy, núm. 42, pàg. 1447-1453. THOMPSON, L. A.; J. A. ELLMAN (1996). «Synthesis and Applications of Small Molecule Libraries». Chemical Review, núm 96, pàg. 555-600.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 119-132
MODIFICACIÓ GENÈTICA EN PLANTES, PLANTES TRANSGÈNIQUES I AGRICULTURA JOSEP M. CASACUBERTA Paris VII. Laboratoire de Biologie Cellulaire. INRA, i Departament de Genètica Molecular. IBMB-CSIC. Adreça per a la correspondència: Dept. Genètica Molecular. IBMB-CSIC. Jordi Girona, 18. 08034 Barcelona. Telèfon: 93 400 61 00; Fax: 93 204 59 04; adreça electrònica: jcsgmp@cid.csic.es
INTRODUCCIÓ Fa poc més de deu mil anys l home va decidir de fer-se agricultor; des d aleshores ha modificat profundament les plantes i, al mateix temps, se n ha fet més i més dependent. Les espècies cultivades actuals poc tenen a veure amb els seus parents salvatges, ni quant al rendiment, ni quant a les seves propietats nutricionals. De fet, és sovint molt difícil poder identificar les espècies salvatges de les quals provenen les espècies que cultivem als nostres camps. Tot i que associem sovint la visió d un tomàquet vermell i rodó, o una panotxa plena de grans regulars i grocs a la natura i la vida salvatge, aquests són productes inventats per l home, i no trobarem cap espècie salvatge capaç de donar productes semblants. Aquests canvis morfològics evidents a simple vista ens revelen fins a quin punt les modificacions genètiques que han patit al llarg de la història
han estat importants. Aquest procés, que comença al neolític amb la domesticació de les espècies salvatges, ha estat continuat fins als nostres dies per la selecció constant d agricultors i milloradors vegetals. El coneixement adquirit en els darrers vint-i-cinc anys sobre com aïllar, analitzar i manipular els gens, i l avenç produït en els darrers quinze anys en les tècniques de transformació permeten continuar la feina de millorar les espècies cultivades amb una perspectiva totalment nova. Si fins fa molt poc per intentar millorar un caràcter s havien d encreuar dues plantes diferents i barrejar els seus dos genomes sencers, introduint altres caràcters no desitjats i alterant les característiques de la planta receptora, ara ja és possible transferir només el gen que confereix el caràcter desitjat, de manera que es mantenen invariants les altres característiques de la planta.
120 J. M. CASACUBERTA
Les plantes transgèniques són ja una realitat Des de mitjan anys noranta es poden trobar ja en alguns mercats del món productes agrícoles transgènics. El primer que va comercialitzar-se per a consum va ser el tomàquet de maduració retardada Flavr-SavrTM de l empresa Calgene, que l any 1994 ja es va vendre als Estats Units. Dos anys més tard, a més dels tomàquets de maduració retardada, als Estats Units ja s havia donat el permís per a comercialitzar cotó, blat de moro i patates resistents a insectes, colza amb una qualitat d oli modificada, com també cotó, blat de moro i soja resistents a determinats herbicides. A Europa, la comercialització de plantes modificades genèticament també ha arribat, tot i que amb un cert retard. Si tenim en compte que fins a principis dels anys vuitanta no es van començar a descriure els primers gens de plantes, i que fins a l any 1983 no va ser possible transformar de manera estable una cèl·lula vegetal, el fet que només deu anys després arribessin als mercats els primers productes vegetals transgènics mostra fins a quin punt la transferència de la recerca bàsica a l aplicació industrial ha estat ràpida. El poc temps que ha passat entre els avenços en el coneixement bàsic i el desenvolupament dels productes de consum, i el fet que no hi hagi hagut una correcta informació sobre la manera en què s han obtingut i els riscos potencials que suposen, ha fet que s hagin rebut amb un cert recel, i fins i tot, en alguns sectors minoritaris, amb una actitud clarament hostil. L acceptació per part dels consumidors dels futurs productes transgènics marcarà de manera decisiva el seu desenvolupament i l impacte que les noves tècniques de modificació genètica tindran en l agricultura en els propers anys. És per això que, a més d analitzar els avenços que en els últims anys s han produït en el
camp de la genètica molecular vegetal i d intentar explicar, a grans trets, els reptes de futur, m agradaria situar l actual revolució biotecnològica en el context de l evolució de les tècniques agrícoles i intentar ajudar a entendre el debat que s està produint entorn del paper que ha de tenir la biotecnologia en l alimentació del futur. LA REVOLUCIÓ EN EL SEU CONTEXT HISTÒRIC; QUÈ HI HA DE NOU? La nostra alimentació es basa quasi exclusivament en les plantes. Els productes vegetals constitueixen el 93 % de la dieta humana i el 7 % restant, productes animals, també depèn, encara que indirectament, de les plantes. El nombre d espècies vegetals que utilitzem és, però, molt reduït. Tot i que hi ha proves arqueològiques que indiquen que l home ha utilitzat més de tres mil espècies de plantes per a la seva alimentació al llarg de la història, actualment la humanitat depèn en gran part de només vint-i-nou espècies cultivades i obté el 52 % de les calories de només vuit espècies de cereals (bàsicament blat a Europa, blat de moro a Amèrica, arròs a Àsia i mill a Àfrica). Les plantes, però, o almenys les espècies cultivades, són també, al seu torn, estrictament dependents de l home. Des que l home va inventar l agricultura ha modificat profundament les espècies vegetals per fer-les més útils als seus propòsits, domesticant-les, i fent-les, doncs, cada cop menys aptes per sobreviure en un medi natural. L agricultura neolítica Actualment es pensa que l home no va descobrir l agricultura sota una pressió demogràfica important que fes insuficient l aliment que recol·lectava, i no és clar quines van ser les raons que el van impulsar a fer
MODIFICACIÓ GENÈTICA EN PLANTES, PLANTES TRANSGÈNIQUES I AGRICULTURA 121
un pas tan important. El que sí sembla clar, en canvi, és que l esforç esmerçat en la producció de l aliment necessari per a subsistir era menor en les societats preagrícoles que després d aquest gran invent. En qualsevol cas, la invenció de l agricultura va suposar canvis radicals en aquelles societats. El fet d haver d ocupar-se de les terres va fer sedentari l home i va afavorir el naixement de les primeres ciutats. La feina del camp i la conservació de les collites va portar a l especialització i al repartiment del treball, i va possibilitar el primer repartiment desigual dels béns i l aparició de les primeres diferències socials. La societat tal com la coneixem és, doncs, filla de l agricultura. La domesticació de les diferents espècies cultivades es va donar de manera independent en zones situades en continents diferents, però va afectar, essencialment, els mateixos caràcters. Les espècies salvatges dels diferents cereals, per exemple, es caracteritzaven per tenir llavors petites que es dispersaven bé un cop madures i que germinaven de manera escalonada per augmentar les possibilitats de sobreviure. Aquestes característiques són tot el contrari del que busca un agricultor. La domesticació va tendir doncs en tots els casos a obtenir espècies de floració menys dependent de la durada del dia (fotoperíode), inflorescències més grans i de maduració uniforme, llavors més grans, de difícil dispersió i de germinació uniforme. Com a exemple podríem citar el cas del blat de moro, en el qual la varietat cultivada dóna unes panotxes de més de 20 cm, mentre que les espècies salvatges que es recollectaven fa uns dos mil anys no passaven dels 2 cm. La domesticació, feta per la selecció reiterada dels individus que presentaven unes característiques més interessants, no es va limitar als caràcters morfològics fàcilment detectables sinó que es van arribar a millorar característiques químiques i nutricio-
nals. Un cas paradigmàtic podria ser el de la patata. Les espècies salvatges de patata tenen una composició elevada d alcaloides que les fan, a més d amargues, potencialment tòxiques. La selecció de varietats menys amargues, que tenien disminuïda la ruta de biosíntesi d alcaloides, va possibilitar l obtenció de varietats amb un nivell d alcaloides molt reduït i molt més aptes, doncs, per al consum humà (tot i que segueix essent aconsellable de bullir o fregir les patates abans de menjar-les). La millora genètica clàssica La domesticació de les espècies cultivades es va fer seleccionant la diversitat natural que venia de l encreuament de les diferents varietats salvatges, i la millora d aquestes espècies fins fa poc més d un segle es va seguir fent essencialment de la mateixa manera. Una planta només es capaç d encreuar-se amb un nombre limitat d espècies properes. En alguns casos, dues espècies poden ser prou properes per encreuar-se, però massa allunyades perquè els seus cromosomes es puguin aparellar, per la qual cosa donen híbrids estèrils. Aquests híbrids estèrils pateixen, amb baixa freqüència, fenòmens de duplicació de la dotació cromosòmica, cosa que els permet ser de nou fèrtils. Aquests híbrids de dues espècies estabilitzats per duplicació, anomenats al·loploides, van tenir molta importància en la domesticació, i l han tinguda també en l evolució i en els processos de millora de les espècies cultivades. El fet de posseir dos genomes complets d espècies diferents els dóna una gran plasticitat, tant per la varietat intrínseca dels dos genomes com per la possibilitat de suportar mutacions que dóna la redundància gènica. Per altra banda, l híbrid queda fixat per l aïllament reproductiu que representa el fet de no poder-se encreuar amb cap de les dues espècies que l han generat.
122 J. M. CASACUBERTA
Fins al segle XIX la millora vegetal es va fer d una manera intuïtiva, i no va ser fins als treballs de Darwin, publicats el 1859, i de Mendel, publicats el 1865 però oblidats fins a l any 1900, que es va donar un suport científic a aquestes tècniques. El fet d entendre les lleis de l herència va suposar un canvi radical en la pràctica de la millora genètica. A partir d aquest moment es va introduir de manera conscient variabilitat genètica i es van dissenyar encreuaments entre espècies amb característiques interessants i complementàries. Van caldre, però, ben bé cinquanta anys perquè els programes de recerca iniciats a principis de segle s apliquessin a gran escala, provocant els espectaculars augments de rendiment de l agricultura americana dels anys 1940. En el cas del blat, un canvi importantíssim va ser la introducció de varietats seminanes, que, a més de ser més aptes per al cultiu en condicions d elevada fertilització i irrigació, acumulen proporcionalment més matèria seca en les llavors. En el cas del blat de moro, el salt qualitatiu va venir de l explotació a gran escala del fenomen del vigor híbrid. Des de feia temps se sabia que l autopolinització provoca en el blat de moro una pèrdua de vigor que es pot recuperar per encreuament amb altres varietats. I va ser l explotació comercial d aquest fenomen el que va permetre la creació de la primera empresa de llavors, Pioneer, Inc., als anys vint. Cap a mitjan anys cinquanta, els híbrids F2 provinents de l encreuament de dues línies parentals, resultants al seu torn de la hibridació de quatre línies pures, dominaven ja la producció de blat de moro als Estats Units. Els resultats de la introducció de les noves tècniques de millora vegetal no es van notar només als Estats Units i als països industrialitzats. Una important cooperació internacional, que malauradament ha disminuït força en els darrers temps, va possi-
bilitar la creació de centres d investigació i millora en països en vies de desenvolupament orientats a millorar l agricultura en les zones més desfavorides (García Olmedo, 1998). En aquest sentit, la feina desenvolupada a centres com l International Rice Research Institute (IRRI), a les Filipines, i el Centro Internacional de Mejora del Maíz y el Trigo (CIMMYT), a Mèxic, ha estat especialment important. La introducció de les varietats seminanes mexicanes a l Índia va fer augmentar la producció des d 11 milions de tones mètriques, l any 1966, fins als 36,5 de l any 1981, un augment suficient per a subministrar el 65 % dels carbohidrats necessaris per a una població de cent vuitantasis milions de persones (Borlaug, 1983). L augment de producció va ser igualment important en països com l Argentina, la Xina, el Pakistan, Turquia i Bangladesh. De fet, la producció de blat en països del Tercer Mon es va doblar entre els anys seixanta i els anys vuitanta. El més important és, però, que l increment de la producció assolida no ha necessitat d increments substancials de la superfície conreada. Per exemple, l increment del 242 % de la producció combinada de les disset principals espècies cultivades, assolida als Estats Units entre 1940 i 1980 va necessitar d un increment de la superfície conreada de només el 3 % (Borlaug, 1983). Tot i que el creixement de la població mundial s hagi reduït una mica en els últims anys, les taxes de creixement d entre l 1 i el 2 % anuals portaran a superar els deu mil milions de persones en un termini més aviat breu. La demanda d aliments creixerà, doncs, necessàriament en els propers anys d una forma important. Per altra banda, les disponibilitats d aigua i de terra conreable no podran créixer significativament. Les estimacions indiquen que l any 2025 s estarà utilitzant més del 75 % de l aigua accessible (García Olmedo, 1998), cosa
MODIFICACIÓ GENÈTICA EN PLANTES, PLANTES TRANSGÈNIQUES I AGRICULTURA 123
que dóna una idea del poc marge que queda. La superfície conreable és també un bé escàs. Es calcula que és necessària mitja hectàrea de sòl per a subministrar una dieta variada a una sola persona. Actualment s en disposa de poc més de la meitat, i d aquí a quaranta anys, com a resultat de l augment demogràfic i de l erosió del sòl, només hi haurà 0,14 hectàrees per persona. Així doncs, l única possibilitat de poder alimentar la població mundial en el futur és augmentar de manera substancial la productivitat, millorant les espècies cultivades. La revolució biotecnològica Si la domesticació d espècies vegetals al neolític es va fer aplicant les lleis de la genètica sense saber-ho, i la millora clàssica va permetre de modificar alguns caràcters agronòmics sense conèixer els gens que n eren responsables, l enginyeria genètica de plantes es proposa de millorar les espècies cultivades mitjançant la introducció selectiva dels gens responsables dels caràcters a modificar. Com es veurà més endavant, els objectius de la modificació genètica de plantes són els mateixos que els agricultors i els milloradors s han fixat al llarg de la història: aconseguir rendiments superiors, amb productes de més qualitat i amb un cost de producció el més reduït possible. El procediment és semblant al que s ha seguit des del neolític: aprofitar la diversitat existent en la natura, augmentant-la quan és possible, per identificar els caràcters d interès i introduir-los en les espècies productives. La diferència essencial és que la diversitat útil ja no és només la que és present entre les espècies que s encreuen de manera espontània (agricultura neolítica) o que poden ser encreuades per l home de manera artificial (millora genètica clàssica), sinó la que és present en tot els éssers vius, ja que els gens s introdueixen per transformació en el laboratori.
La segona diferència fonamental és que els programes de millora per transgènesi parteixen del coneixement dels gens responsables dels caràcters que es vol modificar, i són només aquests els que s introdueixen. Això permet predir molt millor els resultats de les modificacions, i evita la transmissió d altres caràcters no desitjats, que per les tècniques de millora clàssica, en les quals es barrejaven dos genomes sencers, s havien d anar eliminant, quan això era possible, per processos de retroencreuament amb l espècie parental d origen. La necessitat de conèixer a fons els gens responsables dels caràcters agronòmics d interès fa que el desenvolupament de les plantes modificades genèticament, recerca de caràcter aplicat, no es pugui deslligar del progrés en la recerca fonamental en camps tan variats com la genètica molecular, la fisiologia o la biologia cel·lular, mostrant un altre cop clarament el perill de voler discriminar, a l hora de finançar, entre les recerques fonamentals i aplicades. La tercera diferència fonamental entre els productes obtinguts de plantes modificades genèticament i aquells que ofereixen les plantes obtingudes per programes de millora clàssica, és el control exhaustiu a què estan sotmesos. Mai en la història no s ha sotmès un producte nou a un control tan complet. De fet, els productes obtinguts per millora genètica clàssica no estan subjectes a controls sanitaris específics, tot i que el seu consum no està, com no ho està res en aquest món, exempt de riscos potencials. Un exemple il·lustratiu podria ser el de la nou del Brasil. La nou del Brasil conté una alta proporció d una proteïna de reserva, una albúmina de tipus 2S, molt rica en sofre. El fet que la majoria de les llavors utilitzades en alimentació animal siguin deficients en sofre fa que sovint s hagin de complementar les dietes amb aminoàcids provinents de la indústria química. Això va portar a l empre-
124 J. M. CASACUBERTA
sa Pioneer Hi-Bred a iniciar un programa per a obtenir soja transgènica amb el gen de l albúmina de la nou del Brasil, que havia estat clonat feia poc. Les anàlisis de la nova soja van demostrar que podia produir reaccions al·lèrgiques en alguns mamífers, a causa, de ben segur, de la presència de l albúmina de tipus 2S. Això va fer que la pròpia empresa, en una decisió totalment raonable, aturés el programa de millora i abandonés el projecte. La nou del Brasil, però, malgrat tenir el mateix poder al·lergogen, es segueix consumint i comercialitzant lliurement. En els propers apartats he intentat de resumir els progressos que han fet possible les noves tècniques de millora basades en la transgènesi, i he intentat de fer un repàs de les plantes transgèniques que ja son presents en els mercats i d aquelles que podrien arribar-hi en un futur no massa llunyà. ELS AVENÇOS CIENTÍFICS QUE FAN POSSIBLE LA REVOLUCIÓ Probablement els orígens de l enginyeria genètica s han de situar entre els anys cinquanta, quan Watson i Crick van resoldre l estructura en doble hèlix del DNA, i els anys seixanta, en què es desxifrà el codi genètic. A partir d aquell moment, i d una manera molt ràpida, es descobrí com aïllar, seqüenciar, lligar i reintroduir en la cèl·lula fragments de DNA, i es pot considerar que a principis dels anys setanta les tècniques del DNA recombinant ja estaven ben establertes. Van caldre, però, deu anys més per aconseguir transformar una cèl·lula vegetal. Les tècniques de transformació La primera tècnica de transformació de plantes, que segueix essent una de les més utilitzades, es basa en la utilització del bac-
teri Agrobacterium tumefaciens, un bacteri del sòl que provoca tumors en les tiges d algunes plantes. Tot i que la malaltia provocada per A. tumefaciens, ja va ser descrita per Teofrast, dos-cents anys abans de Crist, no va ser fins a finals dels anys setanta que es va poder comprovar que el creixement tumoral de les cèl·lules infectades era degut a canvis hormonals provocats per l expressió de gens del bacteri transferits i integrats en el genoma vegetal. De fet, A. tumefaciens és un transformador natural de cèl·lules vegetals. Donat que les úniques seqüències necessàries per a la transferència són les situades als extrems del DNA transferit, o T-DNA, és possible substituir la regió central per qualsevol gen d interès, deixant al bacteri la feina d integrar-los al genoma vegetal. A partir d una cèl·lula transformada es pot, en molts casos, regenerar una planta transgènica, a causa de la totipotència de les cèl·lules vegetals. A. tumefaciens és capaç d infectar un bon nombre d espècies vegetals, però algunes espècies de més interès agronòmic, com ara els cereals, són poc o gens susceptibles a la infecció per aquest bacteri, i no es poden transformar pel mètode descrit. És per això que s han desenvolupat altres mètodes de transformació que no utilitzen un vector biològic. Alguns d aquests mètodes són semblants als de transformació de cèl·lules eucariotes, i es basen en la desestabilització de la membrana de cèl·lules a les quals prèviament s ha digerit la paret cel·lular (protoplastes). Però la regeneració de plantes transgèniques a partir de protoplastes no és sempre possible. Des de l any 1987 es disposa d un altre mètode de transformació que, tot i ser sovint menys controlable, no presenta les limitacions dels anteriorment descrits. El mètode de transformació directa per bombardeig de teixits consisteix en disparar petites partícules d or o tungstè embolcallades del DNA que es vol introduir.
MODIFICACIÓ GENÈTICA EN PLANTES, PLANTES TRANSGÈNIQUES I AGRICULTURA 125
D aquesta manera s obtenen teixits que contenen cèl·lules transformades, cosa que permet, o bé intentar regenerar plantes a partir d aquestes cèl·lules, o bé esperar que algunes d aquestes cèl·lules participin en la línia germinal i donin plantes transformades en la progènie. Gens, regulació i transducció de senyal Des que a començament dels anys vuitanta es van començar a clonar els primers gens de plantes s ha avançat molt en el coneixement dels genomes vegetals. En termes generals, el genoma nuclear vegetal està organitzat de manera similar al dels altres eucariotes, tot i que té algunes particularitats. Potser el més sorprenent, quan es compara amb els genomes dels animals, és la gran diversitat, quant a la grandària, que semblen tenir els genomes vegetals, que pot variar en més d un ordre de magnitud entre espècies evolutivament molt properes. El genoma del blat de moro és, per exemple, sis cops més gran que el de l arròs, essent tots dos cereals. Això es deu essencialment a fenòmens de duplicació i de poliploïdia, que són molt més freqüents en plantes que en animals. Potser a causa d això mateix, també sembla que alguns genomes vegetals, com el del blat de moro, són especialment rics en elements mòbils. Pel que sembla doncs, els genomes de plantes podrien ser més plàstics que els genomes d animals, i tenir menys restriccions quant a la quantitat de seqüències intergèniques que poden suportar i, en general, quant a la grandària total del seu genoma. Per altra banda, tot i que els gens vegetals funcionen essencialment de la mateixa manera que els dels genomes animals, la seva estructura presenta algunes particularitats. Així, per exemple, tot i que les seqüències transcrites també contenen sovint zones intròniques que són eliminades durant el procés de maduració de
l RNA missatger, la grandària que tenen aquests introns és molt més petita en els gens de plantes. Mentre que els introns típics de plantes no superen uns pocs centenars de bases, els introns dels gens animals acostumen a tenir llargàries deu cops més grans. De la mateixa manera, els promotors dels gens vegetals semblen ser molt més compactes que els dels gens animals, que sovint tenen seqüències reguladores localitzades a milers de parells de bases de l inici de transcripció del gen. El significat d aquestes diferències no està gens clar a hores d ara, però aquestes particularitats dels gens vegetals els fan més fàcilment utilitzables a l hora de dissenyar experiments de transgènesi. D altra banda els mecanismes de regulació dels gens nuclears vegetals són també semblants als dels altres gens eucariotes, com ho és la maquinària basal de transcripció, almenys fins on es coneix en aquests moments. De la mateixa manera bona part dels components de les cadenes de transducció de senyals cel·lulars estan conservades. Així per exemple, molts dels senyals que arriben a la cèl·lula vegetal són transduïts per mitjà de receptors amb activitat quinasa i cascades de fosforilació i factors de transcripció sensibles a l acció d aquestes quinases, tal i com succeeix en les cèl·lules animals. Malgrat que tant els mecanismes generals de transducció, com els enzims en què es basen, quinases i fosfatases essencialment, siguin els mateixos entre plantes i animals, hi ha algunes diferències que no deixen de ser sorprenents. Així per exemple, en plantes s han descrit receptors histidinaquinasa, com el de l etilè, que pertany a la família de receptors de dos components bacterians que fins ara no s han descrit en sistemes animals. La gran majoria dels receptors quinasa de plantes pertanyen, però, a la família de les serina/treonina quinases, i no s ha descrit fins al moment cap receptor
126 J. M. CASACUBERTA
amb activitat tirosina quinasa, mentre que aquest tipus de receptors són els majoritaris en sistemes animals. Anàlisi genòmica Els desenvolupaments tècnics espectaculars en els camps de la seqüenciació i l anàlisi de DNA, associats amb la microelectrònica i la robòtica han provocat, com ho han fet en altres camps de la biologia molecular, una veritable revolució en la genètica molecular de plantes. Els projectes de seqüenciació sistemàtica, tant de DNA genòmic com de les seqüències expressades (EST, expressed sequence tags), no es limiten ja a espècies model com Arabidopsis thaliana, sinó que s estan portant a terme en espècies d evident interès agronòmic com l arròs o el blat de moro. El genoma d Arabidopsis thaliana estarà totalment seqüenciat l any 2000, i el d arròs s acabarà poc temps després. Per altra banda, els resultats recents en cartografia comparada han posat de manifest la gran colinearitat que existeix entre els genomes dels cereals, cosa que augmenta considerablement les aplicacions que es poden derivar dels projectes de seqüenciació d espècies model. Els projectes de mutagènesi per inserció a gran escala han posat a disposició dels investigadors col·leccions de mutants o de patrons d expressió per a la recerca de gens i promotors d interès, i aviat es disposarà de microxips amb còpies de milers de seqüències expressades d una planta, que permetrà fer l anàlisi global dels gens expressats en un teixit o un moment donat de la vida de la planta. A mesura que la tecnologia es desenvolupa, la complexitat i el cost de les instal·lacions de recerca augmenta. És per això que molts dels projectes de seqüenciació i mapatge s han estat portant a terme com a col·laboracions entre diferents laboratoris, essent sovint finançats per organismes in-
ternacionals. En aquests darrers anys hem assistit, però, a un augment de l interès de les companyies agroquímiques per la genètica molecular de plantes. Per altra banda, la política de fusions seguida per aquestes empreses ha fet que actualment una part important de la recerca, sobretot la que necessita d instal·lacions i inversions importants, s estigui concentrant en uns pocs laboratoris privats amb una gran capacitat tecnològica i humana. Existeixen ja col·leccions de mutants i de seqüències de caracter privat, als quals la comunitat científica internacional només té accés de manera molt limitada, cosa totalment nova en el camp de la genètica molecular vegetal. La dificultat per trobar finançament públic per a la recerca i l evident interès aplicat de les plantes transgèniques fan suposar que aquesta situació s accentuarà en els propers anys. PRESENT I FUTUR DE LES PLANTES TRANSGÈNIQUES Els problemes més importants a què s enfronta l agricultor a l hora de preservar la collita són les plagues i les malalties en general, i les herbes oportunistes que competeixen amb el cultiu per la terra, el que anomenem males herbes; és lògic, doncs, que les noves tecnologies s hagin aplicat preferentment a aquests temes. Tot i així, les plantes resistents a herbicides o a insectes i plagues no són les úniques presents en el mercat. Actualment existeixen ja tomàquets de maduració retardada i soja amb una composició d olis modificada, i en un futur proper podrem veure plantes productores de plàstics biodegradables o plantes especialitzades en descontaminar zones degradades. A continuació faig un breu repàs d algunes de les plantes transgèniques que existeixen ja al mercat i d algunes de les que és possible que arribin aviat a comercialitzar-se.
MODIFICACIÓ GENÈTICA EN PLANTES, PLANTES TRANSGÈNIQUES I AGRICULTURA 127
Plantes més resistents que les males herbes Fins fa molt poc les males herbes només es podien controlar arrencant-les mecànicament, o bé per tractaments amb productes químics. L eliminació mecànica es pot fer manualment, cosa impracticable en el cas de superfícies importants, o removent la capa superior del sòl mecànicament, pràctica poc recomanable donat que contribueix de forma important a l erosió del sòl i a l eliminació de la fauna que viu a les capes superiors del sòl. Els tractaments amb productes químics s acostumen a utilitzar de forma complementària a l eliminació mecànica. En els darrers anys la indústria agroquímica ha anat desenvolupant herbicides cada cop més eficaços i cada cop menys contaminants per al medi. Entre els més utilitzats actualment trobem el glufosinat (conegut sota el nom comercial de Roundup) i la fosfonitricina (Basta). Aquests herbicides bloquegen certes rutes biosintètiques que són pròpies de les plantes i d alguns microorganismes, cosa que els fa innocus per als altres organismes. Per altra banda, el fet que s inactivin en contacte amb l aigua els fa poc contaminants. El problema principal d aquests herbicides és que, en ser d ampli espectre, no actuen només sobre les males herbes, sinó que també ho fan sobre les espècies cultivades. És per això que aquests herbicides s utilitzen sovint en tractaments de presembra, cosa que fa que, per ser eficaços contra les males herbes que encara no han germinat i que estan físicament protegides per la llavor, s hagin d utilitzar en dosis molt elevades. Les mateixes empreses que comercialitzen el glufosinat o la fosfonitricina, han desenvolupat i tret al mercat plantes que hi són resistents. En el primer cas, la planta transgènica incorpora un gen codificant per a una variant resistent a l herbicida de la
proteïna atacada per aquest, mentre que en el segon cas, el transgèn introduït codifica una proteïna capaç de degradar l herbicida, de manera que fa resistent la planta. Els cultius transgènics es poden tractar amb l herbicida corresponent un cop han començat a germinar, fet que en permet reduir les dosis. Per altra banda, aquesta major eficàcia dels tractaments permet de prescindir de l eliminació mecànica de les herbes abans de plantar. Perquè una estratègia d aquest tipus sigui eficaç cal, però, que les males herbes no esdevinguin resistents a l herbicida. Això es pot donar i, de fet es dóna, tot i que amb molt poca freqüència, per mutació espontània, o bé per transferència del gen de resistència de la planta transgènica a altres plantes prou properes per poder encreuarse amb ella. Aquest perill no és present en el cas del blat de moro, per exemple, ja que no hi ha espècies salvatges que puguin donar híbrids en els llocs on es cultiva el blat de moro, però si que podria ser possible en el cas de la colza. Una alternativa recentment apuntada (Daniell et al., 1998) podria ser la de transformar el genoma cloroplàstic de la planta d interès, enlloc del genoma nuclear com s ha fet fins ara. Donat que el genoma cloroplàstic és d herència materna, no existeix cap risc de disseminació dels transgens a espècies properes per mitjà del pollen. La transformació del genoma cloroplàstic permetria, a més, una millor expressió de gens d orígen procariòtic (com molts dels gens de resistència a herbicides o els gens de les proteïnes Bt, vegeu apartat següent), ja que l ús de codons del genoma cloroplàstic és molt més semblant al dels genomes procariotes que no pas al genoma nuclear vegetal. Plantes autoprotegides Un altre camp on la recerca biotecnològica és particularment activa és en el control de
128 J. M. CASACUBERTA
plagues i insectes. Això és perquè, tot i que es calcula que s inverteixen més de deu bilions de dòlars americans anuals en estratègies per controlar els insectes a tot el món, aquests segueixen causant pèrdues que oscil·len entre el 20 i el 30 % de les collites (Estruch et al, 1997). La majoria dels pesticides utilitzats són d origen químic, amb un fort impacte mediambiental. A més dels productes químics, ja fa més de quaranta anys que els agricultors polvoritzen els seus sembrats amb liofilitzats del bacteri del sòl Bacillus thuringensis com a pesticida. Bacillus thuringensis (Bt), produeix, durant la seva fase d esporulació, cristalls d unes proteïnes conegudes com d-endotoxines que un cop ingerides pels insectes es processen en les seves formes tòxiques actives. El clonatge, l any 1981, del primer gen codificador d una proteïna insecticida de Bt, va permetre començar a dissenyar estratègies basades en l autoprotecció de plantes que produïssin el seu propi insecticida, fent inútil l aspersió incontrolada de pesticides i reduint, per tant, l impacte mediambiental i el treball de l agricultor. Els primers intents, basats en la introducció del gen Bt no van tenir massa èxit, donada la baixa expressió del gen bacterià en les plantes on es va introduir. Va caldre modificar fortament l ús de codons del gen Bt bacterià per fer-lo més semblant al dels seus nous hostes i poder obtenir nivells d expressió elevats capaços de conferir resistència a les plantes. L èxit d aquesta estratègia ha fet que des de l any 1996 es comercialitzin diferents plantes (cotó, blat de moro, patata...) autoprotegides contra un gran nombre d insectes i plagues i que les superfícies conreades amb aquestes noves plantes hagin augmentat espectacularment en aquests darrers tres anys. La possibilitat que els insectes desenvolupin resistències contra les proteïnes insecticides, tal com succeeix habitualment contra els insecticides químics, fa que la recerca es centri actualment en la caracterització
d altres proteïnes insecticides diferents de les d-endotoxines de Bt, que podrien ser expressades conjuntament en la mateixa planta, o en plantes diferents, plantades en cicles successius. Per altra banda, el fet que les plantes estiguin autoprotegides i no sigui necessari fer aspersions d insecticides, permet sembrar una certa quantitat de plantes no transgèniques com a reserva per als insectes, cosa que fa molt més difícil l aparició de resistències. La nova tecnologia híbrida Com hem explicat anteriorment, l obtenció d híbrids i l explotació de l heterosi ha tingut una gran importància en la millora del blat de moro. De fet, avui dia, pràcticament tota la llavor de blat de moro que es planta és híbrida. Aquestes llavors s obtenen per l encreuament de dues varietats, plantades en els camps en línies alternants, una de les quals es castra mecànicament. Això és possible en el cas del blat de moro, que té una flor terminal masculina fàcil d eliminar, però no ho és per a molts altres cultius, en què l eliminació dels órgans masculins seria massa laboriós. Així doncs, l explotació del fenomen de l heterosi quedava limitada a aquells casos on la castració mecànica era possible. La tecnologia de les plantes transgèniques ha permés d obtenir plantes androestèrils que només poden ser pol·linitzades per pol·len provinent d altres plantes. Els híbrids es poden obtenir fàcilment sembrant conjuntament les plantes androestèrils amb les plantes donadores del pol·len. Les plantes transgèniques androestèrils incorporen un gen d una RNAsa amb un promotor que el fa expressar específicament en els òrgans masculins de la flor, degradant-ne tot l RNA missatger. Per altra banda es disposa també de plantes transgèniques que incorporen un gen codificador d un un inhibidor de la RNAsa, que es pot
MODIFICACIÓ GENÈTICA EN PLANTES, PLANTES TRANSGÈNIQUES I AGRICULTURA 129
introduir per encreuament en les plantes transgèniques androestèrils, amb la qual cosa es restaura completament la fertilitat. Aquesta tecnologia, que s ha posat a punt en plantes de colza, que ja s han comercialitzat, s aplicarà, de ben segur, a altres cultius en un futur proper. Millora de la qualitat nutricional i modificacions de productes Com he citat al començament d aquest article, el primer producte vegetal transgènic comercialitzat va ser el tomàquet de maduració retardada. La maduració dels fruits està controlada per l hormona etilè, i la modificació dels nivells d etilè pot produir una acceleració o un retard en la maduració. De fet, l aplicació exògena d etilè ja s utilitza correntment per fer madurar, en processos de postcollita, els fruits que han estat collits verds. La tecnologia transgènica permet de deixar el fruit a l arbre més temps i evitar que la maduració excessiva l estovi. Això s ha aconseguit per dues estratègies diferents. En primer lloc s han obtingut plantes transgèniques que incorporen un gen d un dels enzims de la via de síntesi de l etilè, però en sentit invers. L expressió d aquest RNA missatger antisentit anul·la l expressió del gen endogen fent disminuir els nivells d etilè i bloquejant la maduració. La maduració es completa aplicant etilè en processos de postcollita, com tradicionalment, però amb la diferència que el fruit es pot collir molt més tard de l arbre, cosa que permet de guanyar en gust. L altra aproximació es basa en el bloqueig directe d un dels enzims responsables de l estovament del fruit, una poligaracturonasa, cosa que permet mantenir més temps el fruit en l arbre sense que perdi la fermesa necessària per a l emmagatzematge i distribució posteriors. Els animals, i això inclou també l home, són incapaços de sintetitzar deu dels vint
aminoàcids necessaris per a la síntesi de proteïnes. Aquests aminoàcids anomenats essencials s han d obtenir, doncs, per la dieta. Els aminoàcids que es troben menys presents en els cereals i que són, doncs, més limitants són la lisina i els aminoàcids sofrats, metionina i cisteïna. Als anys seixanta es van identificar mutants de blat de moro amb un alt contingut en lisina, cosa que va permetre, per mitjà de tècniques de millora clàssica, augmentar significativament els nivells de lisina en les línies cultivades d aquest cereal (Tabe i Higgins, 1998). En canvi, aquesta aproximació ha resultat totalment infructuosa en el cas dels aminoàcids sofrats, que s han de seguir proveint com a suplements purs en la dieta de molts animals. S han desenvolupat diferents estratègies per intentar d augmentar els nivells de metionina i de cisteïna en els cereals. La primera aproximació es basa a intentar alterar la via de síntesi de metionina, transformant les plantes amb gens codificadors de variants no reprimibles dels enzims de síntesi. Això ha permès d augmentar sensiblement els nivells d aminoàcids sintetitzats però, malauradament, l increment d aquests aminoàcids essencials en les proteïnes del gra, que són els únics aminoàcids útils, és insignificant. És per això que altres estratègies s han basat en la incorporació en la planta de gens codificadors de proteïnes riques en aminoàcids essencials, ja siguin proteïnes d altres plantes, com el ja comentat cas de l albúmina 2S de la nou del Brasil, o bé proteïnes noves codificades per gens totalment sintètics. Algunes d aquestes plantes estan actualment en curs d avaluació i podrien ser comercialitzades pròximament per a l ús amb animals (Tabe i Higgins, 1998). Factories vegetals Una aplicació totalment diferent de les descrites fins aquí, i que pot tenir gran im-
130 J. M. CASACUBERTA
portància en el futur és la utilització de les plantes com a fàbriques de productes d interès biomèdic o industrial. Les plantes sintetitzen una gran quantitat de productes i els acumulen en les llavors, en els fruits o en altres teixits de reserva com els tubèrculs, que són fàcilment recol·lectables per l home. En el cas de les aplicacions mèdiques, la producció de proteïnes d alt valor afegit, com ara factors de creixement, ha de superar de moment el problema del disseny d un sistema eficaç de purificació. En alguns casos concrets, però, en què els fàrmacs produïts s administraran per via oral, aquesta purificació no és necessària. Aquest és el cas, per exemple, de les vacunes. En treballs preliminars s han pogut immunitzar animals, protegint-los contra malalties causades per virus, simplement alimentant-los amb plantes transgèniques que expressaven antígens d aquests virus (Dalsgaard et al., 1997). En un futur no molt llunyà serà possible, doncs, de produir vacunes en fruits, que es conservaran molt millor que els actuals preparats, cosa que pot ser especialment important per a països amb una infraestructura sanitària deficient. A més de permetre ns canviar la xeringa per una poma a l hora de vacunar-nos, cosa que, si més no, pot fer bastant més agradable la visita al metge, en un futur no molt llunyà les plantes transgèniques ens poden permetre d obtenir un bon nombre productes industrials. Dels milers de productes derivats de la indústria del petroli, els plàstics són uns dels que s han imposat d una manera més general. Utilitzem productes de plàstic per a una gran quantitat d usos domèstics i industrials i, en canvi, no sabem com destruir-los un cop utilitzats. Una alternativa interessant és la producció de plàstics biodegradables en plantes. El polihidroxibutirat (PHB) és, per exemple, un polímer termoplàstic natural produït per diferents bacteris. El clonatge dels enzims responsa-
bles de la seva síntesi ha permès la producció de plantes transgèniques de cotó capaces de sintetitzar PHB. L expressió dels gens de manera específica en les fibres de cotó permet, a més, d obtenir una nova fibra vegetal de propietats diferents que podria tenir moltes aplicacions industrials (John i Keller, 1996). El cotó, de fet, s ha utilitzat des de l antiguitat com una fàbrica de fibres per a usos domèstics i industrials; el que les noves tecnologies ens poden permetre és de diversificar els productes obtinguts a partir del cotó. Els nous productes del cotó podran diferir dels classics en la composició de les fibres, com el cas del PHB, o, fins i tot, en el color. Des de fa uns quants anys s està treballant per obtenir cotó transgènic que doni fibres colorades naturalment. Això es pot aconseguir transformant les plantes de cotó amb gens que codifiquin pigments naturals dirigits per promotors específics de les fibres. Tot i que pugui semblar intranscendent, les fibres de cotó de colors permetrien estalviar els processos químics de tenyit actuals que, a més de ser costosos, són extraordinàriament contaminants. Plantes destoxicants Les plantes són organismes que extreuen i concentren elements i compostos del sòl, de l aigua o de l aire amb una gran eficàcia. La seva habilitat en extreure metalls, per exemple, ha portat a pensar en la seva utilització per regenerar zones contaminades. Experiments preliminars amb plantes transgèniques d Arabidopsis thaliana incorporant un gen bacterià d una reductasa d ions mercuri, demostren que es poden dissenyar plantes que creixin en sòls fortament contaminats i que siguin capaces d extreure del sòl els metalls. Tot i que encara cal resoldre un bon nombre de problemes, s està treballant en plantes que podrien acumular diferents metalls tòxics, com el plom,
MODIFICACIÓ GENÈTICA EN PLANTES, PLANTES TRANSGÈNIQUES I AGRICULTURA 131
el cadmi o el coure i que podrien ser utilitzades com un sistema barat i efectiu de regenerar sòls contaminats. CONCLUSIONS Encara que ens sembli que cada cop hi ha menys gent que treballa el camp a casa nostra, l alimentació humana es segueix basant fonamentalment en productes vegetals. La millora genètica de les espècies cultivades, des de la seva domesticació fa prop de deu mil anys fins als darrers avenços de la millora genètica clàssica als anys seixanta, ha donat increments de producció espectaculars que han permès de nodrir una població mundial en creixement constant. El repte del futur és el de seguir augmentant el rendiment, perquè l augment de la població i, encara més, l augment previsible i desitjable del consum en els països en vies de desenvolupament, fan necessari augmentar la produció sense poder augmentar ni el sòl ni l aigua necessaria per al cultiu, que ja són limitats. Tot i que les tècniques de millora clàssica poden donar encara resultats interessants en alguns camps, la veritable revolució ha de venir de l aplicació de les noves tècniques d enginyeria genètica. És doncs molt segur que en el futur veurem augmentar el nombre de plantes i aliments transgènics en els nostres mercats. En els darrers anys hem vist augmentar espectacularment l interès de les empreses agroquímiques en la recerca en genètica molecular. Les fusions que s han produït entre els grans grups industrials, i el cost cada cop més important de la recerca, poden fer que en un futur no massa llunyà la majoria de la recerca en genètica molecular vegetal, i la pràctica totalitat de les seves aplicacions per a l agricultura, estiguin dominades per tres o quatre grans multinacionals. Això podria tenir conseqüències nega-
tives per als agricultors i limitar les possibilitats que la transgènesi ofereix per a afrontar els reptes de l agricultura del futur. La complexitat de la tecnologia per produir les llavors farà, de ben segur, molt més dependent l agricultor del productor de llavors. Això, que de fet ja es donava, s agreujarà perquè és la mateixa empresa la que comercialitza les llavors i els compostos químics amb què s han de tractar (parelles herbicida-planta resistent), i perquè hi ha cada cop menys empreses diferents distribuïdores de llavors. Per altra banda, si bé és evident que la producció mundial de productes agrícoles ha d augmentar per a poder nodrir una població mundial en constant augment, també ho és que on hauria d augmentar més és precisament en aquells països on el poder adquisitiu per a comprar les llavors cada cop més complexes és més baix. A més a més, els sòls dels països on hi ha més escassesa d aliments són sòls relativament pobres i poc adaptats a tècniques de cultiu intensiu basades en varietats úniques, cosa que posa encara més en dubte la utilitat de les plantes transgèniques actuals per a solucionar alguns dels reptes més importants de l agricultura del futur. La implicació de la recerca pública, i la potenciació d organitzacions internacionals, com el Centro de Investigación para la Mejora del Maiz y el Trigo (CIMMYT) o l International Rice Research Institute (IRRI), que tanta importància van tenir en la millora vegetal als anys seixanta i setenta, tant en els països industrialitzats com en els del Tercer Món, poden, doncs, ser decisius en l aplicació de l enorme potencial de la transgènesi vegetal. Malauradament, el suport públic a la recerca no ha augmentat en els últims anys, i en alguns països com el nostre, on ja era de per si molt escàs, ha, fins i tot, disminuït. La implicació tant dels poders públics com dels industrials locals dependrà, en gran mesura,
132 J. M. CASACUBERTA
de l acceptació pels consumidors dels nous productes transgènics i de l acceptació social de la recerca en aquest camp. Els nous aliments transgènics, que es van rebre amb entusiasme als EUA (els consumidors van estar fins i tot disposats a pagar més pels tomàquets de maduració retardada de l empresa Calgene quan van sortir al mercat), s han rebut amb recel a Europa, i el debat que s ha produït al voltant de les noves tecnologies ha estat sovint massa simplista i reductor. Al nostre país el debat ha estat pràcticament inexistent, cosa que si més no, concorda amb el lloc poc brillant que Espanya ocupa, segons un estudi recent (Hoban, 1997), a la cua dels països europeus pel que fa al coneixement que els seus ciutadans manifesten tenir sobre biotecnologia. Si en general la implicació dels poders públics en la recerca en biotecnologia vegetal pot ser decisiva per definir l impacte de les noves tecnologies, en un país com el nostre, amb poca tradició científica i tecnològica, i amb una inversió pública en recerca de les més baixes d Europa, serà fonamental. Només un esforç important i decidit per potenciar la recerca, així com una major implicació dels poders públics en la informació i divulgació científica, ens podria permetre de no quedar novament despenjats d una revolució que ja està en marxa.
BIBLIOGRAFIA BORLAUG, N. E. (1983). «Contributions of Conventional Plant Breeding to Food Production». Science, núm. 219, pàg. 689-693. BOUCHEZ, D.; H. HÖFTE (1998). «Functional Genomics in Plants». Plant Physiology, núm. 118, pag. 725-732. DALSGAARD, K.; A. UTTENTHAL; T. D. JONES; F. XU; A. MERRYWEATHER; W. D. O. HAMILTON; J. P. M. LANGEVELD; R. S. BOSHUIZEN; S. KAMSTRUP; G. P. LOMOSSOFF; C. PORTA; C. VELA; J. I. CASAL; R. H. MELOEN; P. B. RODGERS (1997). «Plant-derived Vaccine Protects Target Animals Against a Viral Disease». Nature Biotechnology, núm. 15, pàg. 248-252. DANIELL, H.; S. DATTA; S. VARMA; S. GRAY; S. B. LEE (1998). «Containment of Herbicide Resistance Through Genetic Engineering of the Chloroplast Genome». Nature Biotechnology, núm. 16, pàg. 345-348. ESTRUCH, J. J.; N. B. CAROZZI; N. DESAI; N. B. DUCK; G. W. WARREN; M. G. KOZIEL (1997). «Transgenic Plants: an Emerging Approach to Pest Control». Nature Biotechnology, núm. 15, pàg. 137-141. GARCÍA OLMEDO, F. (1998). La tercera revolución verde. Madrid: Debate. HOBAN (1997). «Consumer Acceptance of Biotechnology: An International Perspective». Nature Biotechnology, núm. 15, pàg. 232-234. JOHN, M.; G. KELLER (1996). «Metabolic Pathway Engineering in Cotton: Biosynthesis of Polyhydroxybutyrate in Fiber Cells». Proceedings of the National Accademy of Sciences, USA, núm. 93, pàg. 12768-12773. TABE, L.; T. J. V. HIGGINS (1998). «Engineering Plant Protein Composition for Improved Nutrition». Trends in Plant Science, núm. 3, pàg. 282-285. RASKIN, I. (1996). «Plant Genetic Engineering May Help with Environmental Cleanup». Proceedings of the National Accademy of Sciences, USA, núm. 93, pàg. 3164-3166.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 133-140
MODIFICACIÓ GENÈTICA D ANIMALS LLUÍS MONTOLIU Centro Nacional de Biotecnología. Campus de Cantoblanco. Madrid. Adreça per a la correspondència: Centro Nacional de Biotecnología. Campus de Cantoblanco. 28049 Madrid. Telèfon: 34-91-585 48 44. Fax: 34-91-585 45 06. Adreça electrònica: montoliu@cnb.uam.es
INTRODUCCIÓ El trepidant progrés científic i tècnic en el camp de la biologia molecular ha permès conèixer, en els darrers anys, la seqüència completa de genomes de bastants éssers vius. Els primers organismes en ésser totalment seqüenciats han estat procariotes, normalment associats a alguna malaltia infecciosa humana (en són exemples els genomes de Treponema pallidum, bacteri responsable de la sífilis, i de Mycobacterium tuberculosis, causant de la tuberculosi) però també coneixem la seqüència completa del genoma d un eucariota, el llevat Saccharomyces cerevisiae. És raonable suposar que la mateixa tecnologia permetrà, d aquí a pocs anys, obtenir la seqüència sencera de molts altres organismes. D entre tots ells, per motius ben evidents, destaquen els projectes per a seqüenciar el genoma humà, i en aquesta empresa hi ha diversos equips científics, públics i privats, arreu del món treballant de forma independent.
Bo i reconeixent la indubtable vàlua i font de coneixement que suposarà tenir tota la informació genètica d una cèl·lula humana, podria passar encara molt de temps fins que la societat se n pogués beneficiar directament. El coneixement de la totalitat dels gens d una espècie, en aquest cas la humana, no porta associat el coneixement de la funció que tenen aquests en l organisme. Per comparació amb seqüències de gens d altres organismes, hom pot deduir quina pot ser la funció de gens desconeguts, però la verificació només pot ser obtinguda mitjançant una experimentació que, per molts motius (ètics, científics i tècnics) no pot ser abordada en els humans. És per això que alguns investigadors han orientat els seus esforços i recursos a l obtenció de la seqüència completa de genomes d organismes com el ratolí i la rata, animals de laboratori per excel·lència. De manera similar, altres projectes pretenen obtenir la seqüència del genoma d altres mamífers propers a l activitat humana com el porc, l ovella i la vaca. Es
134 L. MONTOLIU
pretén aprofundir en el coneixement genètic d aquestes espècies properes de mamífers per a deduir-ne funcions dels gens que tenen el seu homòleg en el genoma humà. El ratolí (i la rata també, en estudis farmacològics) ha estat i és l animal model en l estudi de malalties humanes i de gens implicats en el desenvolupament embrionari, en el metabolisme i en el funcionament fisiològic normal de mamífers. A més a més, la mida similar del genoma, tres milions de kilobases, i un nombre similar de gens (uns cent mil de diferents, segons algunes estimacions) fan que el ratolí sigui una espècie igualment atractiva per a recol·lectar més informació de la que ens donarà simplement la seqüenciació del genoma humà. La raó és ben simple. Els investigadors poden manipular genèticament el genoma del ratolí, afegint-hi o traient-ne determinades seqüències i observant posteriorment els canvis fenotípics que aquestes modificacions genètiques provoquen. De l estudi d aquestes variacions lligades a la manipulació genètica del genoma del ratolí es pot deduir la funció o funcions del gen en altres mamífers, com els humans. Les investigacions pioneres en invertebrats, com la mosca de la fruita Drosophila melanogaster, han servit per a mostrar el camí que posteriorment han seguit les investigacions en vertebrats. En la genètica clàssica s observa un fenotip determinat (per exemple: un mutant obtingut de manera espontània o induïda) i es pregunta quin material genètic (quin gen) hi ha al darrere. La genètica inversa permet fer el camí a l inrevés. Partint de la seqüència coneguda d un gen, quina pot ser la seva funció en l organisme? Per a respondre a aquesta pregunta es poden seguir, en el cas dels ratolins, dues metodologies oposades i alhora complementàries. En primer lloc, la sobreexpressió (sobreproducció) d aquest gen en diferents teixits de l organisme pot perme-
tre deduir-ne la seva funció estudiant el fenotip resultant. En segon lloc, la inactivació d aquest gen en la totalitat o en determinades cèl·lules de l organisme igualment pot permetre dilucidar el seu paper en determinats processos que apareguin alterats en el ratolí genèticament modificat. La modificació genètica d animals és una tecnologia relativament recent. L estudi dels grans descobriments que han marcat la història de l embriologia molecular permet identificar tres moments que han esdevingut clau i referència per al desenvolupament posterior dels experiments. En primer lloc, el 1980 Gordon i Ruddle van obtenir el primer mamífer portador d un genoma genèticament modificat: el ratolí. Ben aviat els mateixos autors van encunyar un nou terme per a identificar aquest nou material genètic transferit, el transgèn, i va passar a denominar-se els animals portadors del mateix com a transgènics. En segon lloc, el 1987 Thomas i Capecchi, van descriure un nou mètode d obtenció de ratolins transgènics basat en la utilització de cèl·lules embrionàries totipotents (ES). Aquestes cèl·lules es poden mantenir en cultiu i ésser modificades genèticament, essent possible la selecció de modificacions específiques, mitjançant recombinació homòloga, que inactiven un determinat gen. Les cèl·lules ES poden transferir-se a un embrió on colonitzaran i contribuiran a tots els llinatges cel·lulars, incloent la línia germinal. Per tant, l ús d aquestes cèl·lules ES fa possible obtenir animals, amb els encreuaments adequats en generacions posteriors, derivats d aquelles i, per tant, portadors de la mutació específica. Són els ratolins mutants per inactivació gènica, coneguts per la denominació anglesa de ratolins knock-out o KO. Finalment la tercera de les tecnologies és molt més recent i inesperada: el clonatge de mamífers. El 1997 l equip dirigit per Ian Wilmut va descriure per primera vegada l obtenció d ovelles clò-
MODIFICACIÓ GENÈTICA D'ANIMALS 135
niques obtingudes per transferència nuclear a partir de nuclis de cèl·lules adultes diferenciades. Aquesta nova tecnologia permetrà millorar l eficiència dels experiments amb animals transgènics de granja i pot fer extensiva a altres mamífers la tecnologia d inactivació gènica (actualment limitada encara al ratolí, en no haver-se pogut aïllar cèl·lules ES d altres espècies). Aquest capítol pretén explicar de manera senzilla aquestes tres tecnologies, com també les seves aplicacions més importants, actuals i futures, en biologia i biomedicina. ANIMALS TRANSGÈNICS MITJANÇANT L ADDICIÓ DE NOU MATERIAL GENÈTIC La figura 1 mostra un esquema del procés que es segueix per a obtenir animals transgènics per microinjecció de nou material genètic al pronucli d oòcits fecundats. La fecundació dels oòcits produeix, de forma transitòria, dues estructures visibles al microscopi anomenades pronuclis, que contenen el material genètic dels gàmetes masculí i femení. En poques hores aquests pronuclis es fusionaran i esdevindran el primer nucli de l embrió, del zigot. Durant el temps de visualització dels pronuclis és possible microinjectar solucions amb material genètic, construccions gèniques en forma de DNA. Aquest nou material genètic pot integrar-se en el genoma de l embrió donant lloc a un animal transgènic. D un 10 a un 30 % dels embrions microinjectats i transferits porta el desenvolupament a terme i dóna lloc a un nadó. D un 10 a un 30 % dels nadons poden haver integrat el transgèn i ser finalment identificats com a animals transgènics. Les eficiències són més baixes en altres mamífers de granja. Els ratolins transgènics han estat profusament emprats per a generar models ani-
FIGURA 1. Generació de ratolins transgènics per microinjecció. 1) Encreuament de mascles i femelles fèrtils. 2) Obtenció d oòcits (òvuls) fecundats. 3) Microinjecció de nou material genètic dins del pronucli dels oòcits fecundats. 4) Transferència dels embrions microinjectats supervivents a una femella receptora per a la seva gestació. 5) Identificació dels individus transgènics entre els nadons (en el exemple es mostra un individu transgènic pigmentat).
mals de malalties humanes. També s han obtingut animals que permeten estudiar de manera directa l efecte de fàrmacs específics en determinats teixits o òrgans del cos. La sobreexpressió ectòpica de determinats gens ha permès deduir-ne la funció original en el teixit on normalment s expressa. L ús de seqüències que codifiquen toxines ha servit igualment per a destruir selectivament llinatges cel·lulars amb un patró de desenvolupament comú i estudiar-ne els efectes en els animals resultants. En animals de granja les aplicacions de la transgènia tradicional han estat fonamentalment orientades a la biotecnologia, a la utilització dels animals com a bioreactors. S ha emprat la glàndula mamària per a produir proteïnes recombinants d interès terapèutic (factors de coagulació, altres factors sèrics, pèptids bioactius, etc.) en la
136 L. MONTOLIU
llet dels animals transgènics, aprofitant seqüències de gens d expressió específica en aquest òrgan. Darrerament s estan generant models d animals transgènics (principalment amb el porc) per a xenotrasplantaments, és a dir, com a possible solució transitòria al dèficit actual d òrgans necessaris per a trasplantaments en humans. En aquest sentit, s intenta inactivar el rebuig fulminant que normalment es produeix en posar en contacte cèl·lules de diferents espècies mitjançant la inactivació de la via del complement o per altres vies immunogenètiques. La generació d animals transgènics, però, tot i ésser molt avantatjosa des del punt de vista social i científic, no està exempta de problemes. Els investigadors encara no poden controlar el lloc que tria el transgèn per a integrar-se en el genoma de l hoste. Aquest fet pot produir una mutació per inactivació de seqüències importants per a l organisme. S estima que entre un 7 i un 10 % dels esdeveniments d integració poden causar una mutació incompatible amb la vida. A més a més pot produir-se una interacció no desitjada de les seqüències reguladores del transgèn amb les seqüències veïnes, que pot resultar en la inactivació del transgèn o en la seva activació inesperada ectòpicament. Igualment, el transgèn pot caure en regions del genoma que normalment no són actives transcripcionalment i esdevenir inactivat. Per a resoldre alguns d aquests problemes s han utilitzat en els darrers anys amb molt d èxit nous vectors de clonatge de seqüències de DNA que permeten transferir grans segments genòmics, amb l esperança d incloure la majoria dels elements reguladors d un gen determinat que aquest gen necessitarà en un nou entorn cromosòmic, on sigui que s integri, per a reconstituir correctament el patró d expressió característic del gen. Aquests vectors s anomenen cro-
mosomes artificials i n existeixen de diferents orígens: de llevats, de bacteris i de bacteriòfags. L evolució natural i el desenvolupament científic d aquests vectors permetrà properament obtenir autèntics cromosomes artificials de mamífers que podran ser mantinguts de manera episomal en el nucli de les cèl·lules de l hoste, sense necessitar la integració dels mateixos en el genoma de l organisme receptor. Un dels refinament tècnics més recents de la metodologia de generació d animals transgènics ha estat la introducció de sistemes de regulació temporal de l expressió dels transgens. Aquests sistemes s anomenen induïbles donat que permeten l activació del transgèn en teixits i en moments determinats mitjançant diferents efectors. La majoria de sistemes induïbles fan servir elements heteròlegs, d altres espècies, per a minimitzar els efectes secundaris que pugui causar l activació d altres gens endògens que responguin a l efector. Hi ha sistemes basats en l ús d una proteïna bacteriana, el repressor de l operó que controla la resistència a l antibiòtic tetraciclina, convenientment modificada per a permetre l activació transcripcional de transgens en presència d anàlegs d aquest antibiòtic. Altres sistemes utilitzen una hormona (i el seu receptor específic), present només en insectes (ecdisona), per a transferir els seus mecanismes naturals de control de l expressió gènica als mamífers transgènics. Emprant sistemes induïbles s han aconseguit generar, per exemple, models transgènics de malalties neurodegeneratives. ANIMALS MUTANTS PER INACTIVACIÓ GÈNICA En la figura 2 es mostra un esquema gràfic que il·lustra la generació de ratolins mutants mitjançant la inactivació gènica
MODIFICACIÓ GENÈTICA D'ANIMALS 137
DNA
FIGURA 2. Generació de ratolins mutants. 1) Obtenció d embrions (blastocists) a partir d un encreuament entre individus d una soca amb un nivell de pigmentació moderat. 2) Obtenció de cèl·lules embrionals totipotents (ES) a partir de la massa interna cel·lular existent dins el blastocist. 3) Transferència de nou material genètic (normalment construccions gèniques que pretenen inactivar gens endògens mitjançant recombinació homòloga) a les cèl·lules ES mantingudes en cultiu. 4) Selecció clonal del cultiu de cèl·lules ES per a obtenir només aquelles que han incorporat el material genètic desitjat i han modificat el gen que es pretén inactivar de forma adequada. 5) Obtenció de nous embrions (blastocists) d un encreuament de ratolins amb un grau de pigmentació elevat. 6) Microinjecció d aquestes cèl·lules ES genèticament modificades en la cavitat central (blastocel) dels nous blastocists. 7) Transferència d aquests blastocists reconstituïts a la matriu de femelles receptores per a la seva gestació. 8) Identificació d individus quimèrics (portadors de taques amb diferents graus de pigmentació en el cos) en la ventrada resultant. 9) Encreuament dels individus quimèrics amb individus salvatges. 10) Obtenció d individus mutants enterament generats a partir de les cèl·lules ES modificades genèticament. El grau de pigmentació serveix per a identificar l origen genètic dels individus.
per recombinació homòloga en cèl·lules ES. Aquesta tecnologia es limita, de moment, als ratolins donat que és l única espècie que ha permès aïllar, mantenir i manipular genèticament cèl·lules ES sense que aquestes perdin la seva capacitat totipotent de contribuir a la línia germinal i així poder transmetre la mutació a la descendència. La rellevància fonamental de la tècnica rau en la capacitat que tenen aquestes cèl·lules ES d incorporar mutacions específiques en gens determinats per recombinació homòloga, procés que permet inactivar de manera precisa gens a voluntat de l investigador. Amb aquestes premisses no és estrany que les aplicacions fonamentals dels ratolins mutants hagin estat dins del camp de la biologia general, de la biologia del desenvolupament i de la biomedicina. L obtenció cada vegada més assequible de noves seqüències gèniques amb funcions desconegudes ha provocat un allau de ratolins mutants portadors d aquests gens inactivats. Sovint aquests gens denoten la seva funció important durant l embriogènesi i els animals no arriben a néixer. Malgrat tot, l estudi detallat del fenotip del mutant permet identificar o deduir moltes de les funcions del gen en qüestió. Altres vegades, malauradament, la mutació del gen no resulta en cap fenotip evident i cal sotmetre els ratolins mutants a molts experiments de tota mena per a intentar trobar algun petit canvi o deficiència. Aquest acostuma a ser el cas quan s inactiven gens que pertanyen a famílies gèniques que poden compensar o cobrir la manca d algun dels seus membres. En biomedicina els ratolins mutants han generat moltíssims models animals que, en molts casos, reprodueixen fidelment la simptomatologia i la malaltia dels defectes congènits descrits en humans. Quan aquestes anomalies genètiques en
138 L. MONTOLIU
humans tenen un origen monogènic és relativament senzill obtenir el ratolí que sigui portador d una mutació en el gen homòleg corresponent. Així aquest ratolí es converteix en un animal model molt valuós per a l estudi dels mecanismes causants de la patologia i pot permetre el desenvolupament d estratègies terapèutiques que serveixin per a corregir total o parcialment la mutació. En aquest grup d animals trobem, per exemple, models transgènics per a la diabetis, la fibrosi quística, diferents immunodeficiències, hemofílies, diferents tipus de càncer i malalties com l Alzheimer i el Parkinson. Darrerament els investigadors estan obtenint ratolins mutants que porten el gen inactivat només en determinats òrgans o llinatges cel·lulars del seu cos aprofitant un sistema procariota anomenat cre/lox, format per una seqüència de DNA (lox) de reconeixement específic per una recombinasa (cre) que talla i separa tot allò que troba entre dues seqüències lox consecutives en el genoma. Amb aquest mètode és possible estudiar l efecte de la mutació en gens de funció pleiotròpica que normalment s associen a letalitats embrionàries quan s inactiven a totes les cèl·lules del cos. També cal esmentar l ús de la tècnica de generació de ratolins mutants per a obtenir patrons d expressió en el desenvolupament embrionari mitjançant la inserció de gens marcadors (visibles fàcilment de manera directa, com la proteïna verda fluorescent (GFP, green fluorescent protein) o a través de reaccions enzimàtiques, com la beta-galactosidasa o LacZ) que inactiven i es posen sota el control de gens d expressió desconeguda. Si la inserció del gen marcador es fa a l atzar, hom pot recopilar col·leccions de ratolins mutants amb gens prèviament no identificats que poden resultar objecte posterior d estudi en observar els seus patrons d expressió característics.
ANIMALS CLÒNICS El clonatge d animals no és pròpiament una tècnica de manipulació genètica d animals. No obstant això, el desenvolupament recent d estratègies reproduïbles de clonatge d animals ha permès establir ràpidament interconnexions entre aquestes tecnologies i les anteriorment descrites, fet que ha suposat el clonatge d animals modificats genèticament. L experiment de clonatge de l ovella Dolly (descrit esquemàticament en la figura 3) ha suposat una veritable revolució científica. Per a situar la rellevància real de l experiment val la pena només esmentar que representa la confirmació final en mamífers de teories proposades l any 1938 per l embriòleg alemany Hans Spemann, que proposà el clonatge d un individu adult a partir de cèl·lules diferenciades com a prova de l existència de programes d expressió gènica específics de cada tipus cel·lular, però que mantenen la integritat del genoma de totes les cèl·lules de l organisme independentpent del tipus cel·lular. Estudis anteriors als resultats publicats per Wilmut i col·laboradors el 1997 van resultar infructuosos en diferents animals de granja i de laboratori. L èxit d aquests investigadors cal situar-lo en els seus experiments publicats l any anterior on demostraren el clonatge d ovelles adultes a partir de nuclis de cèl·lules fetals en cultiu. Part de l èxit sembla provenir d escollir citoplasmes receptors i nuclis donants compatibles, és a dir en determinades fases del cicle cel·lular, que permetin garantir el desenvolupament de l embrió reconstituït. Els autors proposen l ús de nuclis de cèl·lules en la fase G1 del cicle cel·lular o, millor encara, quiescents (en fase G0). La quiescència (i també la diferenciació) manté les cèl·lules fora del cicle cel·lular i amb un programa d expressió determinat amb un nombre limitat (i baix, en el cas de cèl·lules quiescents) de gens actius. Això sembla ser un punt fona-
MODIFICACIÓ GENÈTICA D'ANIMALS 139
FIGURA 3. Obtenció d animals clònics. Esquema explicatiu de la generació de l ovella Dolly. 1) Extracció d oòcits d ovella no fecundats (aturats en metafase II de la meiosi). 2) Enucleació dels oòcits. 3) Preparació d un cultiu primari a partir de cèl·lules de glàndula mamària d una altra ovella adulta. Inducció de la quiescència en aquestes cèl·lules en cultiu (per a potenciar la sortida del cicle cel·lular). 4) Transferència d un nucli d aquestes cèl·lules (carioplast) a l oòcit enucleat prèviament. 5) Electrofusió del carioplast amb la resta del citoplasma de l oòcit receptor. 6) Transferència dels embrions reconstituïts a una nova femella receptora per a la seva gestació. 7) Naixement de Dolly. La pigmentació serveix per a identificar l origen genètic dels individus.
mental per a permetre la reprogramació del nucli en un entorn embrionari i el manteniment del patró de desenvolupament normal fins a obtenir un ésser viu adult gairebé idèntic genèticament però cronològicament desfasat amb el donant. Tecnologies similars a la utilitzada per a l obtenció de Dolly han estat aplicades per a obtenir ovelles clòniques a partir de nuclis de fibroblasts fetals modificats genèticament i fins i tot s ha estès la tecnologia a altres espècies de mamífers com la vaca i el ratolí. Des d un punt de vista científic, les apli-
cacions dels animals clònics poden anar encaminades a realitzar estudis d estabilitat i integritat del genoma, efecte de l edat, susceptibilitat de desenvolupar tumors, efecte de l acumulació de mutacions somàtiques en el desenvolupament embrionari i totipotencia diferencial de nuclis de diversos llinatges cellulars, entre d altres. Moltes d aquestes preguntes podran ser resoltes fent servir els ratolins com a model animal experimental. Des d un punt de vista biomèdic el clonatge pot suposar un avenç considerable com a font alternativa de teixits histocompatibles i susceptibles d ésser utilitzats com a teràpia substitutiva de teixits o òrgans danyats. En aquest sentit són molt prometedors els primers resultats obtinguts amb cèl·lules embrionàries humanes pluripotents que poden ser diferenciades, en cultiu, en diferents llinatges cel·lulars. La combinació d aquests darrers resultats amb tècniques de clonatge mitjançant transferència nuclear, podria fer factible el desenvolupament de bancs de teixits humans personalitzats llestos per a ser utilitzats en trasplantaments i implantacions. Des d un punt de vista biotecnològic els animals clònics tenen una aplicació immediata com és la substitució progressiva de les tècniques tradicionals de transgènia en els animals de granja per obtenir grups més uniformes d individus modificats genèticament de manera més ràpida i eficient. Igualment és probable que permeti la preservació d individus excepcionals des d un punt de vista productiu. En qualsevol cas, l aplicació biotecnològica més esperada i amb més perspectives de futur és la possibilitat que ofereix aquesta tècnica per a incorporar mutacions específiques en gens determinats que comportin la seva inactivació. Cal recordar que la tecnologia de generació d animals mutants ha estat restringida, fins a moment actual, al ratolí. Amb les tècniques de clonatge hom podria inactivar un gen per recombinació homòloga en cèl·lules en cultiu per a, poste-
140 L. MONTOLIU
riorment, fer servir els nuclis d aquestes cèl·lules per a reconstituir embrions i obtenir individus adults portadors del gen mutant. En el cas de la vaca s han proposat dues aplicacions immediates que tindrien molt de ressò social i econòmic. Una primera possibilitat fóra la inactivació de gens que codifiquen determinades proteïnes de la llet de funció poc important (com la beta-lactoglobulina) que comprometen la digestibilitat del producte per al consum humà, especialment en infants. En segon lloc es podria contemplar la inactivació, en el genoma de la vaca, del gen que codifica per a la proteïna PrP, implicada en la patogènia, transmissió i infectabilitat de les encefalopaties espongiformes com la BSE (bovine spongiform encephalopathy) i les seves temudes variants en altres espècies, com la síndrome de Creutzfeldt-Jakob en humans. Experiments preliminars realitzats en ratolins suggereixen la viabilitat d animals que tinguin el gen PrP inactivat. CONCLUSIONS La generació d animals transgènics i clònics ha revolucionat la biologia, la biomedicina i la biotecnologia. El nostre nivell de coneixements sobre multitud de processos genètics s ha incrementat de manera considerable gràcies a la utilització d animals modificats genèticament. L obtenció de models animals de malalties humanes mitjançant tècniques de transgènia ha permès avançar en la comprensió de les malalties, i de llur prevenció i tractament. L aplicació dels animals transgènics en biotecnologia representa la gran esperança per a la producció en massa de proteïnes recombinants d elevat interès terapèutic. En síntesi, són moltes les aplicacions actuals i futures d aquestes tecnologies capdavanteres basades en la modificació genètica d animals, que haurien d ésser suficients per a poder
convèncer l opinió pública, els investigadors i els governants de la seva utilitat científica i beneficiosa per a la societat. BIBLIOGRAFIA BEDELL, M. A.; N. A. JENKINS; N. G. COPELAND (1997). «Mouse Models of Human Disease. Part I: Techniques and Resources for Genetic Analysis in Mice». Genes and Development, núm. 11, pàg. 1-10. BEDELL, M. A.; D. A. LARGAESPADA; N. A. JENKINS; N. G. COPELAND (1997). «Mouse Models of Human Disease. Part II: Recent Progress and Future Directions». Genes and Development, núm. 11, pàg. 11-43. CAPECCHI, M. R. (1989). «The New Mouse Genetics: Altering the Genome by Gene Targeting». Trends in Genetics, núm. 5, pàg. 70-76. EVANS, G. A. (1989). «Dissecting Mouse Development with Toxigenics». Genes and Development, núm. 3, pàg. 259-263. HUXLEY, C. (1997). «Mammalian Artificial Chromosomes and Chromosome Transgenics». Trends in Genetics, núm. 13, 345-347. JAENISCH, R. (1988). «Transgenic Animals». Science, núm. 240, pàg. 1468-1474. KISTNER, A.; M. GOSSEN; F. ZIMMERMAN; J. JERECIC; C. ULLMER; H. LÜBBERT; H. BUJARD (1996). «Doxycyclinemediated Quantitative and Tissue-specific Control of Gene Expression in Transgenic Mice». Proceedings of the National Academy of Sciences. USA, núm. 93, pàg. 10933-10938. KUHN, R.; F. SCHWENK; M. AGUET; K. RAJEWSKY (1995). «Inducible Gen Targeting in Mice». Science, núm. 269, pàg. 1427-1429. PAIGEN, K. (1995). «A Miracle Enough: the Power of Mice». Nature Medicine, núm. 1, pàg. 215-220. PALMITER, R. D.; R. L. BRINSTER (1986). «Germ line transformation of Mice». Annual Review Genetics, núm. 20, pàg. 465-499. PETERSON, K. R.; C. H. CLEGG; Q. LI; G. STAMATOYANNOPOULOS (1997). «Production of Transgenic Mice with Yeast Artificial Chromosomes». Trends in Genetics, núm. 13, pàg. 61-66. PINKERT, C. A. (1997). «The History and Theory of Transgenic Animals». Lab. Animal, setembre, pàg. 29-34. WILMUT, I.; A. E. SCHNIEKE; J. MCWHIR; A. J. KIND; K. H. S. CAMPBELL (1997). «Viable Offspring Derived from Fetal and Adult Mammalian Cells». Nature, núm. 385, pàg. 810-813. WAKAYAMA, T.; A. C. F. PERRY; M. ZUCCOTTI; K. R. JOHNSON; R. YANAGIMACHI (1998). «Full Term Development of Mice from Enucleated Oocytes Injected with Cumulus Cell Nuclei». Nature, núm. 394, pàg. 369-372.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 141-149
LA TERÀPIA GÈNICA MIGUEL CHILLÓN1 I ASSUMPCIÓ BOSCH2 Programme Thérapie Génique, Généthon II. Evry. França, i Departament de Bioquímica i Biologia Molecular. Facultat de Farmàcia. Universitat de Barcelona. 2 Laboratoire de Rétrovirus et Tranfert Génétique. Institut Pasteur. Paris. França, i Departament de Genètica Molecular. Institut de Recerca Oncològica. Hospital Duran i Reynalds. 1
Adreça per a la correspondència: Miguel Chillón. Departament de Bioquímica i Biologia Molecular. Facultat de Farmàcia, Universitat Autònoma de Barcelona. 08193 Bellatera, Barcelona. Adreça electrònica: mchillon@genethon.fr
CONCEPTES BÀSICS Podríem definir la teràpia gènica com la introducció de material genètic dins les cèl·lules d un organisme amb finalitat terapèutica. El material genètic introduït conté una còpia del gen d interès i els elements que controlen la seva expressió. La transferència de gens pot ser realitzada ex vivo o in vivo i comporta les següents etapes (figura 1): a) la unió del DNA a la cèl·lula, b) la seva internalització, c) el seu transportament a l interior del nucli cel·lular, i d) la transcripció i expressió de la proteïna. En la teràpia gènica in vivo el material genètic és administrat directament al pacient. Al-
ternativament, en la transferència ex vivo, el DNA és introduït, en el laboratori, dins les cèl·lules prèviament aïllades del pacient, que més tard són reinjectades a l organisme. En cada cas, l estratègia de teràpia gènica més adequada vindrà determinada pel problema que s ha de tractar. L efecte terapèutic es pot aconseguir mitjançant: La introducció d una còpia normal d un gen defectiu per restaurar la producció d una proteïna no funcional o no produïda. S utilitza principalment per tractar malalties hereditàries monogèniques com la fibrosi quística, les mucopolisacarido-
142 M. CHILLÓN I A. BOSCH
sis o la deficiència d adenosina deaminasa, entre d altres. L expressió del transgèn (gen d interés) que pot actuar estimulant o inhibint altres proteïnes de l organisme. Per exemple, la introducció de citoquines que modulen la producció d altres proteïnes del sistema immunitari contra els propis tumors; l ús d antioncogens (com p53) que inhibeixen l expressió d oncogens en cèl·lules tumorals; o bé l expressió de gens que codifiquen anticossos recombinants, els quals interfereixen específicament en les funcions de les cèl·lules canceroses. L administració dels denominats gens suïcides, els quals són introduïts en cèl·lules que es volen eliminar (tumorals o cèl·lules infectades) i les sensibilitzen contra substàncies específiques. Quan aquestes substàncies són administrades posteriorment es produeix una destrucció selectiva de les cèllules que han incorporat el gen suïcida. La introducció de seqüències d oligonucleòtids o fragments de RNA antisentit que inhibiran l expressió a) d oncogens, b) de gens mutats que produixen proteïnes tòxiques per la cèl·lula (com en la malaltia de Huntington), o c) de gens virals, per exemple, contra el virus HIV o de l hepatitis C.
Vectors virals
VECTORS PER A TERÀPIA GÈNICA
Els retrovirus són els vectors més estudiats i els més utilitzats per a teràpia gènica.
L administració de gens com a teràpia requereix la utilització de vehicles, anomenats vectors, els quals encapsulen el material genètic i el guien fins a la cèl·lula diana. Els vectors actualment disponibles es classifiquen en: virals (d origen biològic, concretament virus modificats) i no virals (d origen fisicoquímic) (taula 1). L elecció d una estratègia ex vivo o in vivo, i del tipus de vector que cal utilitzar, ve dictada per les característiques del teixit i dels tipus cel·lulars que s han de tractar.
Al llarg de la història, el cos humà ha après a defensar-se de la introducció de DNA estrany dins el seu genoma. Els virus són parcialment capaços d evitar aquestes defenses, per això es va decidir utilitzar-los inicialment com a vectors de teràpia gènica. Per evitar que els vectors virals puguin replicar-se dins l organisme receptor i, per tant, provocar una infecció massiva, es treballa amb virus deficients en replicació. Del genoma d aquests vectors s han eliminat aquells gens que prenen part en la replicació del virus salvatge, sempre que no siguin imprescindibles per a la seva viabilitat. Més tard, una còpia normal del gen terapèutic és introduïda dins el vector en el lloc dels gens virals eliminats. Un cop modificats, els virus no poden produir noves partícules virals per ells mateixos, per aquest motiu s han creat línies cel·lulars que expressen les proteïnes necessàries per a la replicació del virus, les quals s associen per formar partícules virals buides. La introducció del genoma viral modificat dins aquestes partícules permet l obtenció de virus capaços d infectar les cèl·lules que es tractaran (figura 1). Retrovirus
FIGURA 1. Esquema de la introducció, integració i expressió d un gen d interès dins una cèl·lula mitjançant un vector viral.
LA TERÀPIA GÈNICA 143
Són virus de RNA de cadena senzilla, de 10 kilobases (kb), amb una coberta externa (Coffin, 1990). Retrovirus recombinants, deficients en replicació, poden incorporar fins a 8 kb d informació exògena, mida normalment superior a la majoria dels gens candidats per a teràpia gènica. Després de la infecció, l RNA viral és convertit per transcripció reversa a DNA de doble cadena i integrat dins el genoma de la cèl·lula hoste, la qual cosa és un avantatge quan es pretenen guarir malalties cròniques o hereditàries. Tanmateix, una integració a l atzar corre el risc de ser mutagènica. Els vectors retrovirals més utilitzats són els derivats del virus de la leucèmia de ratolí (MMLV, de l anglès Moloney Murine Leuxemia virus). En la seva forma salvatge són virus poc patogènics per a l home. Després de la infecció, el material genètic ha de penetrar dins el nucli per integrar-se dins el cromosoma cel·lular. Això només és possible si la membrana nuclear no està present, és a dir, quan la cèl·lula està en procés de mitosi. Fins a l actualitat, la majoria dels protocols clínics de teràpia gènica amb retrovirus ha utilitzat estratègies ex vivo a causa de la baixa eficiència de producció d aquests vectors i de la impossibilitat d infectar cèl·lules quiescents. En aquests protocols, les cèl·lules del pacient (generalment limfòcits que es poden aconseguir fàcilment directament de la sang) són cultivades i infectades in vitro i readministrades posteriorment. Per poder aplicar els retrovirus directament in vivo en un teixit amb un baix índex de mitosi, com és el cas del fetge, és necessari activar la seva divisió cel·lular. Estudis recents mostren que l administració local de factors de creixement (Bosch et al., 1980) podria substituir eficaçment mètodes tradicionals com l hepatectomia parcial, d alt risc sobretot per als pacients amb problemes hepàtics. Darrerament s està utilizant un grup diferent de retrovirus, anomenats lentivirus,
amb capacitat d infectar i integrar-se tant en cèl·lules en divisió com en quiescents (Naldini et al., 1996). A diferència dels vectors derivats de MMLV, en els vectors lentivirals s han eliminat tots els gens que podrien produir patogenicitat, especialment en el cas de HIV (virus de la immunodeficiència humana adquirida), però també per a altres virus d origen animal, com FIV (virus de la immunodeficiència felina) o el virus de l anèmia infecciosa equina. En el cas dels lentivirus derivats de HIV, que són els més estudiats, s ha demostrat una transferència gènica eficaç i preferencial a cèl·lules neuronals de rates injectades in vivo. Aquests vectors tenen, per tant, un gran potencial malgrat que estiguin encara en fase de desenvolupament i siguin necessaris més estudis, sobretot de seguretat, abans de poder ser aplicats clínicament. Adenovirus Els adenovirus són virus de DNA de doble cadena. El genoma viral és de 36 kb i la majoria dels seus gens són essencials per a la seva replicació. Com vectors de teràpia gènica, els adenovirus de primera generació, que contenen la major part de les seqüències virals, poden incorporar al voltant de 7,5 kb. Són produïts fàcilment en concentracions elevades, la qual cosa possibilita la seva adminstració in vivo, i infecten eficaçment un gran nombre de tipus cel·lulars, tant si estan en divisió com si no. Contràriament als retrovirus, el material genètic transferit resta episomal (fora del propi genoma), per la qual cosa desapareix el risc de mutagènesi per integració del DNA viral al de la cèl·lula hoste. Tanmateix, la divisió cel·lular va diluint el nombre de partícules adenovirals fins a desaparèixer. D altra banda, els adenovirus de primera generació provoquen una forta inflamació no específica i una important resposta
144 M. CHILLÓN I A. BOSCH
immunitària (Yang et al., 1995). Aquestes reaccions limiten la duració de l expressió a un període que va d algunes setmanes a pocs mesos, en funció del teixit, i fan difícil una readministració eficaç. La construcció de nous vectors adenovirals on s han eliminat totes les seqüències endògenes ha augmentat la capacitat d incorporació de DNA exogen fins a 32 kb. Són els anomenats adenovirus gutless (Podsakoff et al., 1994). La seva eficiència és controvertida i sembla que pot dependre del teixit que s ha de tractar, de l origen exacte del vector, de l hoste i del tipus de transgèn. Altres estratègies per reduir la resposta immuntària passen per l expressió o administració de substàncies immunosupressores, o la protecció de l adenovirus per un embolcall de lípids que redueix la seva interacció i posterior inactivació per anticossos antiadenovirals (Chillon et al., 1998). Ja que dins el genoma de l adenovirus salvatge hi ha gens que confereixen resistència immunitària i d altres que mantenen l estabilitat del genoma viral dins la cèl·lula hoste, caldria arribar a una situació ideal en què l a-
denovirus mantingués únicament els gens virals essencials per la seva estabilitat i baixa toxicitat i es pogués eventualment integrar per assegurar la seva permanència en cèl·lules en divisió. Virus adenoassociats Els virus adenoassociats (AAV, de l anglès adenoassociated viruses, de la família dels Parvovirus,), són virus de DNA de cadena senzilla de 4,8 kb, els quals requereixen la presència d adenovirus o herpesvirus per a poder-se propagar. Fins a l actualitat no han estat associats a cap patologia humana, malgrat que infectin l espècie humana de manera comuna. Els virus AAV poden infectar tant cèl·lules en divisió com cèl·lules quiescents (Fisher et al., 1996) i un cop estan en el nucli cel·lular poden integrar-se dins el genoma de la cèl·lula hoste. El virus salvatge s integra dins el braç curt del cromosoma 19; malauradament, els vectors AAV no conserven aquesta propietat i si s integren, ho fan a l atzar. Els vectors AAV infecten eficaçment i esta-
Vectors
Avantatges
Desavantatges
Adenovirus
Elevada eficiència Pot infectar cèl·lules quiescents
Expressió transitòria Provoca resposta immunitària
Virus adenoassociats
Estabilitat elevada Pot infectar cèl·lules quiescents
Poca capacitat pel DNA exogen Producció ineficaç
Retrovirus (MMLV)
Expressió estable
No infecta cèl·lules quiescents
Lentivirus
Pot infectar cèl·lules quiescents Expressió estable
Calen més estudis per garantir-ne la no patogenicitat
Herpesvirus
Pot infectar cèl·lules quiescents
Neurotoxicitat mal caracteritzada Expressió transitòria
Lípids i polímers catiònics
Fàcils de produir Poden infectar cèl·lules quiescents Poden transfectar grans molècules de DNA
Baixa eficàcia Citotòxics en grans quantitats
TAULA 1. Avantatges i desavantatges dels diferents tipus de vectors.
LA TERÀPIA GÈNICA 145
ble diferents tipus cel·lulars com el fetge, el cervell i sobretot el teixit muscular, però també algun tipus de cèl·lules sanguínies. Tanmateix, la seva eficàcia és molt més feble que la dels adenovirus, principalment perquè les preparacions són menys concentrades a causa de problemes tècnics. Finalment, un altre desavantatge és la baixa capacitat per a la incorporació d un gen exogen, essent només de 4,8 kb. Malgrat tot, els AAV són bons candidats a vectors de teràpia gènica i la seva utilització presenta molt poc risc potencial. Els vectors derivats de l herpes simple són altres vectors de DNA que tenen la capacitat d incorporar seqüències exògenes de fins a 30 kb i permeten infectar cèl·lules del sistema nerviòs. Tanmateix, l expressió del gen terapèutic és transitòria i semblen produir neurotoxicitat. Vectors no virals Els vectors no virals tenen com a principal avantatge la seguretat, ja que no provenen d agents infecciosos. Hi ha diversos tipus de teràpia gènica no viral, com l ús de lípids catiònics, polímers catiònics i la injecció directa de DNA. Administració directa del DNA La forma més senzilla de teràpia gènica és aquella en què les molècules de DNA s administren directament (injecció, electroporació o gene-gun), sense estar empaquetades dins de càpsides víriques o protegides per molècules catiòniques (lípids o polímers). D aquesta manera, s eliminen problemes derivats de la utilizació de vectors, principalment la citotoxicitat, i en el cas dels vectors virals també la resposta immunològica i riscos de patogenicitat viral. Tanmateix, l administració directa de DNA té un rendiment molt baix, primer perquè la seva entrada dins la cèl·lula (malgrat que no és
ben coneguda) no es fa a través d un sistema eficient com la interacció receptor-lligand. En segon lloc, el DNA no està protegit, i és fàcilment degradat tant a l exterior com a l interior de la cèl·lula, principalment dins dels endosomes. A causa d aquesta baixa eficàcia, s han d administrar grans quantitats de DNA, pel que l administració directa s utilitza en molt pocs casos i només quan el teixit és de fàcil accés, com per al tractament del càncer de pell. Lípids i polímers catiònics Els lípids i els polímers catiònics són molècules amb una forta càrrega positiva les quals interaccionen amb el DNA, amb càrrega neta negativa, formant un complex estable que protegeix el DNA de la degradació. Aquest complex s uneix a proteïnes de la membrana cel·lular que faciliten l entrada a la cèl·lula. Un cop a l interior, el DNA es localitza dins els endosomes, on la presència de les molècules catiòniques dificulta la seva degradació. El DNA entra posteriorment dins el nucli, on resta de manera extracromosòmica, per la qual cosa l expressió del gen terapèutic és temporal. Actualment, es coneix una gran diversitat de molècules catiòniques, però l eficiència dels diferents complexos in vivo encara és reduïda, ja que la major part del DNA és degradat en els endosomes abans d arribar al nucli (Zabner et al., 1995). Generalment, els complexos de lípid i DNA no donen resposta immunitària o processos inflamatoris. Tampoc tenen límit respecte de la capacitat del material genètic que poden transferir. Un altre avantatge que presenten els lípids i polímers catiònics com a vectors de transferència gènica és la possibilitat d unió de lligands específics per a receptors de les cèl·lules diana. Aquesta especificitat resulta molt convenient per evitar problemes secundaris deguts a l expressió del gen en cèl·lules no desitjades.
146 M. CHILLÓN I A. BOSCH
El principal desavantatge d aquest vector és la baixa eficàcia, el que obliga a utilitzar elevades concentracions de lípids, fins a nivells citotòxics. Tanmateix, és un vector que està evolucionant i millorant molt ràpidament. Per exemple, en el cas de la fibrosi quística (FQ), concentracions elevades de complexos de lípid i DNA han aconseguit corregir temporalment el fenotip FQ en l epiteli respiratori proximal del model FQ de ratolí (Hyde et al., 1993). Aquestes dades, juntament amb la possibilitat d administració dels complexos en forma d aerosol i la seva aparent manca d immunogenicitat, han permès utilitzar aquests vectors en pacients afectats de fibrosi quística (Zabner et al., 1997). EXPERIMENTS EN HUMANS Abans d aplicar la teràpia gènica de manera rutinària en humans, és necessari contestar les següents preguntes: És segura la teràpia gènica? Quines són les malalties que poden ser tractades per teràpia gènica? Quins vectors són els més efectius en cada cas? Quines són les millors rutes d administració per a cada òrgan que cal tractar? Quina és la freqüència de readministració del vector? En funció d aquestes qüestions, els assajos clínics es classifiquen en quatre fases o etapes: Assaig clínic de fase I: Farmacologia i seguretat clínica. En aquesta primera fase, s estudia per primera vegada un vector concret per a teràpia gènica. El principal interès d aquesta fase és determinar els paràmetres farmacològics i de seguretat del vector utilitzat, com per exemple la dosi que caldrà administrar en les següents fases. Per raons
ètiques i de seguretat, només participen en aquesta fase individus amb malalties molt greus, en els quals els tractaments clàssics no han funcionat. Assaig clínic de fase II: Investigació inicial de l efecte terapèutic del conjunt vector-transgèn. En aquesta fase s estudia l efecte terapèutic del sistema, encara que es continuen acumulant dades sobre la seguretat i la dosi idònia. El nombre d individus que hi participen és més elevat que en la fase I, pel que les dades són més rellevants. Assaig clínic de fase III: Evaluació del vector a gran escala Quan s ha comprovat que existeix un efecte terapèutic en un nombre limitat de pacients és necessari realitzar assajos clínics en grups d individus més nombrosos per establir la validesa de l efecte observat en els estudis de la fase II. També es compara el nou tractament amb altres estratègies ja existents. El primer assaig de teràpia gènica en fase III va ser aprovat l agost del 1996. És un estudi per a pacients de glioblastoma a escala internacional, en el qual participen diversos centres. Assaig clínic de fase IV: Aplicació general i seguiment del tractament. Quan el tractament ha estat aprovat per a un ús general (en el moment d escriure aquestes línies encara cap tractament de teràpia gènica es troba en aquesta fase), és necessari un seguiment del vector per observar efectes secundaris rars que podrien aparèixer quan s estudia un nombre molt més elevat de pacients. Fins al novembre de 1998, havien estat aprovats 363 assajos clínics de teràpia gènica amb participació de 2.791 pacients (taula 2). El 90 % d aquests protocols són de fase I, alguns dels quals ja estan acabats. El 1999 un comitè d aprovació dels Estats Units estava estudiant dos assajos de fase III per a teràpia gènica contra el càncer.
LA TERÀPIA GÈNICA 147
Patologies
Protocols Pacients
Càncer Malalties hereditàries monogèniques Malalties infeccioses Estudis de marcatge cel·lular Altres
227 52 29 41 14
1.801 286 405 227 72
Total
363
2.791
Font: Lloc web de Wiley TAULA 2. Malalties tractades per protocols clínics de teràpia gènica.
CONSIDERACIONS FINALS És evident que la teràpia gènica és un camp molt jove: els primers experiments de transferència de material genètic en cèl·lules humanes es van realitzar durant els anys vuitanta. Tanmateix, des d aleshores ja s han publicat més de cinquanta mil artícles sobre teràpia gènica. Això demostra que és un dels camps amb més possibilitats i perspectives de futur. Actualment, es parla molt dels avenços que cambiaran la medicina en els propers anys. La teràpia gènica tindrà un paper molt important en aquests canvis. Gràcies al descobriment dels gens associats a les malalties hereditàries, a la seqüenciació del genoma humà (esperada abans del 2005) i als avenços tecnològics que han permès la transferència específica de seqüències de DNA dins les cèl·lules humanes ja es pot començar a considerar la teràpia gènica com a tractament per a les causes primàries de les malalties d origen genètic. Per aquests motius, la teràpia gènica ha creat moltes expectatives (i també alguns temors) entre la població general. Tanmateix, no hem d oblidar que es tracta d una especialitat molt jove i que cal aprofundir encara molt en el tema abans de poder-la aplicar com a tractament de rutina. Quan la causa de la malaltia és genètica, l ús de fàrmacs tradicionals pot, en la major
part dels casos, pal·liar però no curar la causa primària de la malaltia. A més a més, per a determinades situacions la farmacologia clàssica presenta una sèrie de desavantages respecte de la teràpia gènica, alguns dels quals són: La producció sintètica de la proteïna és un procés llarg i costós. En general, la vida mitjana d aquestes proteïnes és curta, pel que s han d administrar sovint i és difícil que el pacient porti una vida normal. Les modificacions posttranscripcionals de la proteïna, quan aquésta és produïda sintèticament, no són exactament les mateixes que quan són sintetitzades per la cèl·lula de l individu (p. ex. glicosilacions), la qual cosa pot afectar l activitat proteica i disminuir encara mès la vida mitjana de la proteïna sintètica. La regulació de la quantitat de proteïna necessària per cèl·lula no és possible quan s administra de forma exògena però sí quan és produïda per la cèl·lula modificada genèticament, on l expressió de la proteïna està sota la regulació d un promotor específic. Cada malaltia té unes característiques particulars. Per tant, l estratègia de teràpia gènica que cal seguir dependrà tant del tipus de malaltia com dels òrgans i tipus cel·lulars afectats. Per aquest motiu no hi ha un vector ideal per a teràpia gènica, sinó que cal aplicar l adequat en cada cas. Per exemple, si es necessita una producció permanent d una proteïna determinada (cas de les malalties hereditàries amb defecte d expressió d una proteïna), es poden utilitzar retrovirus murins, AAV o lentivirus, els quals permeten integrar el gen d interès en el genoma cel·lular. Contra els tumors sòlids, generalment es necessita una expressió forta però transitòria d un gen suïcida o de gens activadors del sistema immunitari;
148 M. CHILLÓN I A. BOSCH
es recomana, doncs, l ús dels adenovirus, d elevada eficàcia en aquests casos. També caldrà tenir en compte el tipus de teixit; així, si són cèl·lules quiescents no podrem utilitzar retrovirus murins, o contràriament, si les cèl·lules que cal corregir es divideixen ràpidament i estem interessats en una expressió a llarg termini, podrem administrar retrovirus o AAV. El sistema es complica encara més quan s ha de limitar l expressió del gen d interès a un òrgan o a un tipus cel·lular concret, o quan cal regular els nivells d expressió, ja que la presència de la proteïna en cèl·lules fora del seu context natural o bé una sobreexpressió del gen introduït podria, en alguns casos, tenir efectes secundaris no desitjats. Això es pot aconseguir mitjançant la injecció directa del vector en les cèl·lules d interès, o bé dirigint el vector a les cèl·lules diana a través d una interació específica lligand-receptor cel·lular, o utilitzant promotors regulables i/o específics de teixit. Cal recordar que els vectors més utilitzats en els protocols clínics són els vectors virals. El disseny d aquests vectors es fa seguint uns criteris de màxima seguretat malgrat que pugui anar en detriment de la màxima expressió. Per damunt de tot, cal evitar qualsevol possibilitat de recombinació entre el vector i una seqüència de la cèl·lula hoste o fins i tot de la cèl·lula productora de virus, la qual cosa podria donar lloc a virus potencialment patògens. Fins al moment, no s ha detectat cap fenomen de complementació viral que pugui generar una infecció massiva, ni fenòmens de mutagènesi per inserció de vectors integratius, ni tampoc casos d infecció de cèl·lules germinals. Tanmateix, encara s han de realitzar més experiments abans d obtenir conclusions definitives. Els comitès que vetllen per la seguretat dels vectors de teràpia gènica tenen en compte tots aquests factors i per tant, el procés d acceptació de cada protocol clínic és llarg i complex.
Un dels problemes més importants de la teràpia gènica és la resposta immunitària, sobretot quan s utilitzen vectors virals. La resposta immunitària es dirigeix principalment contra el vector, malgrat que també pot dirigir-se contra el gen terapèutic sobretot quan no s expressa normalment en l individu. L estratègia més utilitzada per evitar aquest problema és la immunosupressió temporal i/o local de l organisme. Tanmateix, això no és sempre aconsellable, depenent del tipus de malaltia i de les característiques de cada pacient. Malgrat la baixa eficàcia de la teràpia gènica a l hora de transfectar un òrgan o tipus cel·lular concret, no sempre es requereix una infecció del 100 % de les cèl·lules d aquest òrgan. Un exemple n és la fibrosi quística, on la producció tan sols del 10-15 % de la proteïna total reverteix en el fenotip normal (Chillón et al., 1995). Un altre cas és l efecte bystander que s observa en cèl·lules tumorals veïnes de cèl·lules transfectades amb gens suïcides com la timidin-quinasa (Mesnil et al., 1996). En aquest cas, només cal transfectar un baix percentatge de cèl·lules canceroses per sensibilitzar la major part del tumor contra l acció del ganciclovir, l agent tòxic que és administrat posteriorment i que provocarà la mort de la majoria de les cèl·lules tumorals, malgrat que no expressin la timidina quinasa. Per obtenir un efecte terapèutic, no sempre cal transfectar l òrgan afectat en cada malaltia. Així, en malalties on la proteïna deficitària és secretada, com l hemofília, la diabetis, les anèmies o la majoria de les mucopolisacaridosis, es poden transfectar teixits i òrgans fàcilment infectables per vectors de teràpia gènica, com el múscul o el fetge. Aquests actuaran com a òrgans secretors per a l administració sistèmica de proteïnes terapèutiques, les quals passaran al sistema circulatori i des d allí seran distribuïdes a tot l organisme. Una altra opció és l ús de neoòr-
LA TERÀPIA GÈNICA 149
gans o cèl·lules encapsulades modificades genèticament (Moullier et al., 1996; Aebischer et al., 1996), on les cèl·lules són transfectades ex vivo i protegides per polímers inerts que impedeixen l entrada de cèl·lules fagocítiques de l individu però, d altra banda, permeten la secreció de la proteïna. Resumint, l ús de la teràpia gènica en humans és encara poc eficient i per aquest motiu continua l esforç d investigació bàsica en aquest camp. Cal recordar que tots els estudis han estat realitzats durant els darrers deu anys i encara queda molt de camí per fer, no solament pel que fa a la investigació, amb la confirmació de l eficàcia dels nous vectors en situacions clínicament rellevants, l avaluació de la seva seguretat biològica i el desenvolupament de la metodologia adequada per a la seva producció a gran escala, sinó també en els àmbits legal i ètic, amb la creació de lleis que regulin la manipulació genètica en humans. Malgrat tot, els resultats preliminars són encoratjadors i donen esperances respecte de la possibilitat de tractament de malalties que fins avui són incurables. BIBLIOGRAFIA AEBISCHER, P.; M. SCHLUEP; N. DEGLON; J. M. JOSEPH; L. HIRT; B. HEYD; M. GODDARD; J. P. HAMMANG; A. D. ZURN; A. C. KATO; F. REGLI; E. E. BAETGE (1996). «Intrathecal Delivery of CNTF Using Encapsulated Genetically Modified Xenogeneic Cells in Amyotrophic Lateral Sclerosis Patients». Natural Medicine, núm. 6, pàg. 696-699. BOSCH, A.; P. D. JR. MC CRAY; K. S. WALTERS; M. BODNER; D. J. JOLLY; H. H. VAN ES; T. NAKAMURA; K. MATSUMOTO; D. L. DAVIDSON (1998). «Effects of Keratinocyte and Hepatocyte Growth Factor in vivo: Implications for Retrovirus Mediated Gene Transfer to Liver». Human Genetics Therapy, núm. 9, pàg. 17471754. CHILLÓN, M.; T. CASALS; B. MERCIER; L. BASSAS; W. LISSENS; S. SILBER; M. C. ROMEY; J. RUÍZ-ROMERO; C. VERLINGUE; M. CLAUSTRES (1995). «Mutations in the Cystic Fibrosis Gene in Patients with Congenital Absence of the Vas Deferens». New England Journal of Medicine, núm. 332, pàg. 1475-1480.
CHILLÓN, M.; J. H. LEE; A. FASBENDER; M. J. WELSH (1998). «Adenovirus Complexed with Polyethylene Glycol and Cationic Lipid is Shielded from Neutralizing Antibodies in vitro». Genetic Therapy, núm. 7, pàg. 995-1002. COFFIN, J. M. (1990). «Retroviridae and Hieir Replication». A: B. N. FIELDS; D. M. KNIPE; R. M. CHANOCK; M. S. HIRSCH; J. L. MELNICK; T. P. NOMALLS; B. ROIZMAN, ed. Fields Virology. 2nd Edition. Nova York: Raven Press, pàg. 1437-1500. FISHER, K. J.; H. CHOI; J. BURDA; S. J. CHEN; J. M. WILSON (1996). «Recombinant Adenovirus Deleted of all Viral Genes for Gene Therapy of Cystic Fibrosis». Virology, núm. 217, pàg. 11-22. HYDE, S. C.; D. R. GILL; C. F. HIGGINS; A. E. TREZISE; L. J. MACVINISH; A. W. CUTHBERT; R. RATCLIFF; M. J. EVANS; W. H. COLLEDGE (1993). «Correction of the Ion Transport Defect in Cystic Fibrosis Transgenic Mice by Gene Therapy». Nature, núm. 362, pàg. 250-255. MESNIL, M.; C. PICCOLI; G. TIRABY; K. WILLECKE; H. YAMASAKI (1996). «Bystander killing of cancer by herpes simplex virus thymidine kinase gene is mediated by connexins». Proceedings National Academy of Sciences, USA, vol. 93, pàg. 1831-1835. MOULLIER, P.; D. BOHL; J. M. HEARD; O. DANOS (1993). «Correction of Lysosomal Storage in the Liver and Spleen of MPS VII Mice by Implantation of Genetically Modified Skin Fibroblasts». Nature Genetics, núm. 4, pàg. 154-159. NALDINI, L.; U. BLOMER; P. GALLAY; D. ORY; R. MULLIGAN; F. H. GAGE; I. M. VERMA; D. TRONO (1996). «In vivo Gene Delivery and Stable Transduction of Nondividing Cells by a Lentiviral Vector». Science, núm. 272, pàg. 263-267. PODSAKOFF, G.; K. K. JR. WONG; S. CHATTERJEE (1994). «Efficient Gene Transfer into Nondividing Cells by Adeno-associated Virus-based Vectors». Journal Virology, núm. 68, pàg. 5656-5666. YANG, Y.; Q. LI; H. C. ERTL; J. M. WILSON (1995). «Cellular and Humoral Immune Responses to Viral Antigens Create Barriers to Lung-directed Gene Therapy with Recombinant Adenoviruses». Journal Virology, núm. 69, pàg. 2004-2015. ZABNER, J.; S. H. CHENG; D. MEEKER; J. LAUNSPACH; R. BALFOUR; M. A. PERRICONE; J. E. MORRIS; J. MARSALL; A. FASBENDER; A. E. SMITH; M. J. WELSH (1997). «Comparison of DNA-lipid Complexes and DNA alone for Gene Transfer to Cystic Fibrosis Airway Epithelia in vivo». Journal Clinical Investigation, núm. 6, pàg. 1529-1537. ZABNER, J.; A. J. FASBENDER; T. MONINGER; K. A. POELLINGER; M. J. WELSH (1995). «Cellular and Molecular Barriers to Gene Transfer by Cationic lipid». Journal Biological Chemistry, núm. 270, pàg. 1899719007.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 151-161
BIOLOGIA DEL CÀNCER JOSÉ LUIS ROSA i FRANCESC VENTURA Departament de Ciències Fisiològiques. Universitat de Barcelona. Adreça per a la correspondència: Departament de Ciències Fisiològiques II. Campus de Bellvitge. Universitat de Barcelona. Pavelló de Govern Central, 4a planta. C/ Feixa Llarga, s/n. 08907 L Hospitalet del Llobregat. Adreces electròniques: rosa@bellvitge.bvg.ub.es i fventura@bellvitge.bvg.ub.es
INTRODUCCIÓ La paraula càncer descriu un grup de malalties caracteritzades pel creixement excessiu i descontrolat de cèl·lules que envaeixen i danyen altres teixits i òrgans, i que provoquen en molts casos la mort de l individu. Després de les malalties cardiovasculars, el càncer constitueix la causa de mort més elevada en els països desenvolupats i s estima que en les pròximes dues dècades es convertirà en la primera causa de mort en els Estats Units. Aquest augment de la mortalitat produïda pel càncer està relacionada amb l increment de l esperança de vida. A mesura que ens fem grans augmenta la possibilitat de desenvolupar un càncer, de manera que es considera l edat elevada el principal factor de risc. En aquesta breu revisió comentarem primerament els factors externs i interns relacionats amb l aparició de càncer, seguidament analitzarem com una cèl·lula perd el control de la seva proliferació i descriurem quins gens estan implicats en
aquest procés, continuarem comentant els mecanismes de progressió tumoral i les teràpies que s estan aplicant actualment, i acabarem analitzant el present i el futur de la investigació sobre el càncer. CARCINOGÈNESI L origen del càncer està en nosaltres mateixos: són els nostres propis gens els que, en alterar-se, originen càncer. La majoria d aquestes mutacions es produeixen per l acció d agents externs coneguts amb el nom d agents cancerígens o carcinògens. Els carcinògens són, doncs, agents que causen mutacions en protooncogens, en gens supressors i, possiblement, en gens de reparació del DNA. Aquests agents poden ésser substàncies químiques, tant naturals com generades per l activitat industrial, agents físics com les radiacions ionitzants o ultraviolades, o agents infecciosos com alguns tipus de virus o bacteris. No tots els agents
152 J. L. ROSA I F. VENTURA
que causen mutacions són externs al nostre cos. De fet hi ha una font intrínseca de mutacions en el DNA cel·lular a causa dels errors que la pròpia cèl·lula comet, especialment durant el procés de replicació del DNA i divisió cel·lular. Hi ha, per tant, una major probabilitat d acumular mutacions en el DNA a causa d errors en la replicació i/o per l exposició a agents cancerígens externs amb el temps, i això pot explicar l augment exponencial observat d incidència i de mort per càncer amb l edat. Aquells casos en què l aparició de càncer té lloc en persones joves són probablement deguts a una exposició excessiva a carcinògens o a l herència d una susceptibilitat per transmissió d un gen (protooncogèn, gen supressor o gen de reparació) defectuós. Conèixer els carcinògens és conèixer els factors de risc i és el primer pas en la prevenció del càncer. Estudis realitzats sobre la població dels Estats Units posen de manifest una sèrie de factors de risc: El tabac és actualment responsable d un terç de totes les morts per càncer dels Estats Units. El fet que el tabac hagi estat considerat com un hàbit social ha fomentat la indiferència social sobre les persones que fumen en públic. Això sense oblidar que el fumar també és una addicció i com a tal és difícil de deixar. La demostració que fumar és un factor elevat de risc per desenvolupar càncer no ha estat suficient per a què la gent, sobretot jove, no comenci a fumar o ho deixi. Força part d aquest fracàs és degut a les companyies tabaqueres i a les seves campanyes publicitàries, de manera que tot això reflecteix els importants interessos econòmics que hi ha darrere d aquest carcinogen. Els factors dietètics han estat incriminats en un altre terç de les morts per càncer en els Estats Units. Estudis epidemiològics han demostrat diferències significatives en la in-
cidència de càncers entre grups de població d acord al seu consum de carn i greixos, factors de risc, o de fruites i verdures, factors protectors. Malgrat aquests estudis, no coneixem els mecanismes moleculars que relacionen la dieta i el risc de càncer, i és per això que es recomana una dieta equilibrada amb moderació de carns i greixos, i molta fruita fresca i verdures. Curiosament una dieta similar s aconsella per evitar malalties cardiovasculars. Entre els factors dietètics també podem destacar l alcohol perquè el seu consum elevat sembla estar relacionat amb diferents tipus de càncers (boca, laringe, faringe, esòfag, fetge) i sobretot pel seu efecte sinèrgic amb altres factors de risc com el tabac. Una varietat d agents infecciosos ha estat implicada en aproximadament un 15 % dels càncers en les nacions desenvolupades. En destaquen els virus de l hepatitis (càncer de fetge), alguns virus dels papil·lomes (càncer cervical), el virus Epstein-Barr (limfomes i càncer nasofaringi), un herpesvirus (sarcoma de Kaposi), i el bacteri Helicobacter pylori (càncer d estómac). Mesures preventives com la vacunació (s està utilitzant actualment amb el virus de l hepatitis B) i la profilaxi ajudaran a disminuir el nombre de casos per agents infecciosos. La radiació ultraviolada de la llum solar és freqüentment la causa dels tumors de pell encara que la majoria no produeixen mortalitat. Una excepció són els melanomes, la freqüència dels quals darrerament s ha incrementat en els Estats Units possiblement a causa d una excessiva exposició a la llum solar com a conseqüència de la moda de prendre el sol, en conjunció amb la destrucció paulatina de la capa d ozó atmosfèrica, que actua com a filtre natural d aquesta radiació a la Terra, per les emissions de compostos clorofluorocarbonats. Per tant, la pol·lució ambiental també és un factor de risc. De fet, s estima que aproximadament un 5 %
BIOLOGIA DEL CÀNCER 153
dels càncers als Estats Units són deguts a exposicions ocupacionals i un altre 2 % a contaminants ambientals. No tots els factors de risc per a desenvolupar un càncer són extrínsecs al nostre cos. Per exemple, nivells elevats i mantinguts d hormones sexuals (estrògens i andrògens) s han relacionat amb els càncers de mama, ovari, úter i pròstata. Un altre exemple són les síndromes canceroses hereditàries que representen aproximadament un 1 % dels càncers. Un aspecte positiu de tots aquests factors de risc és que ens indiquen que les causes externes, no genètiques, i per tant en principi evitables, són responsables d un 80 90 % dels casos de càncer. Per tant, conèixer les causes i evitar els factors de risc són els pilars que hauríem de mantenir i potenciar en la lluïta contra aquesta malaltia. Dues ciències, en un principi allunyades com l epidemiologia i la biologia molecular, començen a treballar juntes per augmentar el coneixement sobre el càncer, de manera que en els propers anys la prevenció sigui la primera etapa per començar a controlar el càncer. MECANISME I GENS IMPLICATS Actualment s ha descrit més d una centena de tipus de càncer produïts pel creixement descontrolat d una de les cèl·lules que constituïen el nostre organisme. Malgrat aquesta diversitat, tots els tipus de càncer comparteixen un mecanisme comú: la pèrdua de control dels gens responsables d una ordenada proliferació cel·lular. Aquesta pèrdua de control es produeix per l alteració o mutació inicial d algun gen que confereix una major capaçitat de proliferació a una cèl·lula (origen monoclonal de càncer). Els gens diana d aquestes mutacions són: els protooncogens, els gens supressors de tumors (també coneguts amb el nom d antion-
cogens) i els gens de reparació de la molècula d àcid desoxirribonucleic (DNA). Protooncogens Els protooncogens codifiquen proteïnes responsables d activar la proliferació cellular durant el desenvolupament embrionari, morfogènesi, regeneració de cèl·lules mortes, curació de ferides i altres situacions. Aquests protooncogens poden patir una mutació que doni lloc a una forma activada que rep el nom d oncogèn. Si analitzem els oncogens trobem pràcticament tots els diferents tipus de molècules implicades en la comunicació cel·lular: Factors de creixement com: sis, la seva forma protooncogènica és la cadena B del PDGF (platelet-derived growth factor, factor de creixement derivat de plaquetes) associat a gliomes, sarcomes i alguns carcinomes humans; interleucina 3 (IL-3) trobada en leucèmies limfocítiques agudes; FGF-3, 4 i 5 (fibroblast growth factors, factor de creixement dels fibroblasts), relacionats amb carcinomes de mama, tumors d estómac i sarcomes de Kaposi, i tumors de bufeta humans, respectivament; wnt-5A, associat a carcinomes de pulmó, pròstata i mama, i melanomes. S atribueix l oncogenicitat d aquests tipus d oncogens a la seva sobreexpressió. Receptors de membrana amb activititat tirosina quinasa com: v-erbB, forma truncada i activada del receptor de l EGF (epithelial growth factor, factor de creixement epitecial) (c-erbB) que es troba amplificat en carcinomes de mama, bufeta, ronyó, gàstrics i d ovaris, glioblastomes i melanomes; erbB-2/neu (receptor de l herregulina/NDF i dels factors de creixement glials, GGF, glial growth factor), relacionat amb carcinomes de mama, ovari, adenocarcinomes gàstrics, de bufeta, de pulmó, i de cap i coll; met (receptor del factor de creixement de l hepatòcit, HGF, hepatocyt growth factor),
154 J. L. ROSA I F. VENTURA
associat a carcinomes d estómac, tiroide, hepatocel·lular, gliomes i sarcomes; ret (una subunitat del receptor del factor neurotròfic derivat de glia, GDNF, glial derived neurotrophic factor) s ha trobat activat en tres síndromes hereditàries que produexen l aparició de tumors humans específics (neoplàsies múltiples endocrines MEN 2A i MEN 2B, i els carcinomes medul·lars familiars de tiroide, FMTC). Les formes protoncogèniques d aquests receptors tenen activitat tirosina quinasa que és activada per la unió del factor. Les formes mutades presenten normalment activació constitutiva de la seva activitat quinasa. En alguns casos, la seva sobreexpressió és suficient per produir oncogenicitat. Receptors sense activitat tirosina quinasa com: TSH-R (receptor de l hormona hipofisiària tiròtropa) mutat i activat en carcinomes de tiroide; IL-2-R, IL-3-R i GM-CSF-R (receptors dels factors de creixement de cèl·lules hematopoètiques IL-2, IL-3 i GM-CSF, respectivament) associats amb leucèmies. Tirosines quinases intracel·lulars com: src (primer oncogèn retroviral aïllat en el sarcoma de Rous en pollastres i primera tirosina quinasa descrita); yes; abl, activada en leucèmies agudes i mielocítiques cròniques per translocació cromosomica; fgr, sobreexpressat en limfòcits B transformats pel virus d Epstein-Barr. Algunes d elles es troben unides a membrana, fet generalment necessari per a la seva activitat transformant, per mitjà de la incorporació de residus lipídics. La seva capacitat oncogènica és produïda també per pèrdua de la seva regulació negativa localitzada a la regió carboxiterminal. Proteïnes adaptadores citoplasmàtiques com: crk, una proteïna adaptadora amb dominis SH2. La presència de dominis SH2 permet interaccions proteïna-proteïna que es troben implicades en diverses etapes de les vies de transducció de senyals proliferatives on intervenen tirosina quinases.
Proteïnes transductores citoplasmàtiques com: ras, una proteïna que uneix GTP i que es caracteritza perquè algun dels membres de la seva família (H-ras, K-ras o N-ras) es troba mutat en un 30 % de tots els tumors humans. S ha trobat mutat en càncers de pàncrees (90 %), carcinomes de còlon (50 %), seminomes (40 %), adenocarcinomes de pulmó (30 %), carcinomes de tiroide (25 %) i melanomes (20 %). L activació d aquestes proteïnes s efectua per unió de GTP en resposta a senyals induïdes pels receptors de membrana. Aquesta activació és transitòria, passant a un estat inactiu (unit a GDP) per mitjà d una activitat GTPasa intrínseca i estimulada per enzims específics. Les mutacions transformants de ras es produeixen per mutacions puntuals que eliminen aquesta activitat GTPasa intrínseca, mantenint-la constitutivament activada. Proteïnes citosòliques amb activitat serina/treonina quinasa com: raf, relacionat amb el càncer de pulmó i activat en leucèmies; i mos, trobat en adenomes de les glàndules salivals. Aquestes dues proteïnes es troben involucrades a les vies de transducció dels mitògens que condueixen a l activació de la via de les MAP quinases. L activació continuada d aquestes quinases per sobreexpressió, en el cas de mos, o deguda a la pèrdua de les regions de regulació negativa, situades en l extrem aminoterminal de raf, condueix a la transformació cel·lular. Altres serina/treonina quinases oncogèniques però de les quals n és menys coneguda la relació amb càncers humans són: la família de les proteïnes quinases C (PKC); v-akt; pim-1; cot; i tpl-2. Factors de transcripció com myc, activat per translocació i amplificació en limfomes, leucèmies i carcinomes; jun i fos, que constitueixen el factor de transcripció AP-1, es troben sobreexpressats en càncers de pulmó i osteosarcomes, respectivament; erb-A, relacionat amb el receptor de l hormona
BIOLOGIA DEL CÀNCER 155
tiroïdal T3 i trobat alterat en leucèmies, carcinomes de còlon, pulmó, fetge, estómac i mama. Actualment s han descrit més de quaranta oncogens que codifiquen factors de transcripció. Proteïnes que participen directament en el cicle cel·lular com: la ciclina D1, sobreexpressada en adenomes de tiroide, en limfomes de cèl·lules B, en alguns càncers de mama (15-25 %), en carcinomes de cap i coll, d esòfag, i de pulmó. La seva capacitat oncogènica es basa en la fosforilació de la proteïna retinoblastoma (Rb) per complexos de la ciclina D amb les quinases dependents de ciclines CDK4 o CDK6. Una sobreexpressió de ciclina D ocasionaria la hiperfosforilació permanent de Rb, que conduiria a la pèrdua del punt de control en la transició entre les fases G1 i S del cicle cel·lular. Altres gens com els membres de la familia cdc25 (A i B, però no el C), que codifiquen fosfatases que activen les CDK, són potencials oncogens que s han detectat sobreexpressats en carcinomes de mama primaris (32 %) i semblen estar relacionats amb un increment de l angiogènesi i, per tant, amb un mal pronòstic de supervivència dels pacients. Proteïnes implicades en la mort cel·lular com bcl-2, que es troba sobreexpressat en limfomes fol·liculars de cèl·lules B, en neuroblastomes, en carcinomes de còlon i pròstata, i en altres. L acció oncogènica de bcl-2 no és deguda a un augment de la proliferació sinó a una inhibició de la mort cel·lular per apoptosi (mort cel·lular programada) de cèl·lules que d altra manera no podrien resistir la limitació de factors de creixement i altres condicions adverses. Gens supressors de tumors Els gens supressors de tumors tenen la funció de mantenir la cèl·lula en un estat de repòs o d activar processos apoptòtics en aquelles cèl·lules en què es detectin anoma-
lies en el DNA quan s està replicant. A causa d aquestes funcions no és estrany que aquests gens siguin reguladors del cicle de divisió cel·lular, del procés d apoptosi, de l adhesió cel·lular, i del manteniment de l estabilitat genòmica davant de l acció d agents externs. Actualment, hi ha descrita més d una quinzena de gens supressors. Alguns exemples d aquests gens són: 1) retinoblastoma (Rb), un regulador de la fase G1/S del cicle cel·lular que s ha detectat mutat en un 50 % dels càncers humans i es troba associat a retinoblastomes, osteosarcomes, carcinomes de còlon, pulmó, mama, bufeta, pròstata, esòfag, úter, i a algunes leucèmies; 2) p53, que codifica una proteïna multifuncional (controla el cicle cel·lular, la replicació i reparació del DNA, l estabilitat del genoma, l apoptosi i el creixement tumoral) i es troba mutat també en aproximadament el 50 % dels tumors humans (s ha trobat en càncers de: pulmó, mama, fetge, ovari, bufeta, cervell, estómac, esòfag, sarcomes, limfomes, leucèmies, malaltia de LiFraumeni) a causa, normalment, de mutacions puntuals que originen la substitució d un aminoàcid per un altre i inactiven la proteïna; 3) els gens MTS1 i MTS2, que codifiquen els inhibidors p16, p19 i p15 dels complexos ciclina D-CDK4 i ciclina DCDK6 que són actius durant la fase G1, s han trobat mutats algun d ells en càncers de pàncrees, de vies biliars, d esòfag, de bufeta, de pulmó, de ronyó, de pròstata, leucèmies limfoblàstiques agudes, gliomes, tumors de cap i coll, i en famílies amb susceptibilitat hereditària a melanomes i càncer de pàncrees; 4) els gens BRCA1 i BRCA2, que codifiquen proteïnes l activitat de les quals encara no està definida amb claredat, s han trobat delecionats en la majoria de casos de càncer de mama hereditari, el gen BRCA1 s ha trobat també delecionat en el 80 % dels càncers familiars i esporàdics d ovari, i el gen BRCA2 en un 20-40 % dels càncers de mama
156 J. L. ROSA I F. VENTURA
esporàdics; 4) els gens APC, MCC i DCC, que codifiquen proteïnes que participen en l adhesió cel·lular, es troben mutats en carcinomes de còlon i, en el cas del DCC, també es troba inactivat en carcinomes d estómac, pàncrees, mama, pròstata, endometri, esòfag, bufeta i en leucèmies, gliomes i tumors de cèl·lules germinals masculines; 5) el gen DPC4, que intervé en la transmissió del senyal inhibidor de la proliferació cel·lular, es troba mutat en carcinomes pancreàtics i en tumors colorectals; 6) i el gen wt1, que codifica un factor de transcripció que regula normalment de manera negativa la transcripció de gens implicats en la proliferació cel·lular, s ha trobat mutat en pacients amb la síndrome de Denys-Drash i en pacients amb predisposició hereditària a desenvolupar tumors de Wilms (càncer de ronyó). Gens de reparació Els gens de reparació del DNA són els responsables de resoldre els errors produïts en la incorporació dels nuclèotids durant la replicació del DNA (gens MMR: mismatch repair) i de reparar les alteracions de la molècula de DNA induïdes per agents externs (gens NER: nucleotide excesion repair). Mutacions d algun d aquests gens de la maquinària de reparació del DNA produirien múltiples mutacions del genoma (fenomen conegut amb el nom de fenotip mutador). Comencem a conèixer gens de reparació que pertanyen a un d aquests dos grups com: els gens MSH2, MLH1, PMS1 i PMS2 de la família NMR implicats en el càncer colorectal hereditari del tipus no polipós (HNPCC, de l anglès hereditary non-polypasis colorectal cancer); els gens GTBP i MSH3 també de la família MMR i associats en carcinomes colorectals esporàdic i d endometri, respectivament; i els gens XPA, XPB, XPC, XPD, XPE, XPF, XPG, CSA i CSB de la família NER, i involucrats en síndro-
mes hereditàries com la síndrome de Cockayne i la tricotiodistròfia, no relacionades amb tumors, o com la xerodèrmia pigmentada relacionada amb melanomes malignes. Perquè es desencadeni un procés tumoral, s ha de produir la conjunció de lesions genètiques en els protooncogens i en els gens supressors. El protooncogèn ha d experimentar una mutació que el converteix en oncogèn. I s ha de produir una altra mutació que inactivi un dels gens supressors, de manera que es produeix una pèrdua de la facultat de posar fre a la proliferació generada per l oncogèn. Si la mutació es produeix en algun gen de reparació del DNA, això comportarà múltiples mutacions del genoma que tindran efectes cancerígens quan afectin els protooncogens i els gens supressors. El descobriment del paper decisiu de protooncogens i gens supressors en la carcinogènesi va promoure l estudi detallat dels gens implicats. Així, es van aïllar i caracteritzar els gens prèviament esmentats, i molts altres, i es va veure que mutacions d aquests gens (per deleció o inserció de nucleòtids, per translocació del gen, o per substitució puntual d un nucleòtid) originaven processos de transformació cel·lular. Aquests estudis van permetre conèixer el paper d aquests gens en aquests processos i descobrir rutes de senyalització essencials per regular el control de la divisió i de la diferenciació cel·lulars. PROGRESSIÓ TUMORAL La metàstasi és la principal causa de mort dels pacients de càncer. Anomenem metàstasi la invasió per les cèl·lules canceroses d òrgans distants del lloc inicial on es va originar el procés de transformació maligna. La metàstasi és tan sols la fase ulterior del procés de creixement desordenat inherent a tot procés tumoral. Sabem que el càn-
BIOLOGIA DEL CÀNCER 157
cer és el resultat de l acumulació de mutacions en protooncogens, en gens supressors i en gens de reparació del DNA que poden explicar l augment de la proliferació cel·lular. Aquesta acumulació progressiva de mutacions origina en primer lloc una hiperplàsia o creixement desordenat, i després invasivitat cel·lular, vascularització o angiogènesi i finalment la metàstasi. Actualment molts estudis estan adreçats a conèixer les molècules i els mecanismes moleculars que regulen el procés de metàstasi. S ha demostrat que aquest procés comença amb un fenomen d invasivitat consistent en una pèrdua de l adhesió intercel·lular, una degradació de la matriu extracel·lular, i un augment de la mobilitat. La reducció de l adhesió intercel·lular causa la separació de les cèl·lules veïnes. Durant aquest procés s ha observat una variació, normalment una disminució, de les proteïnes d adhesió intercel·lular com l E-cadherina (en càncers de mama, carcinomes ductals), les catenines, les integrines (en carcinomes de mama i de còlon disminueixen, i augmenten en càncers de cap i coll, bufeta, pulmó i còlon), la FAK (focal adhesion kinase, quinasa d adhesió focal) que augmenta en càncers de mama i còlon, el receptor de l àcid hialurònic CD44 (càncer colorectal, de pulmó, de cap i coll) o la glicoproteïna tenascina (carcinomes colorectals i astrocitomes) . La degradació de la matriu extracel·lular és deguda a un augment de l activitat proteolítica com a consequència de l expressió i secreció de proteases. Es conexien alguns tipus de proteases que estan involucrades de forma variable en diferents tipus de càncers com les metal·loproteases (col·lagenases 1 i 3, gelatinases, estromelisines, proteases de membrana), les serïna proteases (uPA i tPA), les sisteïna proteases (catepsines B, C, H i L) i les aspartic proteases (catepsina D). Les cèl·lules canceroses mostren una major mobilitat que les normals i aquesta mo-
bilitat s incrementa amb l augment del seu potencial invasiu i metastàsic. Aquest moviment pot estar estimulat per agents quimiotàctics com l HGF (hepatocyte growth factor, factor de creixement de l hepatocit), l AMF (autocrine motility factor, factor de mobilitat autocrina) els FGF (fibroblast growth factor), el PDGF, els IGF (insulin-like growth factors: I i II; factors de creixement semblants a la insulina: I i II) i les IL (interleukines: 6 i 8; interleucines: 6 i 8). Actualment es creu que la migració cel·lular es produeix per la formació seqüencial de protrusions com filopodis, lamel·lipodis i pseudopodis, formades perfilaments entrecreuats d actina en zones concretes sota la membrana cel·lular denominades unions focals. En aquest procés estan involucrades integrines, diverses quinases (PI3K, FAK i PKC), proteïnes G (de les famílies Rho, Rac i Cdc42) i les seves proteïnes reguladores, i altres proteïnes associades a actina o presents en les unions focals. A més del fenomen d invasivitat cel·lular, el creixement tumoral requereix una vascularització paral·lela per arribar a ésser una metàstasi. Aquesta vascularització es produeix mitjançant la formació de nous vasos sanguinis a partir dels vasos preexistents (fenomen conegut amb el nom d angiogènesi). Això permetrà al tumor primari accedir a nutrients per crèixer i disseminar les seves cèl·lules canceroses pel torrent sanguini. Al final, quan alguna cèl·lula que hagi sobreviscut a l extravasació colonotzi algun teixit distant, s iniciarà el creixement de nous tumors. Actualment s utilitza la densitat de vasos com a factor pronòstic significatiu dels càncers de mama i pròstata. S han descrit una sèrie de factors amb activitat angiogènica com els FGF (bàsic i àcid), els VPF (vascular permeability factors, factors de permeabilitat vascular), l HGF, la IL-8, el TNFa (tumor necrosis factor a, factor de necrosi tumoral), les prostaglandines E1 i E2, l angiogenina, el PD-ECGF (platelet-derived endothe-
158 J. L. ROSA I F. VENTURA
lial cell growth factor, factor de creixement de la cèl·lula endotelial denvat de plaquetes), la tenascina i la integrina avb3. També s han identificat factors amb activitat antiangiogènica com el TGF-b (transforming growth factor b, factor de creixement transformador b), els interferons (a, b i g), el TIMP-1 (tissue inhibitor of metalloproteinases 1, teixit inhibidor de metal·loproteïnes), la trombospondina 1, la vitamina D3, la IL-1, el PF-4 (platelet factor 4, factor 4 de plapuetes) i derivats hormonals com el tetrahidrocortisol o el 2-metoxiestradiol. En alguns tipus de càncer coneixem alteracions en oncogens i gens supressors implicats en el desenvolupament del tumor. El model més estudiat de progressió tumoral ha estat el càncer de còlon humà. En aquest model s ha pogut observar com els diferents estadis de progressió es corresponen amb l aparició i l acumulació de mutacions en gens concrets. De manera que podem associar cada estadi amb l aparició d un gen mutat. La primera alteració detectada a l epiteli normal és freqüentment la deleció d un fragment del braç llarg del cromosoma 5 que inclou el gen APC (poliposi coliadematosa). Quan l adenoma creix (més d un centrímetre de diàmetre) apareixen mutacions en K-ras i, posteriorment, s observen delecions en diferents cromosomes, generalment el 18 i el 17, que inclouen el gen DCC i p53, respectivament. Aquestes mutacions ja provoquen l aparició de carcinomes invasius. Aquests gens no són exclusius i ja comencen a identificar-se altres gens que s han trobat mutats associats a algun estadi com són: el TGF b-RII (epiteli normal), el DPC4 (adenoma), i el bcl-2 (carcinomes). TERÀPIES Es podria pensar que els tumors, que són el resultat d una proliferació cel·lular
descontrolada i que a causa de les mutacions dels gens expressen proteïnes aberrants, haurien d ésser diana de l acció del sistema immunitari. Però s ha observat que diverses respostes immunitàries estan reduïdes en pacients amb càncer, de manera que podem dir que les cèl·lules tumorals són molt poc antigèniques. A causa d aquesta ineficàcia del nostre sistema immunitari per a reconèixer i eliminar les cèl·lules tumorals, necessitem tractaments, que eliminin o, com a mínim, frenin aquest creixement descontrolat. Les dues dificultats principals que troben les teràpies són la necessitat d eliminar totes les cèl·lules canceroses i la manca d especificitat dels tractaments, que no poden distingir les cèl·lules canceroses de les sanes. Si analitzem tant la incidència com la mortalitat per càncer, observarem que continua augmentant, fet que indica que encara no disposem de teràpies eficaces contra el càncer. Això no significa que en alguns tipus de càncer no s hagin aconseguit avenços significatius, com en les leucèmies i alguns limfomes, utilitzant els trasplantaments de medul·la òssia. Però en la majoria de tipus de càncer els avenços són petits (estómac, còlon, ovari, coll uterí) o pràcticament nuls (pulmó, fetge, melanoma, esòfag, cervell, mama, pàncrees). El punt més crític és la detecció del tumor. Una vegada diagnosticat, la qüestió més urgent és conèixer si el tumor està localitzat o si hi ha metàstasi. Una detecció precoç i localitzada del tumor augmenta considerablement les possibilitats d èxit en el tractament. El millor tractament actualment per als tumors sòlids és la cirurgia. La cirurgia es complementa amb altres teràpies com són la radioteràpia, la quimioteràpia i, en alguns casos, l hormonoteràpia. La radioteràpia intenta impedir la proliferació de les cèl·lules tumorals mitjançant la seva irradiació amb raigs X i g. S ha demostrat que la molècula de DNA
BIOLOGIA DEL CÀNCER 159
és una de les dianes de la radiació i que les lesions en aquesta molècula causen la mort cel·lular. Un problema obvi d aquesta teràpia és la seva inespecificitat; per tant, s ha d utilitzar de manera molt localitzada per a evitar els efectes secundaris sobre les cèl·lules normals. La quimioteràpia empra substàncies químiques citotòxiques que destrueixen les cèl·lules canceroses. Aquesta és una teràpia que s empra normalment com a complementària a la cirurgia i, donada la poca especificitat dels agents quimioteràpics, sempre s ha d avaluar que les dosis emprades siguin més beneficioses per a la destrucció de les cèl·lules tumorals que els seus efectes secundaris tòxics sobre les cèl·lules normals. Aquests fàrmacs quimioteràpics pertanyen a dos grups: els que actuen sobre la molècula de DNA, inhibint-ne la síntesi, i els que actuen sobre components citoplasmàtics, com el citoesquelet o els microtúbuls, inhibint la divisió cel·lular. El major inconvenient de la quimioteràpia és que les cèl·lules tumorals amb el temps es fan resistents a l acció d aquests agents quimioteràpics i, per tant, això condueix a la pèrdua de l eficàcia d aquests tractaments i a l aparició d un tumor ara resistent a aquest tipus de fàrmacs. L hormonoteràpia s empra en alguns tipus de càncers on s ha observat un efecte hormonal sobre la progressió tumoral. Això ocorre, per exemple, en els càncers de mama i pròstata, on els estrògens i andrògens actuen com a promotors tumorals augmentant la proliferació de les cèl·lules tumorals. La teràpia consisteix en l administració d agonistes dèbils que redueixen els efectes de l hormona; més recentment, s estan utilitzant antagonistes per bloquejar completament la resposta hormonal. Com en el cas de la quimioteràpia, aquests tractaments tenen inconvenients citotòxics secundaris i els seus efectes són transitoris perquè les cèl·lules tumorals amb el temps es fan resistents a aquests fàrmacs.
PRESENT I FUTUR DE LA BIOLOGIA DEL CÀNCER Desprès de descriure breument la gran complexitat de factors involucrats en el càncer, podem constatar que en la gènesi i desenvolupament d aquesta malaltia estan involucrats els mecanismes moleculars que són necessaris per a la viabilitat cel·lular. Per aquesta raó, la curació del càncer és molt difícil, si no impossible, ja que encara que es poguessin identificar i eliminar tots els factors de risc externs (tàbac, dieta...) encara quedaria un factor intern impossible d eliminar, que és la nostra naturalesa multicel·lular. Aquesta naturalesa és una font d errors o mutacions deguts a la necessària replicació cel·lular per poder viure. Algunes d aquestes mutacions les heretem de pares a fills (síndromes hereditàries) i altres simplement les anem adquirint durant la nostra pròpia existència. A més edat, major nombre de mutacions i, per tant, la possibilitat de patir càncer augmenta amb l esperança de vida. És per això que hauríem d aprendre a viure amb aquesta malatia i dirigir els nostres esforços a controlar-la. Per poder viure amb càncer, és del tot necessària una teràpia anticancerosa amb fàrmacs apropiats. Malgrat el gran avenç científic que s ha fet en els darrers anys en aquest camp, actualment no disposem de tractaments suficientment eficaços contra el càncer. Fins fa poc temps, la manera de trobar un fàrmac amb propietats anticanceroses es basava en la cerca (screening), moltes vagades a l atzar, de substàncies químiques que tinguessin la capacitat d inhibir la proliferació cel·lular de línies tumorals (assajos de citotoxicitat). D aquesta manera es van trobar inhibidors genèrics de la síntesis d àcids nuclèics (DNA i RNA) i inhibidors de la divisió cel·lular, prèviament esmentats. Actualment, els coneixements adquirits sobre els mecanismes d acció de protooncogens, gens supressors i gens de re-
160 J. L. ROSA I F. VENTURA
paració del DNA permeten la cerca més selectiva i planificada d agents terapèutics més específics i menys tòxics que actuïn sobre aquests gens o les vies on estan implicats. Fruit d aquest treball són una sèrie d agents desenvolupats per diferents companyies farmacèutiques que ja s estan utilitzant en assajos clínics i formaran part de les teràpies del futur. Alguns d aquests nous agents quimioterapèutics son: anticossos que bloquegen els receptors específics de factors de creixement com HER2 (càncer de mama) o EGF (càncers de ronyó, pròstata, mama, cap i coll); inhibidors de tirosina quinases que inhibeixen receptors de factors de creixement com EGF o PDGF (gliomes); inhibidors de la farnesiltransferasa que inhibeixen l activitat de Ras (mutat en el 30 % dels tumors); inhibidors de quinases depenents de ciclines (CDK) que bloquegen el cicle cel·lular (diferents tumors); seqüències nucleotídiques de RNA complementàries (antisenses) de bcl-2 per disminuir l expressio d aquesta proteïna i restablir l apoptosi cel·lular (limfomes i altres tumors); virus recombinants amb p53 per restablir la pèrdua d activitat d aquesta proteïna supressora de tumors (mutada en el 50 % dels tumors); adenovirus dissenyats per matar selectivament cèl·lules en les quals p53 no és funcional (cèl·lules tumorals). Com podem veure, les teràpies anticanceroses del futur (anticossos, antisenses, virus, inhibidors específics...) es basen en el coneixement adquirit de la biologia molecular i cel·lular del càncer i és per això que hem de continuar augmentant aquest coneixement bàsic per a poder en un futur, si no eradicar, sí com a mínim controlar el càncer. Observant la investigació feta sobre el càncer en els darrers vint anys, podem concloure que hem augmentat molt el nostre coneixement sobre aquesta malaltia. Avui coneixem factors que la poden originar, mecanismes moleculars i cel·lulars implicats en el seu origen i progressió, gens
reguladors de la proliferació cel·lular la mutació dels quals està relacionada amb processos cancerígens i que a vegades s utilitzen com a marcadors d estadis de la progressió tumoral, fàrmacs que inhibeixen processos bàsics de la divisió cel·lular... Aquests estudis que hem anat enumerant en aquest article ens permeten extreure moltes consideracions i ens agradaria destacar les següents com a conclusions: 1) la millor manera de combatre el càncer consisteix en evitar els factors de risc, ja que la majoria són evitables i, per tant, la identificació de nous factors de risc (estudis epidemiològics) i les campanyes de concienciació de la població (conferències, premsa, ràdio, televisió...) sobre els efectes d hàbits inadequats són de màxima necessitat; 2) la detecció precoç és vital per a una teràpia més efectiva i, per aquesta raó, el coneixement dels gens involucrats (protooncogens, gens supressors, gens de reparació) i les seves formes mutades relacionades amb processos cancerígens és imprescindible per detectar els tumors (utilitzant tècniques com la de la reacció en cadena de la polimerasa, PCR) en els primers estadis, per seguir l evolució tumoral, i per a la identificació de predisposició genètica a contreure alguns tipus de càncer; 3) el càncer com a malaltia possiblement sigui impossible d eradicar perquè està associat a la nostra pròpia naturalesa multicel·lular; 4) el coneixement dels mecanismes moleculars i cel·lulars és fonamental per al disseny de noves teràpies que en un futur no molt allunyat ens permetin morir amb aquesta malaltia però no d aquesta malaltia. AGRAÏMENTS Els autors agraeixen l ajuda rebuda del Dr. Ramon Bartrons i de Cristina Cruz en l elaboració d aquest article. Els estudis realitzats per aquest grup estan subvencionats
BIOLOGIA DEL CÀNCER 161
pel Ministerio de Educación y Ciencia (SAF98-0129 i PM-0171) i la Generalitat de Catalunya (97SGR-74).
BIBLIOGRAFIA BAILAR, J. C.; H. L. GORNIK (1997). «Cancer Undefeated». New England Journal of Medicine, núm. 336, pàg. 1569-1574. BARINAGA, M. (1997). «From Bench Top to Bedside». Science, núm. 278, pàg. 1036-1039. BISHOP, J. M. (1997). «Cancer: What Should Be Done?». Science, núm. 278, pàg. 995. FEARON, E. R. (1997). «Human Cancer Syndromes: Clues to the Origin and Nature of Cancer». Science, núm. 278, pàg. 1043-1050. HARTWELL, L. H.; P. SZANKASI; C. J. ROBERTS; A. W. MURRAY; S. H. FRIEND (1997). «Integrating Genetic Approaches into Discovery of Anticancer Drugs». Science, núm. 278, pàg. 1064-1068.
HONG, W. K.; M. B. SPORN (1997). «Recent Advances in Chemoprevention of Cancer». Science, núm. 278, pàg. 1073-1077. HUNTER, T. (1997). «Oncoprotein Networks». Cell, núm. 88, pàg. 333-346. KRAMER, B. S.; R. D. KLAUSNER (1997). «Grappling with Cancer Defeatism versus the Reality of Progress». New England Journal of Medicine, núm. 337, pàg. 931-4 i 937-938. MASSAGUÉ, J. (1998). «TGF-b Signal Transduction». Annual Review of Biochemistry, núm. 67, pàg. 753-791. MUÑOZ, A. (1997). Cáncer. Genes y Nuevas Terapias. Ed. Hélice. PERERA, F. P. (1997). «Environment and Cancer: Who Are Susceptible?». Science, núm. 278, pàg. 1068-1073. PERUCHO, M. (1998). «Cáncer del fenotipo mutador de microsatélites». Investigación y Ciencia, (juny), pàg. 46-55. PONDER, B. (1997). «Genetic Testing for Cancer Risk». Science, núm. 278, pàg. 1049-1054. SIDRANSKY, D. (1997). «Nucleic Acid-Based Methods for the Detection of Cancer». Science, núm. 278, pàg. 1054-1058.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 163-172
GENÒMICA FUNCIONAL: L EXEMPLE DEL LLEVAT JOSEP VILARDELL Departament de Biologia Cel·lular. Albert Einstein College of Medicine. EUA. Adreça per a la correspondència: Department of Cell Biology, Albert Einstein College of Medicine, 1300 Morris Park Av., The Bronx, NY10461, Estats Units. Adreça electrònica: vilardel@aecom.yu.edu
INTRODUCCIÓ Fa més de cent anys, des que es van començar a definir les bases de la biologia, que els científics fan servir els anomenats organismes model per a estudiar els mecanismes de fenòmens biològics fonamentals, com ara el desenvolupament o l herència genètica, mecanismes que, com s ha anat veient amb els anys, han estat força conservats durant l evolució. Les raons per les quals un determinat organisme esdevé un model són diverses. Avantatges de tipus pràctic, com ara duració del cicle biològic, facilitat de cultiu, o possibilitat d interpretació dels resultats obtinguts, han estat sens dubte les més importants; tot i que factors comercials o de proximitat evolutiva a la nostra espècie han prevalgut en altres casos. Amb la revolució científica que ha estat el desenvolupament de la biologia molecular, els investigadors han seguit emprant organismes model per a estudiar els mecanismes fonamentals de l expressió gènica. Molts dels gens estu-
diats tenen homòlegs en humans, i possiblement tinguin funcions similars. Fa uns deu anys, en un nou episodi d aquesta revolució, es van iniciar projectes de seqüenciació de genomes sencers, alguns ja complets en l actualitat. Una nova branca de la biologia, la genòmica, de l anglès Genomics, es dedica exclusivament a l estudi funcional i estructural dels genomes. (El terme genome va ésser emprat per primer cop el 1920 per H. Winkler, i prové de la fusió de les paraules gene i chromosome; Genomics va ser proposat el 1986 per T. R. Roderick [McKusick, 1997]). Si es té en compte, per exemple, que hi ha al voltant de quatre mil malalties degudes a disfuncions d un gen en particular (Gelehrter et al. 1998) i que molts dels problemes de salut actuals tenen un fort component poligènic (hipertensió, càncer, obesitat, desequilibris psíquics, etc.) la importància de l estudi de la funció del genoma esdevé òbvia. Com s ha dit, el fet que tots els organismes tinguin una història evolutiva compar-
164 J. VILARDELL
tida és el motiu clau que fa útil l estudi dels organismes model. D altra banda, disposar de més d un model és necessari ja que, generalment, les aproximacions experimentals i la informació obtinguda són diferents i, per tant, complementàries. Afortunadament, aquest fet es va reconèixer en l estratègia dissenyada per a seqüenciar el genoma humà i es van incloure com a fites importants l obtenció de les seqüències de diversos organismes model, com ara (entre altres) Escherichia coli, Saccharomyces cerevisiae, Drosophila melanogaster, Caenorhabditis elegans, Arabidopsis thaliana i Mus musculus. EL PROJECTE GENOMA DE LLEVAT El projecte per a seqüenciar el genoma de llevat (Saccharomyces cerevisiae) va ésser iniciat per investigadors europeus el 1989. La idea inicial es basava en la coordinació dels laboratoris europeus amb potencial per a dur a terme el projecte, més que en la creació de nous i costosos centres (Dujon, 1996). L èxit inicial, amb el treball sobre el cromosoma III, va fer que el projecte s expandís ràpidament. La seqüència sencera del genoma de llevat, de 12.052 kb (el genoma humà, en comparació, té 3.000.000 kb), es va dipositar als bancs de dades internacionals l abril de 1996 (http://genome-www.stanford.edu/Saccharomyces) i va resultar de l esforç coordinat de més de sis-cents científics, distribuïts en més de cent laboratoris arreu del món. Europa va contribuir amb un 72 % de la seqüència (Sanger Centre, Anglaterra, 17 %), els EUA amb un 22 % (Washington University, 15 %; Stanford University, 7 %), el Canadà (McGill University) amb un 4 % i el Japó amb un 2 % (RIKEN University). L error és molt baix, al voltant d una base per cada 10.000 (Hieter et al., 1996). El genoma de llevat és força compacte, amb una mitjana d un gen cada 2 kb, i un 70 % del DNA codifi-
cant proteïnes. Deixant de banda els gens del rRNA (1-2 Mb), la resta del genoma conté uns sis mil gens, dels quals uns 2.300 (al voltant d un 40 % del total) havien estat identificats prèviament pels mètodes genètics tradicionals. De la resta de les 3.700 proteïnes (normalment es parla de pautes de lectura obertes o ORF, open reading frames) predites, 2.300 no tenien cap similitud amb proteïnes identificades prèviament en altres organismes (tot i que aquestes ORF òrfenes poden contenir dominis típics, codificant, per exemple, regions transmembrana, de localització subcel·lular, etc., informació a tenir en compte en futures anàlisis). Aquest darrer descobriment va generar la recerca de mètodes sistemàtics per a determinar la possible funció d aquests nous gens (Oliver, 1996b). La llargada mitjana de les ORF és de 1.450 pb, o 483 codons. L ORF més llarga, de funció desconeguda, conté 4.910 codons, tot i que la gran majoria d ORF no sobrepassen els 1.500 codons. Es fa difícil predir quin és el gen més petit, però, com a exemple, el gen RPL41 té una ORF de 26 codons, que codifica la proteïna ribosomal L41, de 24 aminoàcids. (Més informació sobre ORF es pot trobar a http://www.mips.biochem.mpg.de i a http://www.proteome.com). El genoma de llevat conté regions amb duplicacions i altres ordenacions dels gens (Mewes, 1997; Eisen et al., 1998; http://rana.stanford. edu/ clustering) que són força interessants des d un punt de vista evolutiu, si més no, i que apunten a l atractiva possibilitat d una duplicació ancestral de tot el genoma del llevat (Wolfe i Shields, 1997). EL GENOMA DE LLEVAT: RELLEVÀNCIA Una qüestió a què és difícil escapar és la rellevància que té el conèixer la seqüència completa del genoma de Saccharomyces cere-
GENÒMICA FUNCIONAL: L'EXEMPLE DEL LLEVAT 165
visiae, sobretot per a l anàlisi dels organismes multicel·lulars. Tot i que els beneficiats més immediats han estat els investigadors de llevat, aquesta informació ha estat igualment valuosa per a la recerca en organismes multicel·lulars, i ja ha accelerat el ritme dels descobriments biològics en general. Per exemple, la seqüència d una nova proteïna d un organisme multicel·lular eucariota pot emprar-se per fer una cerca de la seva contrapartida (o l homòleg més proper en la família) en llevat. El fet de tenir tota la seqüència genòmica del darrer permet que la cerca es faci sense ambigüitats, ja que es trobaran totes les seqüències relacionades, i es pot seleccionar la d homologia més gran. Quan la proteïna original prové d organismes evolutivament allunyats del llevat (com acostuma a ésser el cas) el fet de disposar de tot el genoma és vital, ja que homologies subtils esdevenen molt més convincents. A més, sabent que la cerca és entre totes les proteïnes que especifiquen una cèl·lula eucariota, les dades que es puguin obtenir de l homòleg de llevat poden aportar informació molt valuosa per a entendre un determinat fenotip o una determinada funció gènica en l organisme original. Addicionalment, el fet de disposar d un homòleg en llevat proveeix un excepcional paradigma experimental per a continuar les anàlisis. El llevat és un organisme model amb un gran potencial, demostrat innombrables vegades, per a conèixer en profunditat la funció de gens que intervenen en els mecanismes biològics intracel·lulars. També ha estat d utilitat en el desxiframent de mecanismes tan allunyats com són, per exemple, la transmissió de senyal dels receptors nerviosos (Koelle i Horvitz, 1996). La recerca en llevat, sobretot en biologia molecular, combina la genètica clàssica (aïllament i anàlisi fenotípica de mutants) amb la bioquímica i tècniques de DNA recombinant, manipulant segments de DNA clonats i reintroduint-los
als llocs homòlegs dins el genoma de llevat (la freqüència de recombinació homòloga en llevat es prou elevada per a fer aquests tipus d experiments de manera més senzilla i ràpida que en la gran majoria d altres sistemes model; Rothstein, 1983). Aquests mètodes han permès l associació directa entre mutacions definides i fenotips concrets, tant in vivo com in vitro. El progrés recent en el camp de les malalties genètiques ha servit també per a evidenciar l impacte que té en aquesta àrea el disposar de la seqüència del genoma de llevat. S ha pogut avançar molt en la comprensió de la funció d alguns gens humans relacionats amb malalties hereditàries gràcies a llur homologia amb gens de llevat de funció coneguda. Aquesta situació permet també la utilització del llevat com a model per a l estudi de la funció dels gens involucrats. En alguns casos afortunats, el gen humà, expressat en llevat, complementa certes mutacions en el corresponent gen ortòleg de llevat, permetent un estudi de tipus estructural i funcional exhaustiu. El benefici és prou important com per a dissenyar soques de llevat especials per a poder expressar amb èxit gens d altres organismes. Per exemple, en alguns casos ha estat necessària la substitució de certs components d estructures multiproteiques de llevat perquè tinguin lloc les interaccions necessàries amb el nou gen exogen, amb el qual han coevolucionat (Hieter et al., 1996). D altra banda, a causa del major nombre de gens humans (uns 80.000 mentre que són 6.000 en el llevat, tot i que el genoma humà es dos-cents cops més gran), hi ha la possibilitat que certs gens no tinguin homòlegs en llevat. Tanmateix, en aquests casos el gen pot estar relacionat amb un gen de llevat pel fet de ser ambdós membres de la mateixa família de proteïnes, amb funcions anàlogues però no idèntiques i pot ésser possible el modificar cert procés cel·lular per fer-lo més adient.
166 J. VILARDELL
Aquesta tècnica ja fa temps que s empra amb èxit. Per exemple, reemplaçant els gens de llevat que intervenen en els primers passos de la resposta a feromones per certs gens humans, es va aconseguir que el llevat respongués a una molècula específica pròpia d humans (King et al., 1990). Aquest tipus de dissenys experimentals proporcionen sistemes per a les anàlisis de les interaccions receptor-lligand, o per a screenings especials (on es crivella un nombre molt gran de possibles candidats) emprats en la recerca de nous fàrmacs (Broach i Thorner, 1996), aspecte que està essent aprofitat per moltes companyies farmacèutiques. Encara no és possible determinar quants gens humans tindran homòlegs en llevat, però els casos identificats ja representen un grup significatiu. Per exemple, els gens responsables de l atàxia-telangièctasi (ATM [Morrow et al., 1995]) i la síndrome de Bloom (BLM [Ellis et al., 1995]) tenen una similitud de seqüència significativa amb els gens MEC1 i SGS1 de llevat, respectivament. Al cromosoma XI hi ha un gen homòleg del responsable, en humans, de l adreno-leucodistròfia, mentre que un altre comparteix una sèrie de dominis amb el gen responsable de la fibrosi quística (Dujon et al., 1994). La proliferació de seqüències provinents d organismes model ha estat útil per al mapatge de gens humans responsables de malalties. El projecte XREF (Bassett et al., 1995; http://www.ncbi.nlm.nih.com/ XREFdb) es dedica al mapatge sistemàtic d EST en humans (fragments de seqüència expressada o expressed sequence tags [Adams et al., 1991] que ja representen més d un 50 % dels gens humans) que presenten algunes similituds significatives amb seqüències d organismes model. D aquesta manera es relacionen funcions de proteïnes d organismes model amb posicions del mapa genètic humà. Això permet aplicar tècniques basades en el clonatge posicional per a tractar
d identificar gens responsables de malalties que estiguin localitzats en la mateixa regió del genoma. Un exemple d aquesta estratègia va ésser el clonatge del gen humà hMLH1, responsable de certes formes hereditàries de càncer de còlon i que és homòleg del gen de llevat MLH1 (Bronner et al., 1994; Papadopoulos et al., 1994). Una altra tècnica per a la cerca d homòlegs en llevat de gens humans relacionats amb malalties es coneix com sondeig per homologia (homology probing [Yahraus et al., 1995; Braverman et al., 1997]). Les eines inicials són també el genoma de l organisme model (llevat en aquest cas) i el banc d EST humanes. El procediment comença amb la identificació d un procés o via bioquímica defectuosa que causa la malaltia. Seguidament tots els gens que participen en la via són identificats en llevat, el que permet fer una cerca al banc d EST per a possibles homòlegs, els quals permetran identificar gens humans candidats com a responsables de la malaltia. Seguint aquest esquema s han pogut clonar els gens humans involucrats en la biosíntesi del peroxisoma i responsables dels defectes hereditaris lligats a aquest procés, com ara la síndrome de Zellweger. Finalment, el llevat també pot emprar-se com una eina de screening per a descobrir nous gens en altres organismes, ja que alguns dels mutants es poden complementar amb llibreries de cDNA heteròlogues. Addicionalment, el fet de disposar de tota la seqüència del genoma de llevat permet crear, per genètica reversa, molts més mutants en aquells gens que fins ara havien escapat de les tècniques tradicionals de genètica. Genòmica funcional al llevat Els diferents projectes de seqüenciació de genomes estan prou avançats (o fins i tot acabats, com el de llevat [http://genomewww.stanford.edu/Saccharomyces] o de
GENÒMICA FUNCIONAL: L'EXEMPLE DEL LLEVAT 167
Caenorhabditis elegans [The C. elegans Sequencing Consortium, 1998; http://genome. wustl.edu/gsc/C_elegans i http://www. sanger.ac.uk/Projects/C_elegans]) com perquè la genòmica, estigui en forta expansió i es comenci a parlar de diferents subdisciplines (Hieter i Boguski, 1997; McKusick, 1997). La genòmica estructural s ocupa de la fase inicial de l anàlisi d un genoma, amb el mapatge, seqüenciació, etc., fins a obtenir la seqüència sencera del DNA que forma el genoma de l organisme (també hi ha qui assigna el terme genòmica estructural a l estudi de l estructura de les proteïnes codificades per un genoma sencer [Sung-Hou, 1998]). La genòmica comparativa es centra en l anàlisi de la distribució de la informació en els genomes i en la comparació d aquesta distribució entre genomes de diferents organismes. Per exemple, se sap que certes regions cromosòmiques tenen una distribució de gens conservada entre espècies relativament allunyades, com ara ratolins i humans, i això pot ésser de força utilitat a l hora de mapar gens responsables de malalties. A vegades, la genòmica comparativa és bàsicament una primera anàlisi de les dades que es van recopilant durant les diferents fases de la genòmica estructural, que pot començar, tot i que no sempre és així (Beardsley, 1998), amb un mapatge exhaustiu del genoma. La genòmica funcional representa una nova fase en l anàlisi dels genomes, amb un gran potencial per a la producció d un gran volum d informació, de molta novetat, que està revolucionant la recerca en sistemes biològics. Al mateix temps, però, s està requerint un gran esforç intel·lectual de cara a fer un ús efectiu de la gran quantitat de dades aportades per la genòmica estructural. En concret, la genòmica funcional es centra en el desenvolupament i aplicació de tècniques experimentals per a estudiar i identificar la funció dels genomes, fent ús de la in-
formació que prové de la genòmica estructural. En altres paraules, la genòmica funcional estudia els patrons d activitat del genoma. L estratègia fonamental és expandir l abast de la recerca en biologia, passant de l estudi de gens i proteïnes individuals, a un estudi global de grans col·leccions de gens al mateix temps, de manera sistemàtica i en el context del genoma on es troben. Les aproximacions experimentals acostumen a generar quantitats ingents de dades, de manera que calen anàlisis estadístiques i computacionals, que poden exigir més feina que no pas l experiment en sí, però que estan produint tota una sèrie de descobriments importants i a vegades inesperats. La biologia computacional té doncs també un nou paper. Fins ara, en la genòmica estructural, es feia necessari l ús d ordinadors per al maneig de grans quantitats de dades; ara cal anar un pas més enllà i extreure informació que pot estar soterrada o camuflada. Els primers resultats semblen confirmar l esperança que la genòmica funcional faci més petita la separació entre seqüència i funció, com també que faci possible l estudi del comportament dels sistemes biològics. El llevat va força per davant en el camp de la genòmica funcional, i és, de fet, el model que millor està mostrant el seu potencial. Fins i tot abans que s hagués completat la seqüència del seu genoma ja es va crear un sistema per a la detecció i anàlisi de gens presents en seqüències de DNA clonades a l atzar. Aquest sistema es basa en l estudi, per electroforesi de proteïnes en dues dimensions, del patró de proteïnes expressades en soques de llevat transformades amb plasmidis multicòpia que contenen el DNA que s investiga (Thoraval et al., 1990). Un dels primers projectes que es va dur a terme un cop desxifrat tot el genoma de llevat va ésser la creació d un banc de soques, cadascuna amb un gen delecionat (Oliver, 1996a). Un altre ha estat el de substituir cada ORF
168 J. VILARDELL
per oligonucleòtids específics, que poden detectar-se per PCR o DNA microarray (explicat més endavant) en experiments encaminats a detectar soques que sobreviuen en certes condicions (Shoemaker et al., 1996). Aquests bancs estan disponibles per a tots els investigadors que ho desitgin. Quant a l anàlisi de les poblacions de mRNA s han ideat tres mètodes per a recopilar recopilar dades: els xips d oligonucleòtids (Fodor et al., 1993; Hacia et al., 1998), els DNA microarrays (Schena et al., 1995, 1998) i SAGE (Serial Analysis of Gene Expression, o anàlisi en sèrie de l expressió gènica [Velculescu et al., 1995, 1997]). Els xips d oligonucleòtids es basen en la combinació de tecnologies per a semicondutors (fotolitografia) i de síntesi química de DNA, fent possible la síntesi de milers d oligonucleòtids (oligos) de manera ordenada i controlada, damunt d un suport, generalment vidre. Els principals avantatges rauen en el control precís de la seqüència dels oligos que es fan servir i en la possibilitat de fer la síntesi directament sobre el suport, evitant així els problemes que comporta la preparació i manipulació de mostres. Un altre avantatge que cal tenir en compte es l estandardització, amb un mínim de variació entre xips, gràcies a l optimització de cada cicle en la síntesi dels oligos. El principal desavantatge és l alt cost dels xips ja que la síntesi basada en la fotolitografia requereix la fabricació d una sèrie de platines especials que permeten especificar les seqüències dels oligos del xip (Fodor et al., 1993). Un cop sintetitzat el xip (els científics que van desenvolupar la tecnologia Fodor i col·legues han creat la companyia que gairebé té el monopoli de la seva producció: Affymetrix, a Santa Clara, Califòrnia), aquest s hibrida amb una població de cDNA que s ha marcat convenientment, generalment amb un marcador fluorescent, i el resultat de la hibridació s analitza amb
un equipament força sofisticat, basat en un làser i un lector que escombren totes les posicions del xip. L estudi correcte de les dades obtingudes necessita també d un programari adient. Emprant aquesta tecnologia s han dut a terme estudis, entre altres, de l expressió de tot el genoma de llevat sota diferents condicions. Darrerament s ha realitzat un experiment molt interessant amb la finalitat d identificar la relació de dependència entre els gens i els components essencials de la maquinària transcripcional del llevat (Holstege et al., 1998 i http:// www.wi.mit.edu/young/expression.html), i s ha trobat que hi ha grups de gens amb diferent resposta a cada un dels elements de la maquinària basal necessària per a l inici de la transcripció. Aquests resultats revelen un important i inesperat nivell de regulació transcripcional, en addició als sistemes de regulació basats en factors de transcripció específics de gens o grups de gens. A més, es demostra que algunes vies de transducció de senyal poden actuar directament sobre maquinària d iniciació de la transcripció. Malgrat l enorme potencial d aquesta tècnica, el cost la manté encara fora de l abast de molts laboratoris de recerca (de fet, molts dels que la fan servir ho fan a través de col·laboracions amb les companyies que manufacturen els xips). Tanmateix, també té utilitats de diagnòstic, com ara la cerca de certes mutacions o patrons d expressió típics de certes malalties. Actualment els xips d Affymetrix contenen uns 400.000 oligos en una àrea d uns 1,6 cm2 (Schena et al., 1998). La filosofia dels microarrays de DNA és molt semblant a la dels xips d oligos. La principal diferència és que els fragments de DNA (generalment productes de PCR) no es sintetitzen sobre el suport, sinó que es sintetitza primer cada fragment per separat per després fixar-lo en una posició determinada al suport. El cost és molt inferior al
GENÒMICA FUNCIONAL: L'EXEMPLE DEL LLEVAT 169
dels xips d oligos, però l estandardització és molt més difícil i la densitat de seqüències per unitat de superfície pot ésser de deu a cent cops menor (Schena et al., 1998). L estratègia més comuna, si més no en el cas del llevat (que, com s ha dit, fins al desembre del 1998 era l únic eucariota totalment seqüenciat) consisteix en fer una PCR de cada gen que s estudia (unes sis mil si es fa una anàlisi del genoma sencer) fent servir encebadors (primers) comercials i un procés automatitzat, i després fixar el producte en un suport de vidre, generalment un portaobjectes de microscòpia òptica. En un array de 18x18 mm es pot tenir representat tot el genoma de llevat (DeRisi et al., 1997). Com en els xips d oligos, l array s hibrida a una mostra de cDNA marcada convenientment i el grau d hibridació es mesura emprant procediments sofisticats de densitometria i anàlisi d imatges per ordinador, anàlegs als emprats en el cas dels xips d oligos. Emprant marcatges diferencials de cDNA sintetitzats a partit de RNA aïllats en diferents condicions (per exemple, el pas de metabolisme fermentatiu al respiratori), es pot detectar quins gens s indueixen i/o reprimeixen. Com amb els xips d oligos, es pot estudiar el patró d expressió global de tot el genoma sencer, si més no per estimar l acumulació de mRNA. A part de la resposta genòmica als canvis metabòlics (DeRisi et al., 1997), s han dut a terme també estudis molt interessants del comportament del genoma durant la mitosi, l esporulació, els canvis de temperatura i la transició de metabolisme fermentatiu a respiratori. Aquest tipus d experiment, impensable fa pocs anys, ha permès, a més, d organitzar el genoma en grups d expressió gènica (cluster analysis). Els resultats d aquest estudi, realitzat per Eisen et al., (1998) són també accessibles a http://rana.stanford.edu/clustering/serum.html, on la magnitud de la informació disponible per als investigadors serveix per
a evidenciar, entre altres coses, la revolució científica que estem vivint. A diferència dels sistemes anteriors, basats en hibridacions de sondes a una alta densitat de molècules fixades sobre un suport sòlid, el SAGE analitza quantitativament una determinada població de transcrits (Velculescu et al., 1997). La finalitat del SAGE és una quantificació de l expressió genòmica, referida al nombre de missatgers de cada gen en cada cèl·lula, definint el que els autors anomenen el transcriptoma (de l anglès transcriptome), en contraposició a genoma. (També existeix el proteome [http:// www.proteome.com], una base de dades privada, que proveeix informació sobre les proteïnes d organismes ben caracteritzats genèticament, com és el cas del llevat). El transcriptoma d un genoma estaria definit pels gens transcrits sota certes condicions que s estudien. Per desxifrar el contingut del transcriptoma, es sintetitzen seqüències curtes (9-11 pb) de cDNA, corresponent cadascuna a un transcrit. Aquestes seqüències etiqueta (tags), es concatenen posteriorment per a ésser seqüenciades. De la seqüència es dedueix l abundància de cada tag individual, de la qual es pot calcular la freqüència de cada mRNA. En concret, els pioners de la tècnica, Velculescu i col·laboradors (1997), van analitzar el transcriptoma de llevat sota diferents períodes del cicle cel·lular. Per a això van aïllar les poblacions de mRNA corresponents i, després de sintetitzar cDNA marcat amb biotina en un extrem, van purificar fragments curts (els tags) corresponents a la zona 3 de dels missatgers, mitjantçant l ús d enzims de restricció, i els van concatenar i seqüenciar. Els períodes estudiats van ésser la fase exponencial de creixement, cèl·lules parades en la fase S i cèl·lules parades a la fase G2/M. Es va descobrir que en cada fase, al voltant d un 75 % de tots els gens (coneguts i predits) s està expressant, mentre que el nombre de còpies per cèl·lula oscil·la entre
170 J. VILARDELL
menys de 0,3 (el límit de l assaig) i dues-centes còpies. Curiosament, dins del grup dels gens altament expressats (mes de seixanta còpies de missatger per cèl·lula), hi ha tres ORF que corresponen a gens desconeguts (tot i que una d elles s havia postulat, durant l anàlisi genòmica, que codifica una proteïna ribosomal desconeguda). Es va observar que la majoria de gens estan representats per una o dues còpies per cèl·lula. Això implica que alguns gens constitutius es transcriurien menys d un cop per generació, si es té en compte la vida mitjana dels seus mRNA. Una altra observació va ser que menys d un 1 % dels components de cada transcriptoma és afectat extraordinàriament per un canvi en les condicions. Aquests resultats van obrir una nova perspectiva en l estudi del llevat. La possibilitat de definir transcriptomes en llevat va donar peu a intentar el mateix en humans, on un experiment similar, basat en el banc d EST, s ha dut a terme per a l estudi de transcriptomes relacionats amb càncer (Zhang et al., 1997). Fins ara s han descrit mètodes per a l anàlisi de la funció genòmica analitzant un producte de la seva expressió, l RNA missatger. Tanmateix, el llevat ofereix la possibilitat de l estudi de les interaccions del següent producte, les proteïnes. Aquesta anàlisi es basa en l assaig dels dos híbrids (traduït també com doble híbrid, però generalment conegut pel seu nom anglès, two hybrid; Bartel i Fields, 1995). S ha iniciat el projecte d una anàlisi exhaustiva dels divuit milions de combinacions possibles (Hudson et al., 1997), i en aquest aspecte val a dir que les noves tècniques de microseqüenciació de proteïnes, de gels de dues dimensions d alta resolució i d espectroscòpia de masses (espectroscòpia nano-electrospray, Wilm et al., 1996; McCormack et al., 1997) estan sent emprades en l assignació de pèptids a gens específics, sense ambigüitats, en el context de tota la seqüència del genoma. Una
qüestió interessant que es planteja es la relació entre els grups de proteïnes que possiblement interaccionen entre elles i els clusters d expressió gènica que s han observat en els estudis descrits anteriorment. CONCLUSIÓ La genòmica funcional està beneficiant de dues maneres les aproximacions tradicionals als problemes biològics. Primer, les fa més productives i eficients. Segon, les complementa, donant una visió globalitzadora dels sistemes biològics com les entitats que són. Tot i que s ha afegit una nova dimensió a la biologia, el coneixement detallat dels mecanismes biològics continuarà necessitant de la genètica, bioquímica, biologia cel·lular i estudis estructurals clàssics. S ha afegit una nova dimensió a la biologia, però no se n ha eliminat cap. En general, les dades proporcionades per la genòmica han de proporcionar el marc de treball per a continuar amb anàlisis més particulars. Nogensmenys, s està vivint una revolució científica. La genòmica funcional, amb la seqüència dels genomes de molts organismes (incloent-hi l humà) està canviant la manera de fer recerca en biologia. Moltes disciplines comencen a replantejar-se llurs estratègies experimentals per a adaptar-se a la nova escala genòmica. Noves tècniques s han posat a punt o s estan desenvolupant ràpidament. Es tracta de tècniques potents i que treballen amb un volum de dades que tot just comencem a assimilar. Cal adaptar el rigor del mètode científic per a poder avaluar, de manera fiable, la ingent quantitat d informació que s està generant. No és estrany trobar que el format tradicional de l article científic ja no és suficient per a descriure els resultats amb exactitud, i és possible que l article vagi acompanyat de referències a bases de dades internacionals
GENÒMICA FUNCIONAL: L'EXEMPLE DEL LLEVAT 171
o a pàgines web on els laboratoris dipositen les dades (Dolinsky et al., 1998). De fet, el problema de l accés a les dades generades no està resolt de manera clara (Eisenberg, 1996). La genòmica estructural ha creat la tradició de fer públics i assequibles a la comunitat científica les noves dades que van apareixent, tradició que s espera que es mantingui, tot i que pot fer-se necessari algun tipus d estandardització (Bloom, 1998). Un efecte, relativament inesperat, de la capacitat de les noves tècniques, és l afavoriment de les col·laboracions entre científics de diferents disciplines o que treballen en diferents sistemes, ja que molts cops és l única manera d abastar el significat de les dades produïdes. El llevat, en si mateix i com a model, està oferint les primeres imatges de cap a on pot dirigir-se el futur. Tanmateix, un dels millors llegats pot ésser el reconeixement del mèrit de fer servir diferents organismes per a resoldre problemes complexos. AGRAÏMENTS Voldria agrair a Jonathan R. Warner (Albert Einstein College of Medicine) els suggeriments i les respostes a qüestions que han anat apareixent durant l escriptura d aquesta revisió; i a Regina Raz (NYU School of Medicine) els suggeriments, la lectura crítica i l edició del manuscrit. BIBLIOGRAFIA ADAMS, M. D.; J. M. KELLEY; J. D. GOCAYNE; M. DUBNICK; M. H. POLYMEROPOULOS; H. XIAO; C. R. MERRIL; A. WU; B. OLDE; R. F. MORENO (1991). «Complementary DNA Sequencing: Expressed Sequence Tags and Human Genome Project». Science, núm. 252, pàg. 1651-1656. BARTEL, P. L.; S. FIELDS (1995). «Analyzing Protein-protein Interactions Using Two-hybrid System». Methods in Enzymology, núm. 254, pàg. 241-263.
BASSETT, D. E. JR.; M. S. BOGUSKI; F. SPENCER; R. REEVES; M. GOEBL; P. HIETER (1995). «Comparative Genomics, Genome Cross-referencing and XREFdb». Trends in Genetics, núm. 11, pàg. 372-373. BEARDSLEY, T. (1998). «An Express Route to the Genome?». Scientific American, núm. 279, pàg. 30-32. BLOOM, F. E. (1998). «Staying Afloat on the Seas of Data». Science, núm. 282, pàg. 1989. BRAVERMAN, N.; G. STEEL; C. OBIE; A. MOSER; H. MOSER; S. J. GOULD; D. VALLE (1997). «Human PEX7 Encodes the Peroxisomal PTS2 Receptor and is Responsible for Rhizomelic Chondrodysplasia Punctata». Nature Genetics, núm. 15, pàg. 369-376. BROACH, J.; J. THORNER (1996). «High-throughput Screening for Drug Discovery». Nature, núm. 384 (suplement 6604), pàg. 14-16. BRONNER, C. E.; S. M. BAKER; P. T. MORRISON; G. WARREN; L. G. SMITH; M. K. LESCOE; M. KANE; C. EARABINO; J. LIPFORD; A. LINDBLOM (1994). «Mutation in the DNA Mismatch Repair gene Homologue hMLH1 is Associated with Hereditary Non-polyposis Colon Cancer». Nature, núm. 368, pàg. 258-261. DE RISI, J. L.; V. R. IYER; P. O. BROWN (1997). «Exploring the Metabolic and Genetic Control of Gene Expression on a Genomic Scale». Science, núm. 278, pàg. 680-686. DOLINSKI, K.; C. A. BALL; S. A. CHERVITZ; S. S. DWIGHT; M. A. HARRIS; S. ROBERTS; T. ROE; J. M. CHERRY; D. BOTSTEIN (1988). «Expanding Yeast Knowledge Online». Yeast, núm. 14, pàg. 1453-1469. DUJON, B.; D. ALEXANDRAKI; B. ANDRE; W. ANSORGE; V. BALADRON; J. P. BALLESTA; A. BANREVI; P. A. BOLLE; M. BOLOTIN-FUKUHARA; P. BOSSIER (1994). «Complete DNA Sequence of Yeast Chromosome XI». Nature, núm. 369, pàg. 371-378. DUJON, B. (1996). «The Yeast Genome Project: What Did We Learn?». Trends in Genetics, núm. 12, pàg. 263-270. EISEN, M. B.; P. T. SPELLMAN; P. O. BROWN; D. BOTSTEIN (1998). «Cluster Analysis and Display of GenomeWide Expression Patterns». Proceedings of the National Academy of Sciences, USA, núm. 95, pàg. 14863-14868. EISENBERG, R. S. (1996). «Intellectual Property Issues in Genomics». Trends in Biotechnology, núm. 14, pàg. 302-307. ELLIS, N. A.; J. GRODEN; T. Z. YE; J. STRAUGHEN; D. J. LENNON; S. CIOCCI; M. PROYTCHEVA; J. GERMAN (1995) «The Bloom s Syndrome Gene Product is Homologous to RecQ Helicases». Cell, núm. 836, pàg. 55-66. FODOR, S. P.; R. P. RAVA; X. C. HUANG; A. C. PEASE; C. P. HOLMES; C. L. ADAMS (1993). «Multiplexed Biochemical Asays with Biological Chips». Nature, núm. 364, pàg. 555-556. GELEHRTER, T. D.; F. S. COLLINS; D. GINSBURG (1998). Principles of Medical Genetics, 2a ed. Baltimore: Williams and Wilkins, pàg. 4. HACIA, J. G.; W. MAKALOWSKI; K. EDGEMON; M. R. ERDOS; C. M. ROBBINS; S. P. FODOR; L. C. BRODY; F. S. COLLINS
172 J. VILARDELL (1998). «Evolutionary Sequence Comparisons Using High-density Oligonucleotide Arrays». Nature Genetics, núm. 18. pàg. 155-158. HIETER, P.; D. E. JR. BASSET; D. VALLE (1996). «The Yeast Genome a Common Currency». Nature Genetics, núm. 13, pàg. 253-255. HIETER, P.; M. BOGUSKI (1997). «Functional Genomics: It s All How You Read It». Science, núm. 278, pàg. 601-602. HOLSTEGE, F. C.; E. G. JENNINGS; J. J. WYRICK; T. I. LEE; C. J. HENGARTNER; M. R. GREEN; T. R. GOLUB; E. S. LANDER; R. A. YOUNG (1988). «Dissecting the Regulatory Circuitry of a Eukaryotic Genome», Cell, núm. 95, pàg. 717-728 [Vegeu també <http://www.wi.mit.edu/ young/ expression.html>]. HUDSON, J. R. JR.; E. P. DAWSON; K. L. RUSHING; C. H. JACKSON; D. LOCKSHON; D. CONOVER; C. LANCIAULT; J. R. HARRIS; S. J. SIMMONS; R. ROTHSTEIN; S. FIELDS (1997). «The Complete Set of Predicted Genes from Saccharomyces cerevisiae in a Readily Usable Form». Genome Research, núm. 7, pàg. 1169-1173. KIM, S. H. (1998). «Shining a Light on Structural Genomics». Nature Structural Biology Synchrotron Supplement, (Agost), pàg. 643-645. KING, K.; H. G. DOHLMAN; J. THORNER; M. G. CARON; R. J. LEFKOWITZ (1990). «Control of Yeast Mating Signal Transduction by a Mammalian Beta 2-adrenergic Receptor and Gs Alpha subunit». Science, núm. 250, pàg 121123 [fe d errates publicada al volum 251, pàg. 144]. KOELLE, M. R.; H. R. HORVITZ (1996). «EGL-10 Regulates G Protein Signaling in the C. elegans Nervous system and Shares a Conserved Domain with Many Mammalian Proteins». Cell, núm. 84, pàg. 115-125. MCCORMACK, A. L.; D. M. SCHIELTZ; B. GOODE; S. YANG; G. BARNES; D. DRUBIN; J. R. 3RD YATES (1997). «Direct Analysis and Identification of Proteins in Mixtures by LC/MS/MS and Database Searching at the Low-femtomole Level». Analytical Chemistry, núm. 69, pàg. 767-776. MCKUSICK, V. A. (1997). «Genomics: Structural and Functional Studies of Genomes». Genomics, núm. 45, pàg. 244-249. MEWES, H. W.; K. ALBERMANN; M. BAHR; D. FRISHMAN; A. GLEISSNER; J. HANI; K. HEUMANN; K. KLEINE; A. MAIERL; S. G. OLIVER; F. PFEIFFER; A. ZOLLNER (1997). «Overview of the Yeast Genome». Nature, núm. 387 (suplement 6632), pàg. 7-65 [fe d errates publicada al volum 387 (suplement 6634), pàg. 737]. MORROW, D. M.; D. A. TAGLE; Y. SHILOH; F. S. COLLINS; P. HIETER (1995). «TEL1, an S. cerevisiae Homolog of the Human Gene Mutated in Ataxia Telangiectasia, is Functionally Related to the Yeast Checkpoint Gene MEC1». Cell, núm. 82, pàg. 831-840. OLIVER, S. (1996a). «A Network Approach to the Systematic Analysis of Yeast Gene Function». Trends in Genetics, núm. 12, pàg. 241-242.
(1996b). «From DNA Sequence to Biological Function». Nature, núm. 379, pàg. 597-600. PAPADOPOULOS, N.; N. C. NICOLAIDES; Y. F. WEI; S. M. RUBEN; K. C. CARTER; C. A. ROSEN; W. A. HASELTINE; R. D. FLEISCHMANN; C. M. FRASER; M. D. ADAMS (1994). «Mutation of a MutL Homolog in Hereditary Colon Cancer». Science, núm. 263, pàg. 1625-1629. ROTHSTEIN, R. J. (1983). «One-step Gene Disruption in Yeast». Methods in Enzymology, núm. 101, pàg. 202211. SCHENA, M.; D. SHALON; R. W. DAVIS; P. O. BROWN (1995). «Quantitative Monitoring of Gene Expression Patterns with a Complementary DNA Microarray». Science, núm. 270, pàg. 467-470. SCHENA, M.; R. A. HELLER; T. P. THERIAULT; K. KONRAD; E. LACHENMEIER; R. W. DAVIS (1998). «Microarrays: Biotechnology s Discovery Platform for Functional Genomics». Trends In Biotechnology, núm. 16, pàg. 301306. SHOEMAKER, D. D.; D. A. LASHKARI; D. MORRIS; M. MITTMANN; R. DAVIS (1996). «Quantitative Phenotypic Analysis of Yeast Deletion Mutants Using a Highly Parallel Molecular Bar-coding Strategy». Nature Genetics, núm. 14, pàg. 450-456. THE C. ELEGANS SEQUENCING CONSORTIUM (1998). (Vegeu <http://genome.wustl.edu/gsc/C_elegans> i <http://www.sanger.ac.uk/Projects/C_elegans> per a una llista sencera dels autors). Science, núm. 282, pàg. 2012-2018. THORAVAL, D.; M. RÉGNACQ; P. NEUVILLE; H. BOUCHERIE (1990). «Functional Analysis of the Yeast Genome: Use of Two-dimensional Gel Electrophoresis to Detect Genes in Randomly Cloned DNA Sequences». Current Genetics, núm. 18, pàg. 281-286. VELCULESCU, V. E.; L. ZHANG; B. VOGELSTEIN; K. W. KINZLER (1995). «Serial Analysis of Gene Expression». Science, núm. 270, pàg. 484-487. VELCULESCU, V. E.; L. ZHANG; W. ZHOU; J. VOGELSTEIN; M. A. BASRAI; D. E. JR. BASSETT; P. HIETER; B. VOGELSTEIN; K. W. KINZLER (1997). «Characterization of the Yeast Transcriptome». Cell, núm. 88, pàg. 243-251. WILM, M.; A. SHEVCHENKO; T. HOUTHAEVE; S. BREIT; L. SCHWEIGERER; T. FOTSIS; M. MANN (1996). Nature, núm. 379, pàg. 466-469. WOLFE, K. H.; D. C. SHIELDS (1997). «Molecular Evidence for an Ancient Duplication of the Entire Yeast Genome». Nature, núm. 387, pàg. 708-713. YAHRAUS, T.; N. BRAVERMAN; G. DODT; J. E. KALISH; J. C. MORRELL; H. W. MOSER; D. VALLE; S. J. GOULD (1995). «The Peroxisome Biogenesis Disorder Group 4 Gene, PXAAA1, Encodes a Cytoplasmic ATPase Required for Stability of the PTS1 Receptor». EMBO J., núm. 15, pàg. 2914-2923. ZHANG, L.; W. ZHOU; V. E. VELCULESCU; S. E. KERN; R. H. HRUBAN; S. R. HAMILTON; B. VOGELSTEIN; K. W. KINZLER (1997). Science, núm. 276, pàg. 1268-1272.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 173-179
LA RESPOSTA IMMUNITÀRIA JOSE A. GARCIA-SANZ Department of Immunology and Oncology. Centro Nacional de Biotecnología (CNBCSIC). Madrid. Adreça per a la correspondència: J. A. Garcia-Sanz. Department of Immunology and Oncology. Centro Nacional de Biotecnología (CNB-CSIC). Campus de Cantoblanco. Universidad Autónoma de Madrid. 28049 Madrid. Telèfon: 34 - 91 - 585 45 37. Fax: 34 - 91 - 372 04 93. Adreça electrònica: jasanz@cnb.uam.es INTRODUCCIÓ La immunologia, o millor dit l anàlisi cel·lular i molecular de la resposta immunitària, ha estat una de les puntes de llança de la biologia moderna en el darrer quart de segle. L autor defensa la idea d un desenvolupament encara més gran d aquesta àrea de la biologia en els primers vint-i-cinc anys del segle XXI. En aquest article s intenta posar al dia, des d un punt de vista molt personal, el que sabem avui de la resposta immunitària i s intentarà justificar la previsió del seu desenvolupament en un futur proper. LA RESPOSTA IMMUNITÀRIA El paper més important del sistema immunitari és la defensa de l organisme davant la invasió per microorganismes i virus, i la lluita contra les cèl·lules tumorals. El sistema immunitari utilitza, per portar a terme aquesta funció, diferents tipus cel·lulars
que presenten una alta mobilitat. Aquestes cèl·lules circulen per la sang i el sistema limfàtic i poden penetrar a gairebé qualsevol part de l organisme i provocar una resposta immunitària a l òrgan envaït. Això implica que les cèl·lules del sistema immunitari han de poder discriminar entre el que és propi i el que no ho és, tolerant els components propis de l organisme, però desencadenant una resposta en front de tot el que és reconegut com a estrany (MacDonald, et al., 1986). Una desregulació d aquest sistema implica malaltia, ja que la manca de reconeixement de substàncies estranyes implica la prevalència de la infecció, mentre que respostes contra el que és propi donen lloc a malalties autoimmunitàries (Janeway Jr., et al., 1997). Les cèl·lules responsables de l exquisida especificitat del sistema immunitari són els limfòcits. Cada limfòcit expressa en la seva superfície receptors antigènics amb una sola especificitat. En circumstàncies fisiològiques, un limfòcit s activa només quan troba
174 J. A. GARCIA-SANZ
un antigen (o determinant antigènic) que és capaç de reconèixer amb el seus receptors de membrana específics (Davis et al., 1988). Això permet l expressió de propietats funcionals latents, i induex una proliferació limitada (sis a vuit divisions) d aquesta cèllula, del que resulta un clon, és a dir un grup de cèl·lules que expressen totes el mateix receptor de membrana i que són capaces de respondre totes elles al mateix antigen. La complexitat de funcions dels limfòcits activats ve determinada per l heterogeneïtat de les cèl·lules que formen part del sistema immunitari. Un dels grups principals de limfòcits, els anomenats limfòcits B (a causa del lloc on es diferencien en ocells, la bossa de Fabrici), tenen com a funció la secreció d anticossos. L altre gran grup de cèl·lules del sistema immunitari, els anomenats limfòcits T (a causa que la seva maduració té lloc en el Timus) poden dividir-se, almenys, en dues clases fonamentals, els anomenats limfòcits T col·laboradors (Th, de l anglès T helpers); i els limfòcits T citotòxics (CTL, cytotoxic T lynphocyte); ambdós amb funcions efectores ben diferents (taula 1). Els limfòcits T col·laboradors (Th), caracteritzats per l expressió del marcador de superfície CD4+ (CD4+CD8-), reconeixen antígens obtinguts per degradació en endo-
somes acídics d antígens exògens i que són presentats per molècules de clase II del complex major d histocompatibilitat (MHC) (Morrison et al., 1986); tenen una funció principalment reguladora de la resposta immunitària, és a dir, són capaços de coordinar la participació d altres tipus de cèl·lules mitjançant la secreció de proteïnes de baix pes molecular, capaces de difondre s en el medi, i col·laboren en l activació de limfòcits B (MacDonald, H. R. et al., 1986). Els limfòcits T de fenotip CD8+ (CD4-CD8+) o precursors de cèl·lules citotòxiques, reconeixen antígens sintetitzats al citosol i degradats per un complex específic anomenat protesoma (Morrison, L. A. et al., 1986); quan s activen esdevenen capaços de lisar les cèl·lules diana que porten els antígens de membrana reconeguts per les cèl·lules citotòxiques (CTL) (MacDonald, H. R. et al., 1986) (taula 1). Requeriments cel·lulars i moleculars per l activació de limfòcits T La interacció dels receptors específics de membrana dels limfòcits T (TCR) amb pèptids específics units a molècules del complex major d histocompatibilitat (MHC) resulten en l activació d una elaborada cas-
Limfòcits T col·laboradors
Limfòcits T citotòxics
Marcadors de superfície
CD4+ CD8
CD4 CD8+
Reconeixen l antigen presentat per origen de l antigen
molècules MHC de classe II pèptids obtinguts per degradació d antígens exògens en l endosoma
molècules MHC de classe I pèptids obtinguts per degradació en el proteosoma d antígens citoplasmàtics (sintetitzats a la pròpia cel·lula)
Funcions principals
reguladora de la resposta immunitària: lisi de les cèl·lules que tenen l antigen1 a) secreció de mediadors (citoquines, limfocines i chemoquines) b) col·laboració en l activació de limfòcits B
1. Recentment s ha descrit que aquestes cel·lules poden diferenciar-se cap a un fenotip que no té capacitat citolítica i que secreta mediadors i pot col·laborar amb les cèl·lules B (vegeu conseqüències de l activació de limfòcits T). TAULA 1. Característiques fenotípiques i funcionals dels limfòcits T.
LA RESPOSTA IMMUNITÀRIA 175
cada de senyals bioquímics que es tradueixen en l entrada i progressió d aquestes cèl·lules en el cicle cel·lular, secreció de limfocines, citoquines i quimioquines i fins i tot en la mort cel·lular (Weiss et al., 1986; Cantrell, 1996). El reconeixement de l antigen per limfòcits T és extremadament sensible i específic. Limfòcits T col·laboradors (Th) poden proliferar i sintetizar limfocines en resposta a cèl·lules presentadores d antigen (APC de l anglès antigen presenting cells) que tenen a la seva superfície de cinquanta a cent complexos pèptid-MHC (Harding et al., 1990; Demotz et al., 1990). En el cas de limfòcits T citotòxics (CTL) s ha descrit que un sol complex pèptid-MHC classe I és suficient per induir la lisi de la cèl·lula diana pel limfòcit CTL (Sykulev et al., 1996). La baixa afinitat del TCR pel complex pèptid-MHC (de 10-4 fins a 10-7 M) amb vides mitjanes de la interacció que van des de segons fins a pocs minuts (Matsui et al., 1991; Weber et al., 1992) ha estat, per tant, una de les grans sorpreses en la biologia dels limfòcits T i ha portat a la paradoxa que un nombre petit de complexos peptid-MHC poden ser reconeguts amb alta especificitat per TCR de baixa afinitat (l afinitat dels anticossos per l antigen és de l ordre d entre 10-6 i 10-9 M). Els models que permeten explicar aquesta paradoxa han de tenir en compte que la formació i/o estabilització d aquests complexos pot estar influenciada per molècules d adhesió entre els limfòcits T i les cèl·lules presentadores d antigen (APC), i no per la simple interacció de dues molècules en solució, com en el cas de la interacció antigen-anticòs. En realitat s ha proposat que les interaccions TCR-pèptid-MHC són dinàmiques i s ha demostrat que un sol complex pèptid-MHC pot interaccionar de manera seriada amb moltes molècules de TCR (fins a ~200 TCR/complex pèptid-MHC) i donar
lloc a una amplificació del senyal (Valitutti et al., 1995a; Valitutti et al., 1995b). D altra banda, l activació d un limfòcit T necessita la interacció de complexos pèptidMHC amb ~8.000 TCR, ja que la interacció amb un nombre més petit de molècules del TCR no és suficient per activar el limfòcit T (Viola et al., 1996). L excepció es dóna quan la interacció TCR-pèptid-MHC està acompanyada d interaccions entre molècules coestimuladores (per exemple CD28 interaccionant amb B7) on el llindar (threshold) baixa fins a ~1.500 TCR (Viola et al., 1996). També s ha demostrat que el temps d interacció és un dels factors limitants, una cèl·lula T verge (que no ha vist mai antigen) necessita aproximadament vint hores d activació continuada per ser activada per proliferar (Iezzi et al., 1998). Interaccions més curtes donen lloc a la inactivació funcional de la cèl·lula (fenomen anomenat anèrgia). En canvi, cèl·lules efectores (que han vist prèviament antigen) necessiten tan sols una hora d activació continuada per induir la seva proliferació; de manera que interaccions per temps més llargs donen lloc a la mort de les cèl·lules per apoptosi (mort cel·lular programada) (Iezzi et al., 1998). Aquestes dades expliquen, a més a més del requeriment de temps llargs d activació, necessaris per a la interacció seriada de pocs complexos pèptid-MHC amb un nombre gran de TCR, l exquisida especificitat de la resposta immunitària, malgrat la baixa afinitat del TCR pels complexos pèptid-MHC (Valitutti et al., 1997). Conseqüències de l activació de limfòcits T Les consequències de l activació limfocitària a través del seu receptor de membrana (TCR) són l adquisició de funcions efectores de les cèl·lules i la seva proliferació clonal (MacDonald et al., 1986). L anàlisi de la manera com un senyal generat en la mem-
176 J. A. GARCIA-SANZ
brana de la cèl·lula es pot traduir en diferenciació cel·lular i proliferació ha estat un dels temes de recerca més importants de la darrera dècada, i podem trobar magnífiques revisions sobre el tema (Weiss et al., 1986; Cantrell, 1996) (és fora de l interès de l autor descriure les cascades de transducció de senyals). Tan sols esmentar que l activació del TCR dóna lloc a un augment de la concentració de calci intern, i la fosforilació per quinases de la familia src de la cadena z del complex TCR-CD3; reclutament i activació de ZAP70 i d una gran varietat d enzims i adaptadors que tenen com a conseqüència l activació de l expressió gènica. La interacció entre les cèl·lules del sistema immunitari té lloc de dues maneres diferents, bé per contacte directe cèl·lulacèl·lula, o bé a distància. En el darrer cas, és deguda a la secreció de factors solubles (en general proteïnes de baix pes molecular: citoquines, limfocines i quimioquines) que són secretats per una cèl·lula i actuen de manera autocrina o paracrina. Els factors solubles tenen efectes pleotròpics i el seu efecte
depèn de la presència i/o concentració d altres factors solubles presents. Això complica molt més l estudi però permet una regulació molt més fina de la resposta immunitària. Un limfòcit T col·laborador (Th) depenent de les limfocines que secreta s anomena de tipus 1 (Th1) o de tipus 2 (Th2) (vegeu figura 1). Això també s ha demostrat per a cèl·lules citotòxiques. S ha descrit que l activació de cèl·lules CD8 en absència d IL-4 dóna lloc a cèl·lules citotòxiques que secreten interferó gamma (IFN-g) i que són capaces de lisar les cèl·lules diana que tenen l antigen (CD8 tipus 1); mentre que l activació d aquestes cèl·lules en presència d IL-4 dóna lloc a cèl·lules que no tenen capacitat citolítica però que tenen característiques funcionals iguals a les cèl·lules col·laboradores Th2 (cèl·lules citotòxiques de tipus 2) (Erard et al., 1993) (figura 1). Aquest switch de tipus 1 cap a tipus 2 per la presència d IL4 és inhibit per la presència d altres factors com TGFb (Erard et al., 1998). En conclusió, l anàlisi que han portat a terme la majoria dels grups estudiant l efecte d una limfocina o citoquina no té valor fisiològic ja que la presència d altres factors pot canviar completament el tipus de resposta. Control de l expressió gènica en el procés d activació de limfòcits T
FIGURA 1. Vies d activació de limfòcits T col·laboradors (TH) i citotòxics (TC). Els limfòcits T (col·laboradors i citotòxics) poden diferenciar-se cap a cèl·lules de tipus 1 (si l activació té lloc en absència d IL-4) o de tipus 2 (si l activació té lloc en presència d IL-4). Ambdós tipus de cèl·lules es caracteritzen per les limfocines que secreten i/o per l absència o no d activitat citotòxica.
Els limfòcits T abans de l estimulació antigènica tenen nivells indetectables de síntesi de DNA i la síntesi de RNA i proteïnes és molt baixa. L activació antigènica dels limfòcits T dóna lloc a un augment molt ràpid de la síntesi proteica (set o deu vegades) en el període de tres a deu hores que segueixen a l activació (Wettenhall et al., 1974). Aquest increment precedeix l augment de síntesi de RNA (causada principalment per l augment de transcripció). S han descrit més de cent gens diferents que estan activats a escala transcripcional (Crabtree, 1989; Ullman et al.,
LA RESPOSTA IMMUNITÀRIA 177
1990), entre ells es troben els gens de perforina (Garcia-Sanz et al., 1993) i granzymes A, B, C, D, E, F, G i H, implicats en les funcions efectores de les cèl·lules citotòxiques de tipus 1, o les molècules VLA. Alguns d aquests gens estan però, activats de manera transitòria, com els protooncògens C-MYC, C-FOS, l IL-2, o la cadena a del seu receptor (IL-2Rec a). En realitat, l anàlisi en gels de proteïnes de dues dimensions ha demostrat que l activació limfocitària implica l aparició, deguda en la majoria d exemples a l activació transcripcional, del 36 % dels productes gènics presents en un limfòcit T (Garcia-Sanz et al., 1998). Aquest resultat demostra de manera definitiva la gran importància d aquest tipus de regulació, que s obté mitjançant l activació d una sèrie de factors de transcripció específics i interaccions de manera combinatòria d aquests amb factors de transcripció generals (figura 2). Dades recents obtingudes en diferents laboratoris han demostrat que la regulació de l expressió gènica a escala posttranscripcional també té una gran rellevància. La regulació posttranscripcional inclou regulació del processament d alguns mRNA, com l mRNA per al TNFa, que trobem en limfòcits T abans de l activació, però on es requereix un senyal d activació per al seu processament i exportació al citoplasma (Yang et al., 1998). D altra banda, el procés d activació limfocitari també implica canvis en l estabilitat de certs mRNA (la majoria són mRNA que s inclouen en el grup de mRNA d activació ràpida o early activation genes) i que tenen en la seva regió 3 no traduïda (3 UTR) repeticions de la sequència AUUUA (Shaw et al., 1986). L estimulació de limfòcits en presència de senyals coestimuladores dóna lloc a una estabilització de mRNA que codifiquen per a limfocines, però d altres com els que codifiquen els protooncogens FOS, MYC i el factor de transcripció JUN no són estabilitzats (Lindstein
et al., 1989), encara que també tenen repeticions d aquestes sequències en el seu 3 UTR. El mecanisme d estabilització és encara desconegut, però s ha demostrat que altres seqüències presents a la regió 5 UTR són necessàries per a aquesta estabilització (Chen et al., 1998). Ja s ha esmentat que l activació limfocitària implica un increment de la síntesi proteica en les primeres fases d aquest procés. Resultats recents obtinguts al meu laboratori han demostrat que, a més a més, hi ha una regulació traduccional de l expressió dels gens que codifiquen per a certes limfocines i citoquines com IL-2, on s ha demostrat que pot representar un dels mecanismes moleculars amb els quals es pot obtenir la inactivació funcional dels limfòcits (anèrgia) (Garcia-Sanz, et al., 1996) o bé de l mRNA que codifica per a TNFa (Espel et al., 1996). Aquestes no són les úniques molècules regulades a aquesta escala. Resultats recents han demostrat que les molècules de clase II del complex MHC estan ambdues (cadena a i b) regulades a escala traduccional (Goñalons et al., 1998), i una anàlisi de la fracció de mRNA regulats a escala de tra-
FIGURA 2. Cinètica d activació dels limfòcits T. Representació esquemàtica de la cinètica d activació de diferents grups de gens, seguint l activació de limfòcits T. Entre les tres i set hores després de l activació, hi ha un augment de set a deu vegades en la síntesi proteica (requadre gris). A les vint-i-quatre hores comença la replicació del DNA.
178 J. A. GARCIA-SANZ
ducció indica que 13 % dels mRNA presents en un limfòcit T estan controlats a escala traduccional (ambdós activats 7,5 % i reprimits 4.8 %) (Garcia-Sanz, J. A. et al., 1998). Això és una clara demostració de la rellevància d aquest tipus de regulació. L esforç actual es centra en l aïllament d aquests mRNA. La resposta immunitària: cap a on anem Com s ha esmentat, l efecte d una citoquina o limfocina per se no té valor fisiològic; la robotització dels laboratoris permetrà en un futur proper, analitzar combinacions complexes d aquests factors i el seu efecte en la diferenciació i proliferació de les cèl·lules. D altra banda, i també a causa de les possibilitats de robotització en biologia molecular, ja és possible la utilització de xips que contenen, bé en suport de vidre, de silicona o de filtres estàndard, fins a 20.000 cDNA diferents en ~6,45 cm2 i que permeten analitzar, mitjançant una tecnologia sofisticada, diferències d expressió gènica en dues situacions fisiològiques diferents (Southern, 1996; Ramsay, 1998), i fins i tot, aïllar utilitzant hibridacions diferencials mRNA regulats a escala traduccional, o bé mRNA estabilitzats o bé desestabilitzats en limfòcits T activats. La finalitat és la comprensió dels mecanismes que controlen la resposta immunitària in vivo. A més a més de les aproximacions in vitro, s ha utilitzat en els darrers anys la manipulació genètica d animals, bé la utilització d animals transgènics, bé la utilització d animals deficients en un gen determinat (knockout). Ambdós han estat útils per analitzar a escala molecular la resposta immunitària, encara que avui és clar que donada a la redundància en el sistema immunitari, cap d aquestes dues aproximacions permetrà una comprensió última dels mecanismes implicats. Per tant, combinacions de totes les aproximacions possibles (transgènics, knockouts i anàlisi in vitro) se-
ran necessàries per a la comprensió dels mecanismes que controlen la resposta immunitària. AGRAÏMENTS Vull agrair als membres del meu grup per l ajut inestimable en la discussió d idees i comentaris útils. El Departament d Immunologia i Oncologia ha estat fundat i rep suport del CSIC i Pharmacia & Upjohn. El treball en el laboratori de l autor està finançat, en part, per un ajut de la Unió Europea TMR Network ERBFMRXCT980197.
BIBLIOGRAFIA CANTRELL, D. (1996). «T Cell Antigen Receptor Signal Transduction Pathways». Ann. Rev. Immunol., núm. 14, pàg. 259-274. CRABTREE, G. R. (1989). «Contingent Genetic Regulatory Events in T Lymphocyte Activation». Science, núm. 243, pàg. 355-361. CHEN, C. Y.; G. DEL; F. KONCZAK; Z. WU; M. KARIN (1998). «Stabilization of Interleukin-2 mRNA by the c-Jun NH2-terminal Kinase Pathway». Science, núm. 280, pàg. 1945-1949. DEMOTZ, S.; H. M. GREY; A. SETTE (1990). «The Minimal Number of Class II MHC-antigen Complexes Needed for T Cell Activation». Science, núm. 249, pàg. 1028-1030. DAVIS, M. M.; P. J. BJORKMAN (1988). «T-cell Antigen Receptor Genes and T Cell Recognition». Nature, núm. 334, pàg. 395-402. ERARD, F.; M. T. WILD; J. A. GARCIA-SANZ; G. LE GROS (1993). «Switch of CD8 T Cells to Noncytolytic CD8-CD4 Cells that Make TH2 Cytokines and Help B Cells». Science, núm. 260, pàg. 1802-1805. ERARD, F.; J. A. GARCIA-SANZ; R. MORIGGL; M. T. WILD (1999). «Presence or Absence of TGFb Determines IL-4-induced Generation of Type 1 or Type 2 CD8 T Cell Subsets». J. Immunol., núm. 162, pàg. 209-214. ESPEL, E.; J. A. GARCIA-SANZ; V. AUBERT; V. MENOUD; P. SPERISEN; N. FERNANDEZ; F. SPERTINI (1996). «Transcriptional and Translational Control of TNF-a Gene Expression in Human Monocytes by MHC class II Ligands». Eur. J. Immunol., núm. 26, pàg. 2417-2424.
LA RESPOSTA IMMUNITÀRIA 179 GARCIA-SANZ, J. A.; D. LENIG (1996). «Translational Control of IL-2 mRNA as a Molecular Mechanism of T Cell Anergy». J. Exp. Med., núm. 184, pàg. 159-164. GARCIA-SANZ, J. A.; W. MIKULITS; A. LIVINGSTONE; I. LEFKOVITS; E. W. M3+, (1998). «Translation Control: a General Mechanism for Gene Regulation during T Cell Activation». FASEB J., núm. 12, pàg. 299-306. GARCIA-SANZ, J. A.; E. R. PODACK (1993). «Regulation of Perforin Gene Expression in a T Cell Hybrid with Inducible Cytolytic Activity». Eur. J. Immunol, núm. 23, pàg. 1877-1883. GOÑALONS, E.; M. BARRACHINA; J. A. GARCIA-SANZ; A. CELADA (1998). «Translational Control of MHC Class II I-A Molecules by INFg». J. Immunol., núm. 161, pàg. 1837-1843. HARDING, C. V.; E. R. UNANUE (1990). «Quantitation of Antigen-presenting Cell MHC Class II/peptide Complexes Necessary for T-cell Stimulation». Nature, núm. 346, pàg. 574-576. IEZZI, G.; K. KARJALAINEN; A. LANZAVECCHIA (1998). «The Duration of Antigenic Stimulation Determines the Fate of Naive and Effector T Cells». Immunity, núm. 8, pàg. 89-95. JANEWAY, C. A. Jr.; P. TRAVERS (1997). Immunobiology the Immune System in Health and Disease. Edimburg, Londres, Nova York: Churchill Livingstone. LINDSTEIN, T.; C. H. JUNE; J. A. LEDBETTER; G. STELLA; C. B. THOMPSON (1989). «Regulation of Lymphokine Messenger RNA Stability by a Surface-mediated T Cell Activation Pathway». Science, núm. 244, pàg. 339343. MACDONALD, H. R.; M. NABHOLZ (1986). «T-cell activation». Ann. Rev. Cell Biol., núm. 2, pàg. 231-253. MATSUI, K.; J. J. BONIFACE; P. A. REAY; H. SCHILD; D. S. G. B. FAZEKAS; M. M. DAVIS (1991). «Low Affinity Interaction of Peptide-MHC Complexes with T Cell Receptors». Science, núm. 254, pàg. 1788-1791. MORRISON, L. A.; A. E. LUKACHER; V. L. BRACIALE; D. P. FAN; T. J. BRACIALE (1986). «Differences in Antigen Presentation to MHC Class I-and class II-restricted Influenza Virus-specific Cytolytic T Lymphocyte Clones». J. Exp Med, núm. 163, pàg. 903-921. RAMSAY, G. (1998). «DNA chips: State-of-the art». Nature Biotechnology, núm. 16, pàg. 40-44. SHAW, G.; R. KAMEN (1986). «A conserved AU Sequence from the 3 untranslated Region of GM-CSF mRNA
Mediates Selective mRNA Degradation». Cell, núm. 46, pàg. 659-667. SOUTHERN, E. W. (1996). «High-density Gridding: Techniques and Applications». Curr. Opinion Biotechnol., núm. 7, pàg. 85-88. SYKULEV, Y.; M. JOO; I. VTURINA; T. J. TSOMIDES; H. N. EISEN (1996). «Evidence that a Single Peptide-MHC Complex on a Target Cell Can Elicit a Cytolytic T Cell Response». Immunity, núm. 4, pàg. 565-571. ULLMAN, K. S.; J. P. NORTHROP; C. L. VERWEIJ; G. R. CRABTREE (1990). «Transmission of Signals from the T Lymphocyte Antigen Receptor to the Genes Responsible for Cell Proliferation and Immune Function: the Missing Link». Annu. Rev. Immunol., núm. 8, pàg. 421-452. VALITUTTI, S.; S. MULLER; M. CELLA; E. PADOVAN; A. LANZAVECCHIA (1995a). «Serial Triggering of Many T-Cell Receptors by a few Peptide-MHC Complexes [see comments]». Nature, núm. 375, pàg. 148-151. VALITUTTI, S.; M. DESSING; K. AKTORIES; H. GALLATI; A. LANZAVECCHIA (1995b). «Sustained Signaling Leading to T Cell Activation Results from Prolonged T Cell Receptor Occupancy. Role of T Cell Actin Cytoskeleton.». J. Exp. Med., núm. 181, pàg. 577-584. VALITUTTI, S.; A. LANZAVECCHIA (1997). «Serial Triggering of TCRs: a Basis for the Sensitivity and Specificity of Antigen Recognition.». Immunol. Today, núm. 18, pàg. 299-304. VIOLA, A.; A. LANZAVECCHIA (1996). «T cell Activation Determined by T Cell Receptor Number and Tunable Thresholds [see comments]». Science, núm. 273, pàg. 104-106. WEBER, S.; A. TRAUNECKER; F. OLIVERI; W. GERHARD; K. KARJALAINEN (1992). «Specific Low-affinity Recognition of Major Histocompatibility Complex plus Peptide by Soluble T-cell Receptor [see comments]». Nature, núm. 356, pàg. 793-796. WEISS, A.; J. IMBODEN; K. HARDY; B. MANGER; C. TERHORST; J. STOBO (1986). «The Role of the t3/Antigen Receptor Complex in T-cell Activation». Ann. Rev. Immunol., núm. 4, pàg. 593-619. YANG, Y.; J. F. CHANG; J. R. PARNES; C. G. FATHMAN (1998). «T Cell Receptor (TCR) Engagement Leads to Activation-induced Splicing of Tumor Necrosis Factor (TNF) nuclear pre-mRNA». J. Exp. Med., núm. 188, pàg. 247-254.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 181-201
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L ASSASSINAT DE LA GLOBALITAT: CINC REFLEXIONS I UN PARADIGMA A L ENTORN DE LA NEUROCIÈNCIA ANTONI VALERO Unitat de Fisiologia Mèdica. Departament Biologia Cel·lular. Fisiologia i Immunologia. Universitat Autònoma de Barcelona. Adreça per a la correspondència: Unitat de Fisiologia Mèdica, Dept. Biologia Cel·lular, Fisiologia i Immunologia. Universitat Autònoma de Barcelona. 08193 Bellaterra. Adreça electrònica: a.valero@cc.uab.es «Els especialistes són aquelles persones que saben cada vegada més de menys; fins que finalment ho saben tot de res i res de tot» Daniel D. Kaminski INTRODUCCIÓ Els investigadors, i encara més els recercadors joves, som desgraciadament poc proclius a reflectir per escrit les nostres intuïcions, vivències i opinions com a professionals. El mètode científic ensenya que la prudència, la paciència i sobretot la necessitat de demostrar cada afirmació són preceptes inviolables del món de la ciència, i sovint es comet l error d aplicar-los amb una ortodòxia i desmesura tals que ultrapassen el llindar del món experimental envaint els aspectes més domèstics de la vida. Això no vol dir que no es pugui fer bona ciència i ser intuïtivament crític amb l entorn i el mètode amb què hom treballa. Ans al contrari, s entén que forma part de la feina del cientí-
fic ser sensible no només a la qualitat i rellevància de les seves aportacions, en tant que fets individuals, sinó conèixer en quina mesura els mètodes que manipula i el context en el qual treballa estan condicionant les seves conclusions. Renuncio d entrada a fer en aquest text una anàlisi detallada dels esdeveniments de les neurociències dels darrers anys i els pronòstics per al proper segle; penso que supera de llarg les meves capacitats i a més, hi ha referents publicats molt recents de la mateixa Societat Catalana de Biologia sobre la qüestió (Artigas, 1996). Deixeu-me, amb el vostre permís, donar-vos gat per llebre i presentar algunes reflexions crítiques i un paradigma experimental a l entorn d un àmbit del coneixement, la neurociència, que si per alguna cosa hauria de
182 A. VALERO
caracteritzar-se és per la seva interdisciplinarietat. LES REFLEXIONS CRÍTIQUES Del nom de la neurocosa a l objecte de la neurociència Treballem en un camp, la neuròciència altres prefereixen dir-ne neurociències (Mora i Sanguinetti, 1992) que presenta un nom arrogant i terminològicament no exempt de prepotència. D entrada, a diferència de la gran majoria de disciplines de la biologia, s atorga drets i propietats molt exclusius i particulars. Nominalment, es presenta a si mateixa com una gran disciplina de disciplines, capaç d integrar i sintetitzar els mètodes i el coneixement en ciències de la vida i això, quan es pensa en el context global de la biologia, no deixa de ser sorprenent. Em sembla que a tots se ns faria estrany que la microbiologia decidís anomenar-se microbiociència o la citologia s afixés citociència. És evident que les raons d aquesta denominació no poden ser, però, casuals. De fet, la complexitat del seu objecte d estudi, el sistema nerviós, obliga, en aquest cas, i probablement també en molts d altres, a superar la segmentació clàssica del coneixement, molt marcada per la metodologia utilitzada, i a fonamentar-la més aviat en l objecte d estudi. Si aquest fet no acaba de ser encara distintiu per justificar que la neurocosa pugui apropiar-se d aquest tan preuat i disputat sufix, ciència, n hi ha un altre que és potser més definitori (Garcia-Sevilla, 1998). Considerant l objecte global de la biologia moderna el conjunt d estructures i funcions compreses dins dels límits dels éssers vius i les seves interrelacions, és un fet que la neurociència abraça per si mateixa tot aquest gran ventall de possibilitats i necessita abordar simultàniament el sistema ner-
viós des de múltiples enfocaments. Així, les expressions cognitives i comportamentals d individus i grups d éssers vius, situades al capdamunt de l edifici neurocientífic, s han d entendre com a qualitats emergents producte de les activitats dels seus diferents nivells d organització. La participació de la bioquímica, la biofísica, l anatomia, la histologia, la fisiologia, la psicobiologia, la psicologia social (Delacour, 1995) i també l enginyeria informàtica (Churchland i Sjnowski, 1992), la filosofia de la ment (Churchand 1986, Garcia-Sevilla, 1998) i totes aquelles matèries, que des del mètode científic s hi vulguin afegir, sembla, segons aquest model, imperativa. En la recerca d explicacions globals i en la superació dels límits establerts de manera horitzontal per a cada nivell d organització de la matèria viva des de la molècula, passant per la cèl·lula, el teixit, l aparell o sistema i l organisme fins arribar a la interrelació dels éssers vius és on resideix el gran atractiu d aquest camp del coneixement (Nature Neuroscience, 1998). L assassinat de la globalitat La simple simultaneïtat temporal de disciplines que abordin a diferents nivells un objecte comú, però, no assegura per si mateixa la integració dels seus coneixements (Guerrero, 1997). La interdisciplinarietat és alguna cosa més que la pura diversitat de punts de vista; implica també la necessitat que els diferents enfocaments es confrontin, amb la voluntat que les conclusions sobre els mateixos processos no només correlacionin, sinó que s integrin en un sistema capaç de donar explicacions globals (Nature Neuroscience, 1998); un sistema en el qual els nivells superiors de la neurociència puguin expressar-se com a relacions causa-efecte de les disciplines que en formen la base. En aquest sentit ja podem avançar que el model
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L'ASSASSINAT DE LA GLOBALITAT 183
que els teòrics havien planificat sobre el paper per a la neurocosa fracassa estrepitosament. De nou no podem atribuir-ho a l atzar, sinó a elements d ordre econòmic, sociològic i metodològic que envolten el món de la ciència en general i la neurociència en particular (Camí, 1997). Jo n assenyalaria quatre de fonamentals: les perversions del lliure mercat científic, les desconfiances i prejudicis entre col·lectius, una nova concepció de la realitat biològica i l aplicabilitat de la ciència i el seu finançament. Les lleis del lliure mercat científic La ciència presenta la comunitat de lectors més actualitzada i crítica del món (Camí, 1995). La proliferació de revistes especialitzades en qualsevol dels seus àmbits més remots, els sistemes de revisió dels articles i sobretot la pressió que els mateixos recercadors exerceixen confirmant o rebatent amb altres treballs el que es publica, afavoreix en principi la qualitat de tot allò que s exposa públicament com a treball científic (Camí, 1997). Al mateix temps, la generació d un esperit de sana competitivitat entre grups d investigadors i l imperatiu quasi legal de la publicació per promoure s en l escala professional i obtenir ajuts de recerca col·laboren en el manteniment del dinamisme del sector i garanteixen l obtenció de resultats. El sistema però, per bé que vàlid, ha generat al mateix temps i al llarg de les darreres dècades les seves pròpies perversions, condicionant la manera de fer ciència (Camí, 1997). Aquestes maneres de fer, portades a l extrem, afecten molt negativament tots els camps de la recerca, i de manera més especial aquells que com la neurociència es defineixen com a interdisciplinars. Per una banda, el predomini de la cultura de la quantitat per sobre de criteris de qualitat que permet mesurar la producció científica i atorgar objectivament el privilegi de veure
alimentada la vanitat pròpia, força els investigadors a no emprendre aventures experimentals massa arriscades i de dubtós rendiment a curt termini (Camí, 1997). Per altra banda, la mitificació de la cultura de la novetat i la diferència, molt en la línia d altres disciplines com la mercadotècnia, per sobre de la cultura de la rellevància, alimenta el mercat científic de productes d una concreció i grau d especialització tan extrems que sense posar en dubte el seu interès i la seva qualitat intrínsecs, esdevenen veritables nusos gordians; treballs que comencen i acaben en si mateixos i de difícil projecció i aplicabilitat fora del seu reduït àmbit (Camí, 1997). Un món de desconfiances El fet més demostratiu de la crisis de la noció global de neurociència i de la manca d un sentiment col·lectiu neurocientífic és que és un món en el qual tothom malparla de tothom. Les diferències i prejudicis es fan patents no només entre recercadors que es dediquen a estudiar el mateix problema a diferents nivells d organització, sinó també entre professionals que desenvolupen la mateixa recerca en entorns distints. Així, els biòlegs moleculars i els bioquímics són criticats perquè es considera que, emmirallats en el reflex d un sinaptosoma o un canal iònic obtingut o clonat de l espècie animal més estrambòtica imaginable i analitzats in vitro, perden el context de la globalitat de l ésser viu; els fisiòlegs perquè els seus models in vivo, hereus de la tradició bernardiana (Bernard, 1868), són grollers i no discriminen adequadament les variables de manera fina; els històlegs perquè estudien i treuen conclusions abstractes de l activitat d una realitat estructural in fixo (Ramon y Cajal, 1898); els neuroanatomistes perquè són uns descriptivistes purs de la macroscòpica dels cadàvers; els neuròlegs i psiquiatres reben puntades de peu perquè sembla que la seva
184 A. VALERO
partint d observacions i mètodes més generals i d aportacions empíriques a la resolució de problemes, els manca un coneixement aprofundit dels nivells inferiors per poder superar veritables desafiaments científics. Les noves realitats experimentals
FIGURA 1: Microfotografia convencional (blau de toluïdina) d una secció transversal semifina de nervi tibial de rata, branca del nervi ciàtic que innerva la musculatura flexora planter de l extremitat posterior i els receptors cutanis, les glàndules sudorípares i la musculatura de la planta del peu. L axoplasma, en tonalitats clares, i, a l entorn, l embolcall mielínic en negre. S observen axons mielínics gruixuts i axons amielínics de petit diàmetre conformant petites agrupacions. Molts estudis utilitzen el comptatge d axons regeneratius, la distribució de llurs diàmetres i la relació de superfícies entre l axoplasma i la mielina com un indicador del grau de recuperació després de lesions perifèriques.
formació clínica, enfocada a la resolució de problemes pràctics, els inhabilita per fer recerca experimental de qualitat; els psicobiòlegs perquè mesuren el comportament per mitjans no fiables o de dubtosa cientificitat; els enginyers informàtics perquè volen modelitzar en ordinadors allò que no es coneix o no coneixen (Churchland i Sjnowski, 1992); i ja no cal parlar de quin tipus de qualificatius poden arribar a rebre els psicòlegs de la cognició o els filòsofs de la ment que s aventuren a barrejar-se en entorns clarament hostils com aquests (Delacour, 1995). Aquest foc creuat trasllueix un agressiu estira-i-arronsa entre els qui se saben especialistes d una realitat minúscula, d altra banda molt poderosament recolzats per la cultura de l especialització i la tecnificació, els resultats dels quals no sempre acaben de correlacionar amb les observacions globals, i aquells a qui,
L abandonament dels models d estudi experimental en animals i el progressiu desenvolupament dels mètodes in vitro és el tercer dels elements cabdals a considerar per explicar la manca d integració dels coneixements neurocientífics. Aquests nous sistemes d estudi, si bé responen molt bé a les expectatives de les disciplines més moleculars, no són gaire útils per respondre les preguntes emergents que es plantegen els recercadors de nivells superiors d organització del sistema nerviós. S ha obert una escletxa metodològica important entre les disciplines de la base i les de la teulada de la neurociència que contribueix encara més a la seva separació i a generar absurdes controvèrsies destinades a demostrar les mancances de cadascuna d elles. Així les metodologies in vivo presentades pels seus detractors com a representatives de la recerca més rovellada i lassada, també a vegades criminalitzades per l ús d animals d experimentació, presenten l avantatge de donar lloc a conclusions probablement més aplicables a la resolució de problemes, assumint el desavantatge de segmentar i aprofundir molt poc en les variables que hi intervenen; és a dir detecten molt bé els fenòmens funcionals però cal especular intel·lectualment sobre el seu mecanisme d acció (Bernard, 1868). Per contra, les metodologies in vitro, molt afavorides per la seva aurèola de modernitat, són ideals per estudiar fenòmens moleculars, disseccionant les variables i eliminant-ne les que són emmascaradores, però amb l inconvenient que el canvi d entorn pot arribar a modificar tant l estatus es-
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L'ASSASSINAT DE LA GLOBALITAT 185
tructural i funcional de l element que s estudia, que s arribi al punt de generar estudis d una nova realitat artificial vàlids, però difícilment extrapolables. No podem evitar tampoc fer algun comentari crític sobre l ús d animals transgènics o mutants en l abordatge de problemes experimentals (Snider et al., 1992), els quals es passegen pels congressos i revistes com a animals de fira més que com a veritables models de problemes rellevants. Progressivament, a més, estem assistint al naixement dels mètodes in machina, basats en la modelització per ordinador de sistemes altament complexos com una xarxa neural i la simulació del seu comportament i la seva evolució davant de certes modificacions virtuals del seu entorn (Churchland i Sjnowski, 1992). Davant de tots aquests canvis la influència de les modes metodològiques i tecnològiques, portades de la mà dels científics que les apliquen i sovint les promouen, plantegen sovint un debat excloent i absurd sobre la validesa de mètodes que s haurien de complementar.
acaben passant comptes. D altres han trobat raonable que la societat estigui interessada que les dades adquirides amb finançament públic no serveixin només per engreixar el sac del coneixements i la descripció del món, sinó que es puguin plasmar en millores pràctiques de la qualitat de vida dels ciutadans. De tota manera, pocs ho han aprofitat per posar d acord àrees bàsiques i aplicades, per integrar coneixements i s ha preferit en general el debat absurd dels dos models com a excloents, quan en neurociència només poden ser clarament complementaris. Molts exemples demostren que la recerca en nivells d organització superiors dels éssers vius pot avançar per si mateixa fins a presentar limitacions que només són superables per l aportació de nous coneixements de matèries més bàsiques, i vist des d un altre punt de vista, la recerca extremadament fonamental pot perdre el rumb i deixar d estudiar els aspectes bàsics de pro-
La neurociència aplicada En aquest context crispat, les administracions han desenvolupat polítiques científiques cada vegada més centrades en rendibilitzar les inversions en recerca bàsica, potenciant aquelles disciplines, mal anomenades aplicades, que podrien conduir a la resolució de problemes de tecnologia o salut d àmbit social (Guerrero, 1996). La necessitat de vestir o disfressar la recerca neurocientífica amb un aspecte aplicat és imperativa actualment per a tots aquells que pretenen continuar rebent ajudes per a la seva recerca. Molts, especialment els neurocientífics dedicats a àrees molt bàsiques, han interpretat aquests requeriments com un atemptat a la independència, esgrimint el ja clàssic argument que el suport a les polítiques de resultats ràpids tard o d hora
FIGURA 2: Registre del potencial d acció compost del múscul plantar en un animal control (a) i un animal sotmès a una secció del nervi ciàtic reparada per sutura directa dels extrems i deixada regenerar durant noranta dies (b). L alçada de l ona M del potencial d acció (amplitud) és indicativa del nombre d axons motors que reinnerven el múscul. El temps transcorregut fins a l inici de l ona (latència) indica el grau de mielinització axonal i la velocitat de conducció. L ona H és una resposta muscular reflexa monosinàptica, mediada per fibres sensorials procedents dels fusos musculars (fibres Ia). Permet avaluar l estat de la sinapsi entre neurones sensorials i motores d aquest circuit segmentari.
186 A. VALERO
FIGURA 3: Registre de les petjades d un animal control (a) i d un animal sotmès a una resecció de 4 mm del nervi ciàtic reparada per sutura directa, noranta dies després de la lesió (b). La lesió denerva la musculatura flexora plantar (múscul gastrocnemi) i flexora dorsal (múscul tibial anterior) del peu i separadora dels dits produint un increment de la distància longitudinal (l animal camina amb tota la planta del peu) i una reducció de la distància transversal de la petjada (per la impossibilitat de separar els dits). Tres mesos després de la lesió i malgrat la recuperació de l amplitud dels potencials de despolarització muscular, la funció global de deambulació no presenta cap tipus de recuperació.
blemes socialment rellevants que complementin la resta d estudis, substituint-los per projectes descriptius molt rendibilitzables com a bibliografia científica, però d escassíssima projecció social. El debat no és recerca bàsica versus recerca aplicada en neurociència sinó problemes rellevants estudiats a tots els nivells versus problemes no rellevants. A la recerca de la disciplina global S ha parlat de neurociència i dels apriorismes que aquest nom comporta. S han esmentat algunes de les raons que dificulten el plantejament d abordaments globals als problemes de recerca. Com hauríem de plantejar, aleshores, l estudi d un fenomen complex que necessàriament implica l anàlisi a diferents nivells de la seva estructura morfològica i funcional? La investigació pot
ser entesa com un viatge ascendent i descendent per un gratacels imaginari compost pel problema que cal abordar, en el qual els diferents pisos constitueixen els nivells d organització en què aquesta complexitat és segmentable i estudiable. Un gratacels amb els fonaments arrelats en la realitat molecular de l estructura i la funció de la matèria i un terrat obert al món de les activitats i problemes que els humans, també els recercadors, presentem i sofrim com a éssers individuals i components d un col·lectiu. Com a investigadors, ens fem concients dels problemes rellevants als nivells més superiors d aquest edifici i després en refugiem al nostre nivell per estudiar-los còmodament, utilitzant les eines amb les quals ens sabem més precisos. No podem deixar però de visitar la resta de pisos en els quals també tenim coses a fer, a llegir o a dir, i comptar amb la col·laboració dels nostres veïns i col·legues en la recerca de solucions per a problemes idèntics o similars. Aquest procés de continuada ascensió i descens ens ha de permetre, sense excés de presumpció ni humilitat excessiva, adquirir consciència de quin lloc ocupen les nostres observacions i mesures, i finalment les nostres conclusions, en el context global constituït pel problema experimental (Nature Neuroscience, 1998). L objecte d estudi no el poden definir ni la disciplina, ni els mètodes, ni el perfil dels recercadors. L objecte d estudi es defineix pel propi problema que cal abordar. Conèixer quines relacions mantenim amb la resta d enfocaments que treballen per la resolució dels mateixos enigmes o d altres de similars i el pes que les nostres conclusions adquiriran en la globalitat del problema són tasques tan importants en ciència com la mateixa adquisició de les dades. Demostrar, però, que un model globalitzador hauria de ser un imperatiu per a la neurociència, o bé, per exclusió, que el model clàssic de relacions horitzontals i disci-
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L'ASSASSINAT DE LA GLOBALITAT 187
plines impermeables no és rendible almenys per oferir respostes als grans problemes que planteja una ciència tan oberta i extensa com aquesta no és una feina senzilla. No seria just proclamar que no hi hagi alguns o bastants problemes en neurociència que no hagin rebut un abordament integrador, ni tampoc afirmar que el model imperant més individualitzador que globalitzador no hagi fet descobriments de rellevància. En tot cas, sempre ens pot quedar el dubte, i això ja és fer, i mai millor dit, ciència ficció, de saber què passaria si poguéssim convertir l excepció en norma. EL PARADIGMA EXPERIMENTAL Un camp de gran importància de la neurociència actual és l estudi dels fenòmens de degeneració, regeneració i plasticitat del sistema nerviós després de lesions cerebrals, medul·lars o de nervis perifèrics. Presenta tots els requisits de dificultat per exigir un abordatge global que tingui en compte les aportacions de tots els camps i metodologies emprades en neurociència. Es tracta d un problema clínic i social de primer ordre, que s expressa sota un ampli ventall de malalties altament incapacitants, des de l esclerosi múltiple fins a les lesions traumàtiques medul·lars i nervioses perifèriques, passant per les polineuropaties metabòliques i les demències degeneratives i vasculars. En totes elles, i salvant les diferències fisiopatològiques que les separen, es produeix, l afectació estructural i funcional de la neurona i/o les cèl·lules i elements glials del seu entorn, entre ells la mielina, causant una simptomatologia que segons les regions alterades pot ser de tipus motor (pèrdua de força o paràlisi completa), sensorial (alteracions o pèrdues de les sensibilitats tàctil, tèrmica, dolorosa i propioceptiva) del sistema nerviós autònom (trastorns
del control vascular, la micció i la sudoració) o cognitiu (alteracions de la memòria, la comprensió, l orientació, la planificació de moviments i l elaboració i l expressió del llenguatge). Els mecanismes que condueixen a la degeneració i la mort cel·lular o que estimulen la supervivència cel·lular i la regeneració després de lesions presenten, en tots aquests trastorns, mecanismes fisiopatològics confluents. A més, l estudi de les respostes regeneratives i plàstiques del sistema nerviós davant de lesions és una font de paradigmes explicatius dels mecanismes de processos no patològics com l aprenentatge i la memòria (Nieto-Sampedro, 1996). Considerar i integrar els aspectes comuns d aquesta gran constel·lació de factors i considerar conjuntament les dades que produeixen, més que subdividir-les i constatar descriptivament la diversitat de fenòmens, sembla l estratègia més útil i rendible per a assolir conclusions de rellevància en aquest camp.
FIGURA 4: Evolució del patró de deambulació abans de l operació (d0) i al llarg dels noranta dies postlesius, avaluat per mitjà de l índex funcional del nervi ciàtic en un grup control (CNT) i tres grups experimentals: compressió del nervi ciàtic (CRH), secció del ciàtic i reparació per sutura directa dels extrems (TS), resecció nerviosa de 4 mm reparada per interposició d un tub de silicona (TB4), i resecció ciàtica de 8 mm reparada per un empelt del mateix nervi (INJ) o per tubulització amb silicona (TB8). Només el grup sotmès a una lesió de compressió en la qual es manté l estructura i l alineament dels tubs endonèurics, presenta recuperació de la funció de locomoció.
188 A. VALERO
Lesions del sistema nerviós perifèric Si bé l estudi de la degeneració i la regeneració cerebral i medul·lar centra la major part de l atenció científica i mediàtica actual, les lesions del sistema nerviós perifèric i les seves connexions amb el sistema nerviós central constitueixen un sistema anatòmicament i fisiològicament molt ben conegut per avaluar experimentalment aquesta mena de fenòmens. Sense entrar en massa detall, faré una descripció ràpida dels diferents nivells metodològics en què és analitzable i provaré de mostrar alguns dels biaixos produïts per enfocaments parcials del tema. Els nervis perifèrics són susceptibles de patir un ampli ventall de lesions causades per agressions de tipus físic, bioquímic, isquèmic i immunitari. Aquestes originen alteracions estructurals i afecten la seva capacitat de transmetre impulsos bioelèctrics (Waxman, 1988). En darrera instància, les lesions comporten la pèrdua parcial o total de les funcions de control muscular, sensorial i del sistema nerviós autònom. Aquestes pèrdues funcionals, sovint incapacitants, poden compensar-se mitjançant la reinnervació dels òrgans denervats per dos mecanismes fonamentals: la regeneració espontània dels axons prèviament lesionats i la ramificació col·lateral d altres axons indemnes, situats a l entorn, que reinnerven les estructures denervades. L experiència clínica demostra, però, que aquests no sempre proporcionen una recuperació funcional satisfactòria ni permeten el desenvolupament de les funcions originalment desenvolupades per les estructures denervades (Buchtahl i Kuhl, 1979; Kline i Hudson, 1985; Sumner, 1990; Angelov et al., 1996). Per arribar a assolir un bon grau de recuperació funcional després d una lesió nerviosa s han de complir cinc requisits fonamentals (Madison et al., 1987): que hi hagi una bona
supervivència de les neurones axotomitzades als efectes de la lesió, que es produeixi una elongació axonal reeixida a través de la zona d afectació, que els axons regenerin adequadament i arribin a reinnervar el òrgans diana originals i que es restableixin les connexions neuronals espinals i corticals originals o un patró de sinapsi compatible amb el desevolupament de la funció. Finalment, cal provar que tot aquest procés de regeneració estructural comporta realment la generació de respostes funcionals apropiades. Només quan s acompleixen tots aquests requeriments, es pot aconseguir una recuperació adequada, que no impliqui només el restabliment de l estructura, sinó la restitució de la conducta o funció global en la qual el nervi implicat participa (Fu i Gordon, 1997). Estructura dels nervis perifèrics Els nervis perifèrics són autopistes neurals conformades per múltiples carrils amb la funció de conduir informació codificada entre diferents òrgans receptors i efectors del nostre organisme. A través de les seves estructures circulen axons motors (gruixuts mielínics tipus Aa) que es projecten distalment sobre la musculatura, axons sensorials que des dels receptors condueixen aferentment estímuls de diferents modalitats (mielínics tipus Ab, Ad i amielínics tipus C) i axons de l anomenat sistema nerviós autònom (amielíncs tipus C) que innerven els vasos sanguinis i les glàndules sudorípares. Els cossos neuronals d aquests tres grans grups d axons se situen a la banya medul·lar anterior, al gangli de l arrel posterior espinal i als ganglis de la cadena simpàtica paravertebral, respectivament. Segons les seves característiques, els axons poden envoltar-se de cèl·lules de Schwann i d altres elements perifèrics no neurals com els fibroblasts. A l entorn de la
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L'ASSASSINAT DE LA GLOBALITAT 189
mielina trobem la membrana basal d aquestes cèl·lules i un embolcall connectiu que constitueix el seu tub endonèuric. Els diferents grups d axons s ajunten conformant feixos envoltats per làmines de perineuri, mentre que el conjunt del tronc nerviós queda limitat externament per la darrera de les capes connectives, l epineuri. Els axons no desenvolupen trajectòries linials en la longitud dels nervis perifèrics sinó que acostumen a canviar la seva posició relativa, bifurcar-se i fusionar-se entre ells fins a establir una o diverses sinapsis amb cèl·lules del seu òrgan diana (Sunderland, 1978; Lundborg, 1988). Aspectes cel·lulars de la degeneració i regeneració L èxit de la regeneració nerviosa depèn en primera instància de la capacitat de les neurones de sobreviure a la lesió perifèrica del seu axó. La mort neuronal es dóna per apoptosi (Lo et al., 1995) i és produïda per la manca o la dificultat d accés a diferents factors tròfics alliberats pels òrgans distals o bé per cèl·lules glials, fibroblasts i macròfags, tant de l entorn de l axó com del soma de la neurona (Korshing, 1993). Aquesta és quantitativament molt més important en lesions axonals properes al cos neuronal que en afectacions més distals (Sunderland, 1978) i afecta molt més les neurones sensorials que les motores (Melville et al., 1989). Les lesions axonals neonatals o postnatals produeixen efectes més devastadors sobre la població neuronal que en períodes adults (Snider et al., 1992). En tot cas, la incidència d apoptosis en neurones motores després de lesions perifèriques en animals adults és negligible (Gordon et al., 1991). Les neurones supervivents sofreixen una sèrie de modificacions morfològiques que són l expressió d un canvi del programa d activitat cel·lular, des d un estat homeostàtic de
transmissió durant el qual la cèl·lula està plenament dedicada a la transmissió de senyals bioelèctrics, a un estat transitori de creixement en el qual tots els esforços estan dirigits a afrontar la lesió axonal (Gordon, 1983). La dissolució dels cossos de Nissl, l excentrització del nucli, l increment del diàmetre nucleolar i del soma, que conformen el que s anomenenen canvis cromatolítics (Nissl, 1892; Kreutzberg, 1995), posen de manifest un increment de l expressió i la síntesi de RNA missatgers i de proteïnes del citoesquelet (Aldskogius et al., 1992). Després de lesions que produeixen la ruptura de les fibres d un nervi perifèric, els axons i les beines de mielina distals al punt d afectació es degraden per degeneració walleriana (Waller, 1850). Els productes finals d aquesta degeneració són eliminats per la proliferació de les cèl·lules de Schwann i la infiltració de macròfags (Selzer, 1980; Sunderland, 1991). Les cèl·lules de Schwann del segment nerviós distal, i molt especialment, una subpoblació específica d aquestes cèl·lules anomenades no mielinitzants perquè no es troben en contacte amb axons, proliferen a l interior de la làmina basal dels tubs endonèurics durant els primers dies postlesius, formant les anomenades bandes de Büngner, (Ramon y Cajal, 1913; Bunge, 1987). Cada axó acostuma a generar entre cinquanta i cent branques amb diversos cons de creixement que penetren a l atzar en alguns dels tubs endonèurics i creixen envoltats de les cèl·lules de Schwann i llur membrana basal (Ramon y Cajal, 1913). La velocitat d elongació axonal vers el segment distal és de l ordre de 2-4 mm/dia en espècies de rosegadors i d 1mm/dia aproximadament en humans (Lundborg, 1988; Bisby, 1995). En absència, però, de segment distal, és freqüent la formació d un neuroma a l extrem del nervi conformat per teixit connectiu i fibres nervioses immadures que bloqueja la regeneració distal, al mateix
190 A. VALERO
temps que és una font d estimulació mecànica per contacte de les terminals axonals (Sunderland, 1978; Devor et al., 1989). L origen dels factors que estimulen i controlen la regeneració axonal sembla localitzar-se a l entorn de la lesió. Les variacions de la velocitat i l eficiència de la regeneració axonal després de diferents lesions experimentals i diversos mètodes reparatius suggereixen que la integritat de la beina nerviosa i l aportació de substàncies per part del nervi degenerat o bé transportades des de les cèl·lules diana denervades hi tenen un paper important (Politis et al., 1982; Williams et al., 1984; Brushart, 1988). Diversos estudis han demostrat l efecte neurotròfic de l extrem distal del nervi seccionat (Williams et al., 1984), de les cèl·lules de Schwann (Sjöberg et al., 1988), de la membrana basal (Ide et al., 1983) i de substàncies acumulades a l interstici (Varon i Williams, 1986). S ha pogut comprovar que alguns d aquests elements, com el fluid acumulat en cambres nervioses (Longo et al., 1983) o les proteïnes de la membrana basal (Rogers et al., 1983), promouen el creixement de neurites quan són aplicats a cultius neuronals. Els processos de regeneració no acostumen a reconstituir, però, una estructura nerviosa ni una reconnexió distal totalment normal. Després d una secció nerviosa i la seva reparació posterior, el diàmetre dels axons regeneratius, com també la seva velocitat de conducció d impulsos i excitabilitat es mantenen disminuïts durant un temps força llarg (Fields i Ellisman, 1986a i b; Giannini et al., 1989). Paral·lelament, la recuperació funcional dels òrgans afectats acostuma a ser deficient i comporta dèficits permanents de la força muscular, de la sensibilitat i de l activitat de control vegetatiu (Buchtahl i Kuhl, 1979; Kline i Hudson 1985; Dyck et al., 1988) juntament amb complicacions secundàries, com úlceres cutànies, anquilosi articular o dolors neuropàtics.
Canvis moleculars de la degeneració i la regeneració L anàlisi detallada de l expressió gènica i la síntesi neuronal després de lesió indica que després d un increment ràpid de l expressió de jun-B i c-jun, augmenta la producció de molècules estructurals com la tubulina i l actina, de proteïnes associades al creixement com la GAP-43 (Friedman et al., 1995) mentre disminueix l expressió d enzims de la síntesi i degradació de neurotransmissors com la tirosina hidroxilasa, la colina-acetilcolina-transferasa i l acetilcolina-colina esterasa (Zigmond et al., 1997). L estimulació del creixement axonal i el contacte amb una font productora de factors tròfics és fonamental per assegurar la supervivència cel·lular en aquest estadi (Fu i Gordon, 1997). El programa d expressió d alguns neurotransmissors i neuropèptids en diferents tipus de neurones posen de manifest també el seu possible paper promotor de la supervivència cel·lular i la regeneració. Així, en motoneurones, paral·lelament a la disminució de l expressió de l acetil-colina transferasa, es produeix un increment del pèptid associat al gen de la calcitonina (CGRP), l expressió de la qual disminueix, però, en neurones sensorials axotomitzades conjuntament amb la susbtància P i la somatostatina (Haas et al., 1990). En neurones del sistema nerviós simpàtic, al mateix temps d una disminució dels enzims de síntesi de la noradrenalina i del neuropèptid Y, destaca l increment en l expressió del pèptid vasoactiu intestinal, la galanina, la substància P i del factor inhibidor de la leucèmia. En neurones sensorials s incrementa l expressió de colecistoquinina i del pèptid vasoactiu intestinal i del neuropèptid Y, que, en canvi, disminuïa en neurones simpàtiques (Zigmond et al., 1997). No deixa de ser paradoxal que neuropèptids que en alguns casos semblen promotors de la regeneració adqui-
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L'ASSASSINAT DE LA GLOBALITAT 191
reixin efectes contraris segons el tipus neuronal afectat. És interessant remarcar que la simple associació temporal de diferents canvis en l expressió gènica amb el procés regeneratiu no permet establir relacions de causa-efecte entre elles (Fu i Gordon, 1997). De manera recent, s ha començat a donar importància a la reacció inflamatòria en el punt de lesió axonal com a determinant de la regeneració. A nivell perifèric, els axons afectats i els macròfags transformats a partir de monòcits sanguinis produeixen de manera sinèrgica diferents interleucines (IL-1, IL-2 i IL6), el factor de transformació neural i interferó gamma. Aquestes molècules tenen efectes mitogènics sobre les cèl·lules de Schwann afavorint la seva proliferació, la producció de factors de creixement nerviós i l alliberament i dipòsit de proteïnes de la matriu extracel·lular que afavoriran l adhesió de l axó en creixement (Mews i Meyer, 1993). Les neurones axotomitzades sintetitzen a la vegada una gran quantitat de factors neurotròfics; el factor de creixement neural (NGF, de l anglès, neural growth factor), el factor neural derivat del cervell (BDNF, brain-derived neutral factor), la neurotrofina 3/4 (NT, neurotrophine 3/4), factors de creixement de fibroblasts, factor de creixement derivat de plaquetes (PDGF, platelet-derived growth factor) o el factor de creixement glial (GGF, glial growth factor) entre d altres. Aquests actuen per via paracrina o autocrina sobre les neurones i les cèl·lules no neurals de l entorn del soma i de l axó (Verge et al., 1996). Paral·lelament, s observa una expressió incrementada dels receptors d aquestes molècules en motoneurones, com és el cas dels receptors TrkB i p75, i del transport de neurotrofines, que afavoririen l acció d aquestes molècules promovent el creixement axonal (Friedman et al., 1995). Paradoxalment, però, l expressió dels mateixos receptors està disminuïda en neurones sensorials axotomitzades (Raivich i Kreutz-
berg, 1993). Tancant aquest cercle d interaccions entre elements cel·lulars a l entorn del punt de lesió, les cèl·lules de Schwann i els fibroblasts expressen una sèrie de molècules destinades a regular l adhesió de l axó regeneratiu a elements de la paret del tub endonènric (Daniloff et al., 1989; Bisby, 1995). Molècules d adhesió cel·lular com l N-CAM o l N-caderina i proteïnes estructurals de la matriu extracel·lular de la membrana basal, com la laminina, el col·lagen, la fibronectina i la tenascina C, són indispensables per promoure l elongació dels axons regeneratius (Fu i Gordon, 1997). Qualitat de la reinnervació després de lesions Els axons en creixement reconnecten amb estructures perifèriques musculars, sensorials i del sistema nerviós autònom recuperant la seva capacitat per transmetre en direcció aferent o eferent senyals bioelèctrics. La reinnervació de les dianes distals es pot avaluar mitjançant el registre de potencials d acció musculars i nerviosos compostos, o per mitjà de signes clínics que indiquen la recuperació de la força, la sensibilitat, la sudoració i el control del to vascular en els pacients afectats. La velocitat de conducció nerviosa és un bon indicador del grau de mielinització dels axons regeneratius (Lundborg, 1988). Poques hores després de l arribada dels axons sobre el múscul, s estableixen sinapsis i aquest comença a recuperar la seva activitat (Gorio et al., 1983). La reinnervació i l establiment de connexions sinàptiques actives per part d axons regeneratius no garanteix, però, la recuperació de la funció global (Sumner, 1989). L axó col·lateralitza de manera prolífica en el punt de lesió i emet múltiples branques cap als tubs endonèurics distals. L especificitat topogràfica i funcional de la reinnervació de cada axó i el nombre de
192 A. VALERO
branques de cada neurona és determinant per a la qualitat de la recuperació final. Aquesta depèn, entre altres factors, de la gravetat de la lesió (Brushart et al., 1988), del procediment reparatiu emprat (Brushart, 1993), del nombre de bifurcacions del tronc nerviós (Sumner, 1989; Brushart et al., 1998), del grau de regeneració assolit i del temps de recuperació de la lesió (Madison et al., 1996). Així, s han descrit diferents fenòmens a l entorn de la qualitat de la reinnervació poliinnervació, reinnervació inespecífica i hiperinnervació que entorpeixen l ús de sinapsis actives per al correcte desenvolupament d una funció complexa com la deambulació, la manipulació d objectes o la discriminació i localització tàctil. La poliinnervació té lloc quan una mateixa diana és reinnervada al mateix temps per diferents axons o per derivacions terminals d un axó pertanyent a una mateixa neurona, cadascuna de les quals estableixen la seva sinapsi. Aquest procés que es produeix poc després de l arribada de l axó sobre la diana, pot arribar a afectar fins al 60 % de les fibres musculars i presenta una tendència a reduir-se amb el temps (Gorio et al., 1983). La reinnervació inespecífica és el contacte d una diana per part d un axó únic d una neurona que originalment no l innervava (Sumner, 1990). Els efectes funcionals són especialment notables quan les motoneurones que innervaven musculatura flexora reinnerven, després de la lesió, musculatura extensora de la mateixa extremitat, o quan algunes neurones sensorials canvien el seu territori de projecció cutani (Montserrat i Benito, 1988; Sumner, 1990). S ha descrit que la reinnervació inespecífica d axons motors sobre territoris sensorials té tendència a reduir-se significativament amb el temps i l ús (Brushart, 1993). El concepte d hiperinnervació fa referència a la innervació d un mateix òrgan distal per múltiples axons procedents de diferents neurones,
que al mateix temps emeten altres branques sobre múltiples dianes. Depèn de la quantitat de branques col·laterals emeses en el punt de lesió per cada axó seccionat i no té tendència a reduir-se espontàniament amb el temps (Angelov et al., 1993; 1996). El resultat és l activació simultània, per la despolarització d una única neurona, d òrgans diana, generalment musculars, el funcionament dels quals no està habitualment sincronitzat (Angelov et al., 1996). Els fenòmens de poliinnervació, hiperinnervació i reinnervació aberrant són els principals causants de l anomenada síndrome de paràlisi postquirúrgica, que té lloc després de lesions de nervis perifèrics, consistent en el blocatge del moviment, moviments associats anormals, discinèsies i pèrdua del control i la coordinació motores (Kimura et al., 1975; Bento i Miniti, 1993). Les neurones que es projecten sobre dianes perifèriques equivocades no presenten sempre capacitat per adaptar el seu comportament electrofisiològic patrons de descàrrega a les necessitats dels òrgans erròniament reinnervats (Gruart et al., 1996), encara que els pacients afectats per aquesta mena de fenòmens postreinnervatius aprenen amb l activitat a recodificar els moviments i la topografia sensorial. Canvis i conseqüències de la connectivitat central Immediatament després d una lesió axonal, el soma neuronal pateix la retracció del seu arbre dendrític i la desconnexió de les sinapsis que estableix amb cèl·lules neurals del seu entorn. La desconnexió dels òrgans perifèrics i l activació del programa de creixement redueix l aportació de proteïnes estructurals per al manteniment de les dendrites per concentrar els esforços en la regeneració axonal (Pastor et al., 1997; Fu i Gordon, 1997). Cèl·lules d astròglia i micròglia
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L'ASSASSINAT DE LA GLOBALITAT 193
activades i en fase de proliferació s interposen entre els elements presinàptics de les dendrites afectades, eliminant d aquesta manera les seves terminals (Blinzinger i Kreutzberg, 1968; Graeber i Kreutzberg, 1988; Nieto-Sampedro, 1996; Aldskogius i Kozlova, 1998). La desaferentització d un territori sensorial i la desconnexió central d òrgans musculars desencadenen canvis importants de l organització connectiva i l excitabilitat d estructures espinals (Mendell, 1984), subcorticals (Garrathy et al., 1990), corticals motores (Donoghe et al., 1990; Sanes et al., 1990) i corticals somatosensorials (Doetsch et al., 1996). El desemmascarament de connexions preestablertes silents o bé la col·lateralització de les neurones axotomitzades amb neurones veïnes funcionants explica la seva reutilització per al control muscular o la recepció sensorial de territoris adjacents. L increment del potencial de repòs transmembrana (Carmignoto et al., 1983), canvis en l estructura dels seus canals iònics dendrítics induïts per la lesió (Zhang et al., 1997) i l estimulació aferent continuada del soma neuronal pel contacte mecànic dels axons seccionats amb el neuroma generat en el punt de lesió (Devor et al., 1989) transformen la cèl·lula en hiperexcitable i expliquen la facilitació de les respostes mediades per vies reflexes espinals dels músculs reinnervats (Eccles et al., 1958; Angelov et al., 1999). Les neurones són funcionalment molt sensibles a canvis lesius, regeneratius o reinnervatius de la seva innervació perifèrica, modificant de manera no sempre adaptativa el seu patró de descàrregues a les característiques de cada situació (de la Cruz et al., 1996). Aquest conjunt de canvis plàstics apareixen molt poc temps després de la lesió (Donoghue et al., 1990; Valls-Solé et al., 1992) i en funció de la gravetat (Wall et al., 1983), l extensió total del territori sensorial i motor afectat (Huerta i Wall, 1987), del nivell de recuperació final i,
molt especialment, del grau d especificitat assolits per la reinnervació perifèrica (Wall i Kaas, 1986), poden readquirir la seva localització, extensió i nivell d excitabilitat originals. Quan, per alguna de les raons esmentades, aquests canvis plàstics estructurals i funcionals no involucionen, impossibiliten la recuperació del patró global de desenvolupament d activitats i generen, entre altres qüestions, problemes importants en la coordinació de moviments, la integració sensòrio-motora i el desenvolupament de la funció global (Wasserschaff, 1990). Tipus de lesions i tractament Les lesions del sistema nerviós perifèric es classifiquen en cinc graus segons el tipus d estructures afectades (Sunderland, 1978). Lesions lleus en les quals es troba un bloqueig transitori de la conducció nerviosa sense afectació estructural notable, que reverteixen en poc temps (primer grau); lesions traumàtiques compressives que comporten la destrucció de l axó amb la conservació de l embolcall de cèl·lules de Schwann i la seva membrana basal (segon grau); alteracions on s observa la destrucció dels tubs endonèurics i de les cèl·lules de Schwann (tercer grau); la desestructuració addicional de l epineuri amb l alliberament i desalineament dels fascicles nerviosos (quart grau); i la secció total del tronc nerviós, en alguns casos amb la resecció o pèrdua d un segment neural (cinquè grau). Les lesions compressives que no comporten l afectació dels tubs endonèurics es recuperen ràpidament per regeneració espontània dels axons afectats, conduïts pels embolcalls connectius fins a les seves estructures distals originals. A partir del tercer grau de lesió s aconsella la reparació quirúrgica per sutura directa dels extrems, en seccions netes, o la interposició d un empelt nerviós
194 A. VALERO
obtingut d un fragment d un nervi funcionalment poc important del mateix pacient, en cas de reseccions. L empelt condueix els cons de creixement axonals des de l extrem proximal al distal de la lesió a través de l espai interneural i ofereix un substrat molecular de factors neurotròpics i neurotròfics favorables per a la regeneració axonal (Millesi, 1981; Kline, 1990). El grau de desalineament entre els extrems nerviosos i l habilitat del cirurgià per enfrontar adequadament cada fascicle amb el seu conjunt de tubs endonèurics originals és fonamental per assegurar una bona qualitat de reinnervació i evitar la formació d un neuroma que impedeixi l elongació axonal. S ha treballat en l elaboració d un empelt artificial que constitueixi una veritable alternativa a tots els desavantatges de la reparació de lesions per empelts neurals (Mackinnon i Dellon, 1990; Dellon i Crawley, 1992). Aquestes cambres neurals, normalment cilíndriques, se suturen a l extrem proximal i distal del nervi per tal de guiar adequadament els axons cap a la perifèria. S han estudiat tubs de diferents diàmetres, materials permeables, semipermeables i impermeables i la introducció en el seu interior de matrius de diferents molècules d adhesió i elements cèl·lulars productors de factors tròfics per a la regeneració com cèl·lules de Schwann, macròfags o fibroblasts (Butí et al., 1996; Fu i Gordon, 1997; Verdú i Navarro, 1998). L efectivitat d alguns procediments ha estat avaluada de manera parcial en models que no garanteixen l obtenció de resultats en situacions clíniques, generant polèmiques sobre les possibilitats i els límits de determinades metodologies. Així, malgrat els esforços invertits en aquesta mena de recerca, els resultats i l aplicabilitat clínica d aquestes teràpies alternatives o complementàries a la cirurgia tradicional presenten encara poc ressò en el món hospitalari.
LA DESTRUCCIÓ DE LA GLOBALITAT És fa difícil de justificar que aquest coneixement tan ampli dels mecanismes moleculars i cel·lulars de la regeneració nerviosa no es puguin plasmar de manera clara en solucions als problemes dels pacients afectats per quasevol mena de lesió del sistema nerviós central o perifèric. Al meu parer, les raons d aquesta contradicció entre quantitat de saber i aplicabilitat del coneixement es troben en determinades debilitats dels plantejaments que inspiren la recerca en aquest camp. El món de les realitats in vitro Molts treballs de biologia molecular mostren les estranyes particularitats de fenòmens anàlegs als explicats, en treballs realitzats sobre cèl·lules d espècies animals molt determinades o en models de transgènics i mutants, utilitzant, sense cap altra contrastació metodològica, exclusivament estudis in vitro. Les seves conclusions entren sovint en oposició parcial o total amb els resultats obtinguts en treballs in vivo, posant en dubte la validesa d aquests models, utilitzats com a única eina de mesura, per a la resolució d alguns problemes experimentals. No deixa de ser paradoxal que molècules, com el neuropèptid Y o el pèptid associat al gen de la calcitonina, que en alguns estudis es defineixen com a promotores de la supervivència i la regeneració tinguin efectes contraris segons els tipus neuronals assajats (Haas et al., 1990; Friedman et al., 1995). Tampoc ens hauria de deixar impàvids que l expressió de receptors de factors neurotròfics, Trk B i p75 presenti dinàmiques oposades en motoneurones i en neurones sensorials, igualment axotomitzades i necessitades d un increment de l activitat neurotròfica (Raivich i Kreutzberg, 1993). L atribució de propietats, funcions i rols a les molècules en funció
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L'ASSASSINAT DE LA GLOBALITAT 195
de la concordança temporal de fenòmens, sense una demostració prèvia de relació causa-efecte pot generar resultats aparentment contradictoris com els presentats (Fu i Gordon, 1997). En aquesta mateixa línia, es pot incloure el cas del ratolí C57BL/Ola, el qual per possibles defectes estructurals en les membranes de les cèl·lules de Schwann, macròfags i axons, no completa el cicle d interaccions moleculars i cel·lulars entre aquests elements i presenta in vivo una degeneració walleriana alentida i una mielinització deficient després de lesions. Paradoxalment, els nervis d quest model mutant, que ha generat una immensa quantitat de literatura i especulacions sobre les bases moleculars de la degeneració i la regeneració axonals, presenten in vitro una degeneració walleriana normal (Reichert et al., 1994). Per acabar-ho d adobar, els intents per demostrar l eficàcia de determinats factors neurotròfics identificats com a tals in vitro, no sempre presenta en models in vivo resultats equivalents, especialment quan s avalua la recuperació per mètodes funcionals (Labrador et al., 1995; Verdú i Navarro, 1998). L administració de factors neurotròfics per a promoure la regeneració s han basat en l aplicació isolada d un únic factor neurotròfic o neurotròpic, sense estudis aprofundits sobre la dosi mínima eficaç, la biodisponibilitat del producte en el punt de lesió en administracions sistèmiques i el període postlesiu eficaç de cada factor. L administració de còctels d aquestes molècules, més que de factors aïllats, amb una sincronització temporal i finestra de concentracions que tingui en compte les particularitats estructurals i funcionals de cada fase postlesiva, en definitiva l aplicació de conceptes terapèutics més globals, sembla conduir a resultats més esperançadors (Müller et al., 1987; Fu i Gordon, 1997). Tot això no vol dir que la biologia molecular presenti una visió falsejada dels fenòmens. Els seus
mètodes i resultats són fiables sempre i quan siguin jutjats sense allunyar-se del seu entorn, des del mateix punt de vista i contrastats amb estudis del mateix nivell. Aquests comentaris pretenen simplement constatar que l elevada validesa i la fiabilitat del mètode utilitzat no garanteix que els seus resultats no entrin en franca contradicció amb la realitat complexa d un sistema global com el d un ésser viu. Possibilitats i límits metodològics Molts estudis ignoren, tot i utilitzar models globals in vivo, les seves limitacions metodològiques i extrapolen a partir de les dades obtingudes conclusions hipertrofiades, que queden lluny de les seves possibilitats. Aquest fet posa de manifest una visió parcial del problema experimental, excessivament condicionada per la metodologia d anàlisi utilitzada i la pèrdua de visió sobre els objectius i el context globals en què aquest se situa. La manca d abordaments globals i l absència d una idea clara sobre la jerarquia de diferents procediments d avaluació generen també resultats paradoxals. Així, un dels mètodes més utilitzats per avaluar l eficàcia de determinades teràpies quirúrgiques o farmacològiques sobre la regeneració és el comptatge en preparacions histològiques del segment nerviós distal a la lesió del nombre d axons, el diàmetre i perímetre axonal, la densitat axonal per superfície de nervi, la distribució axonal segons diàmetre i la relació de diàmetres entre l àrea coberta de mielina i l àrea pròpiament axonal. El mètode suposa que un nombre elevat d axons, de gruixària considerable i, per tant, madurs i ben mielinitzats, és indicatiu d una òptima regeneració i recuperació funcional després de lesions (Giannini et al., 1989; Gómez et al., 1996). La constatació estructural de l existència d axons no pot fer pressuposar, però, que tots ells han arribat a
196 A. VALERO
establir sinapsis amb estructures distals i que, per tant, són actius en la transmissió de potencials d acció. I fins i tot acceptant aquesta simplificació, res permet indicar en aquesta mena d estudis que els axons que hagin pogut establir sinapsis, ho hagin fet amb l òrgan distal que originalment innervaven i que aquestes permetin el desenvolupament de la funció global. Per tant, la relació de causalitat, ni tan sols de correlació, entre nombre d axons i recuperació després de lesions no només és falsa sinó que en alguns casos és probablement inversa; com més branques col·laterals emeten els axons cap a les dianes distals més elevada és la probabilitat de poliinnervació, hiperinnervació i innervació aberrant de les dianes distals i, per tant, de patir la síndrome de paràlisi postquirúrgica (Angelov et al., 1993, 1996, 1999). Existeixen tota una sèrie de mètodes electrofisiològics que permeten registrar l activitat de despolarització muscular induïda per l estimulació elèctrica d un nervi regenerat en un punt proximal a la zona de lesió. Aquests mètodes també han estat utilitzats per avaluar l efecte de lesions i de mètodes reparatius. L amplitud de l ona de despolarització és un indicatiu del nombre d axons que han reinnervat el múscul, mentre que el temps transcorregut entre l estimulació i l inici de la despolarització depèn de la velocitat de conducció i per tant, del grau de mielinització axonal (Navarro et al., 1994, 1996). Si bé aquesta tècnica funcional permet demostrar que els axons regenerats formen sinapsis, i que les utilitzen per a connectar de manera efectiva amb el seus òrgans diana, no garanteix que la reinnervació hagi estat qualitativament correcta. Un múscul reinnervat per una majoria d axons que originalment es projectaven sobre un múscul antagonista, presentarà la mateixa amplitud de registre electrofisiològic que un altre correctament reinnervat; en
canvi, la recuperació final de la funció de moviment serà totalment diferent. A més, el mètode avalua exclusivament la funcionalitat del nervi perifèric i les seves dianes, oblidant que la lesió produeix també canvis electrofisiològics en la funcionalitat neuronal individual i en el patró de connexions espinals i corticals dels circuits de producció i control motor, que poden entorpir el desenvolupament de la funció global (Wasserschaff, 1990). Complementar aquest conjunt de dades indirectes amb una prova que objectivi una conducta global en la qual un nervi regenerat participi, és l únic camí per obtenir una idea adequada i clínicament extrapolable de l efectivitat de la reinnervació. De Medinaceli i col·laboradors (1982) van desenvolupar un mètode adequat per avaluar les variacions del patró de marxa d animals rosegadors afectats per lesions traumàtiques dels nervis de l extremitat posterior, per mitjà de l enregistrament de les petjades produïdes per l animal en caminar per un passadís allargat. La distància entre la base del turmell i la punta dels dits (PL), determinada per l activitat de la musculatura flexora plantar del peu (múscul gastrocnemi) innervada per la branca tibial del ciàtic, s incrementa després de la lesió; per altra banda, la distància de separació entre la punta dels dits (TS i IT), dependent de músculs intrínsecs innervats per la branca peroneal del ciàtic, disminueix. La majoria d autors han conjugat els tres paràmetres bàsics (PL,TS i IT) en un índex de recuperació funcional (índex funcional del nervi ciàtic), integrat per la suma d un factor per a cadascun dels paràmetres, consistent en la diferència de distàncies entre la pota sana i l operada dividida pel valor de la pota sana (De Medinaceli et al., 1982; Bain et al., 1989). La fórmula considera que la contribució de cada factor al resultat final és equivalent, per això es sumen aritmèticament i el resultat es multiplica per un factor arbitrari que
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L'ASSASSINAT DE LA GLOBALITAT 197
situa el rang de valors entre 0 % per a animals controls i 100 % per a la denervació. Aquesta prova global que demostra si la regeneració axonal i la reinnervació d òrgans distals és capaç de garantir la recuperació de l activitat de deambulació, indica que només en grups sotmesos a lesions que comportin la conservació i l alineament dels tubs endonèurics per guiar inequívocament els axons cap a llurs òrgans corresponents, es recupera un patró de marxa equivalent a l original. La paradoxa és que determinades lesions, la recuperació de les quals seria qualificada d excel·lent per mètodes histològics i fisiològics, presenten segons aquesta prova conductual, una recuperació gairebé inexistent. La por a la correlació i la contrastació de resultats Existeix cert pànic, per no dir-ne insensibilitat, a produir metaanàlisis que mostrin fins a quin punt les conclusions d estudis sobre fenòmens idèntics en diferents models, nivells d organització o emprant diferents metodologies, correlacionen entre si. Són escasses les publicacions en les quals els autors contrasten aprofundidament els seus resultats amb dades obtingudes per treballs que utilitzen mètodes radicalment diferents. Així, després de dècades d ús d aquestes metodologies per avaluar l èxit o el fracàs de la regeneració nerviosa, alguns treballs comencen a posar en dubte que els seus resultats estiguin mesurant el mateix fenomen (Munro et al., 1998). El càlcul de coeficients de correlació entre les dades obtingudes en dues centenes d animals d experimentació sotmesos a la mateixa lesió nerviosa perifèrica, per mètodes histològics (diàmetre del nervi, nombre absolut, densitat i diàmetre de fibres nervioses, diàmetre i superfície axonal, longitud mielínica, i relació de diàmetres axó/mielina), electrofi-
siològics (amplitud, latència i àrea sota la corba dels potencials d acció nerviós i muscular compostos, i velocitat de conducció nerviosa) i conductuals (índex funcional del nervi ciàtic) demostra que només correlacionen entre si els paràmetres d una mateixa tipologia de mètodes. Resulta paradoxal també, que en cap cas dels estudiats, els resultats dels indicadors histològics o electrofisiològics garanteixin resultats equivalents de la conducta de marxa avaluada pel patró de deambulació. És evident que en casos extrems de recuperació òptima o de regeneració nul·la, els indicadors mostren una gran correlació entre si, però aquesta mena de resultats binaris no són els que poden generar dubtes sobre l efectivitat d un mètode de reparació aplicat sobre la lesió. Falten estudis crítics que provin de correlacionar quantitativament, per a alguns d aquests tres tipus de mètodes (si és que això és possible), els efectes promotors de la regeneració de determinades molècules in vitro amb resultats obtinguts in vivo, o els efectes in vitro sobre diferents tipus de neurones. Ara per ara, només una revisió acurada d un gran volum de publicacions i un abordatge lliure d idees prèvies ens permetria conèixer l estat de la qüestió amb objectivitat; el que aquí presentem és un recull de sensacions, vestides sota forma d exemples. CONCLUSIONS La neurociència ha esdevingut una disciplina cabdal del coneixement científic d aquest tombant de segle, període caracteritzat per una erosió sistemàtica dels límits clàssicament establerts entre disciplines del coneixement científic i no científic. Un període d estira-i-arronsa entre la hiperespecialització del coneixement i la necessitat de trencar fronteres, de barrejar, de connectar, d eliminar conceptualment alguns plurals. La gran
198 A. VALERO
quantitat de nivells i mètodes que utilitza, presenten tots ells virtuts i defectes notables. Adquirir consciència dels seus límits i promoure aproximacions interdisciplinars a la resolució de problemes és probablement l únic camí efectiu per a l abordatge de les seves preguntes experimentals. La intenció del qui escriu ha estat manifestar un punt de vista absolutament personal i subjectiu i d aquesta manera provar de provocar el debat que el títol que encapçala aquest volum La biologia a l alba d un nou mil·lenni demana a crits. Aquest inici de mil·lenni és un bon pretext per decidir si les properes dècades volem parlar de neurociències en plural o neurociència en singular.
BIBLIOGRAFIA ALDSKOGIUS, H.; J. ARVIDSSON; G. GRANT (1992). «Axotomy induced changes in primary sensory neurons». A: SCOTT, S. A., Sensory Neurons: Diversity, Development and Plasticity. Nova York, Oxford: Oxford University Press, pàg. 363-383. ALDSKOGIUS, H.; E. KOZLOVA (1998). «Central neuronglial and glial-glial interactions following axon injury». Progr. Neurobiology, núm. 55, pàg. 1-26. ANGELOV, D. N.; A. GUNKEL; E. STENNERT; W. F. NEISS (1993). «Recovery of original nerve supply after hypoglossal-facial anastomosis causes permanent motor hyperinnervation of the whisker-pad muscles in the rat». J. Comp. Neurology, núm. 338, pàg. 214-224. ANGELOV, D. N.; W. F. NEISS; M. STREPPEL; J. ANDERMAHR; K. MADER; E. STENNERT (1996). «Nimodipine accelerates axonal sprouting after surgical repair of rat facial nerve». Journal of Neuroscience, núm. 16(3), pàg. 1041-1048. ANGELOV, D. N.; E. SKOURAS; O. GUNTINAS-LICHIUS; M. STREPPEL; A. POPRATILOFF; M. WALTHER; J. KLEIN; E. STENNERT; W. F. NEISS (1999). «Contralateral trigeminal nerve lesion reduces polyneuronal muscle innervation after facial nerve repair in rats». Eur. J. Neuros. núm. 11, pàg. 1369-1378. ARTIGAS, F. (ed.) (1996). Neurociència. Treballs de la Societat Catalana de Biologia, núm. 47. BAIN, J. R.; S. MACKINNON; R. HUNTER (1989) «Functional evaluation of complete sciatic, peroneal, and posterior tibial nerve lesions in the rat». Plastic Reconstr. Surg., núm. 83, pàg. 129-189.
BENTO, R. F.; A. MINITI (1993). «Anastomosis of the intratemporal facial nerve using fibrin tissue adhesive». Ear. Nose. Throat. J., núm. 72, pàg. 663. BERNARD, C. (1868) (reedició del 1984). Introduction a l Étude de la Médecine Expérimentale. París: Champs Flammarion. BISBY, J. L. (1995). «Regeneration of peripheral nerve system axons». A: WAXMAN S. G., J. D. KOCSIS, P. K. STYS (ed.). The Axon: Structure, Function and Pathophysiology. Nova York, Oxford: Oxford University Press, pàg. 355-374. BLINZINGER, K.; G. W. KREUTZBERG (1968). «Displacement of synaptic terminals from regenerating motoneurons by microglial cells». Z. Zellforsch, núm. 85, pàg. 145-157. BRUSHART, T. M. E. (1988). «Preferential reinnervation of motor nerves by regenerating motor axons». J. Neurosci. , núm. 8, pàg. 1026-1031. BRUSHART, T. M. E. (1993). «Motor axons preferentially reinnervate motor pathways». J. Neurosci. núm. 13, pàg. 2730-2738. BRUSHART, T. M. E.; J. GERBOR; P. KESSENS; Y. G. CHEN; R. M. MOYALL (1998). «Contribution of pathway and neuron to preferential motor reinnervation». J. Neurosci., núm. 18 (21), pàg. 8674-8681. BUCHTAHL, F.; V. KUHL (1979). «Nerve conduction, tactile sensibility, and the electromyogram after suture or compression of peripheral nerve: a longitudinal study in man». J. Neurol. Neurosurg. Psychiat., núm. 42, pàg. 436-451. BUNGE, R. P.; M. B. BUNGE; C. F. ELDRIDGE (1986). «Linkage between axonal ensheathment and basal lamina production by Schwann cells». Ann. Rev. Neurosci., núm. 9, pàg. 305-328. BUTÍ, M.; E. VERDÚ; R. O. LABRADOR; J. J. VILCHES; J. FORÉS; X. NAVARRO (1996). «Influence of Physical Parameters of Nerve Chambers on Peripheral Nerve Regeneration and Reinnervation». Exp. Neurol., núm. 137, pàg. 26-33. CAMÍ, J. A. (1995). «Investigación científica y conflicto de intereses». Quark, núm. 1, pàg. 96-101. CAMÍ, J. A. (1997). «A vueltas con el fraude en ciencia». Quark, núm. 6, pàg. 37-49. CARMIGNOTO, G.; M. FINESSO; R. SILIPRAND; A. GORIO (1983). «Muscle Reinnervation I. Restoration of transmitter release mehanisms». Neuroscience, núm. 8 (3), pàg. 388-403. CHURCHLAND, P. S. (1986). Neurophilosophy. Cambridge Mass.: The MIT Press. CHURCHLAND, P. S.; T. J. SEJNOWSKI (1990). «The computational Brain». Cambridge Mass.: The MIT Press. DANILOFF, J. K.; G. LEVI; M. GRUMET; F. RIEGER; G. M. EDELMAN (1989). «Altered expression of neural cell adhesion molecules induced by nerve injury and repair». J. Cell Biology, núm. 108, pàg. 625-635. DE MEDINACELI, L.; W. J. FREED; R. J. WYATT (1982). «An
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L'ASSASSINAT DE LA GLOBALITAT 199 index of the functional condition of rat sciatic nerve based on measurements made from walking tracks». Exp. Neurol., núm. 77, pàg. 634-643. DE LA CRUZ, R.; A. PASTOR; J. M. DELGADO-GARCÍA (1996). «Influence of the postsynaptic target on the functional properties of neurons in the adult mammalian central nervous system». Rev. Neurosci., núm. 7, pàg. 115-149. DELACOUR, J. (1995). Le cerveau et l esprit. Paris: Presses Universitàires de France. (Que sais je?) DELLON, A. L.; W. A. CRAWLEY (1992). «Nerve reconstruction with alloplastic material in the head and neck region». Oral Maxillofacial Surg. Clin. N. Amer, núm. 4, pàg. 527-533. DEVOR, M.; C. H. KELLER; T. J. DEERINCK; M. H. ELLISMAN (1989). «Na+ channels accumulation on axolemma of afferent endings in nerve end neuromas in Apteronotus». Neurosci. Lett., núm. 102, pàg. 149-154. DOETSCH, G.; T. HARRISOM; A. MCDONALD; M. LITAKER; SHORT (1996). «Term plasticity in primary somatosensory cortex of the rat: rapid changes in magnitudes and latencies of neuronal responses following digit denervation». Exp. Brain. Res., núm. 112, pàg. 505-512. DONOGHUE, J. P.; S. SUNER; J. N. SANES (1990). «Dynamic organization of primary motor cortex output to target muscles in adult rats. II. Rapid reorganization following motor nerve lesions». Exp. Brain. Res., núm. 70, pàg. 492-503. DYCK, P. J.; E. H. LAMBERT; M. B. WOOD; R. L. LINSCHEID (1988). «Assessment of nerve regeneration and adaptation after median nerve reconnection and digital neurovascular flap transfer». Neurology, núm. 38, pàg. 1586-1591. ECCLES, J. C.; B. LIBET; R. R. YOUNG (1958). «The behaviour of chromatolyzed motoneurons studied by intracellular recording». J. Physiol., núm. 143, pàg. 1140. FIELDS, R. D.; M. H. ELLISMAN (1986a). «Axons regenerated through silicone tube splices. I. Conduction properties». Exp. Neurol., núm. 92, pàg. 48-60. FIELDS, R. D.; M. H. ELLISMAN (1986b). «Axons regenerated through silicone tube splices. II. Functional morphology». Exp. Neurol., núm. 92, pàg. 61-74. FRIEDMAN, B.; D. KLEINFELD; N. Y. IP; V. M. K. VERGE; R. MOULTON; P. BOLAND; E. ZLOTCHENKO; R. LINDSAY; L. LIU (1995). «Neurotrophic influence on injured adult spinal motor neurons». J. Neurosci., núm. 15, pàg. 1044-1056. FU, S.; T. GORDON (1997). «The cellular and molecular basis of peripheral nerve regeneration». Mol. Neurobiol., núm. 14, pàg. 67-115. GARCÍA-SEVILLA, L. (1990). «La filosofia de la ment i la cognició». Monografies de l Associació d Estudiants de Neurociències. Bellaterra. GARRATHY, P. E; R. D. CLOWER; E. A. LA CHICA; J. H. KAAS
(1990). «Thalamic and cortical reorganization after chronic transection of the median and ulnar nerves in adult monkeys». Soc. Neuroscience. Abstract, núm. 16, pàg. 240. GIANNINI, C.; A. C. LAIS; P. J. DYCK (1989). «Number, size, and class of peripheral nerve fibers regenerating after crush, multiple crush, and graft». Brain Res, núm. 500, pàg. 131-138. GÓMEZ, N.; J. CUADRAS; M. BUTÍ; X. NAVARRO (1996). «Histologic assessment of sciatic nerve regeneration following resection and graft or tube repair in the mouse». Restor. Neurol. Neurosci., núm. 10, pàg. 187-196. GORDON, T. (1983). «Dependence of peripheral nerves on their target organs». A: BURNSTOCK, G.; G. VRBOVÁ; R. A. O BRIEN (ed.) Somatic and Autonomic Nerve-Muscle Interactions. Nova York: Elsevier, pàg. 289-323. GORDON, T.; J. GILLESPIE; R. OROZCO; L. DAVIS (1991). «Axonomy-induced changes in the rabbit hindlimb nerves and the effects of chronic electrical stimulation». J. Neurosci., núm. 11, pàg. 2157-2169. GORIO, A.; G. CARMIGNOTO; M. FINESSO; P. POLATO; M. G. NUNZI (1983). «Muscle Reinnervation- II. Sprouting, Synapse formation and repression». Neuroscience, núm. 8 (3), pàg. 403-416. GRAEBER, M. B.; G. W. KREUTZBERG (1988). «Delayed astrocyte reaction following facial nerve axotomy». J. Neurocytol., núm. 17, pàg. 209-220. GRUART, A.; A. GUNKEL; W. F. NEISS; D. N. ANGELOV; E. STENNERT; J. M. DELGADO-GARCÍA (1996). «Changes in eye blink responses following hypoglossal-facial anastomosis in the cat: evidence of unadaptability to new motor tasks». Neuroscience, núm. 73 (1), pàg. 233-247. GUERRERO, R. (1996). «Maneras de hacer ciencia». Quark, núm. 2, pàg. 6-14. GUERRERO, R. (1997). «Una vela en la oscuridad». Quark, núm. 7, pàg. 29-40. HAAS, C. A.; W. J. STREIT; G. W. KREUTZBERG (1990). «Rat facial motoneurons express increased levels of calcitonin gene related peptide mRNA in response to axotomy». J. Neurosci. Res., núm. 27, pàg. 270-275. HUERTA, M.; J. WALL (1987). «The functional territory of the primate median nerve in the hand skin and the cortical map». Soc. Neurosci. Abstr. núm. 13, pàg. 250. IDE, C.; K. TOHYAMA; R. YOKOTA; T. NITATORI; S. ONODERA (1983). «Schwann cell basal lamina and nerve regeneration». Brain. Res., núm. 288, pàg. 61-75. KIMURA, J.; R. L. RODNITZKY; S. H. OKAWARA (1975). «Electrophysiologic analysis of aberrant regeneration after facial nerve paralysis». Neurology, núm. 25, pàg. 989-993. KLINE, D. G. (1990). «Surgical repair of peripheral nerve injury». Muscle Nerve, núm. 13, pàg. 843-852.
200 A. VALERO KLINE, D. G; A. R. HUDSON (1985). «Selected recent advances in peripheral nerve injury research». Surg. Neurol., núm. 24, pàg. 371-376. KORSHING, S. (1993). «The neurotrophic factor concept: a reexamination». J. Neurosc., núm. 13, pàg. 27392748. KREUTZBERG, G. W. (1995). «Reaction of the neuronal cell body to axonal damage». A: WAXMAN, S. G.; J. D. KOCSIS; P. K. STYS (ed.) The Axon: Structure, Function and Pathophysiology. Nova York, Oxford.: Oxford University Press, pàg. 355-374. LABRADOR, R. O.; M. BUTÍ; X. NAVARRO (1995). «Peripheral nerve repair: role of agarose matrix density on functional recovery». Neuroreport, núm. 6, pàg. 2022-2026. LO, A. C.; L. J. HOIENOU; R. W. OPPENHEIMER (1995). «Apoptosis in the nervous system: morphological features, methods, pathology and prevention». Arch. Histol. Cytol., núm. 58, pàg. 139-149. LONGO, F. M.; M. MANTHORPE; S. D. SKAPER; G. LUNDBORG; S. VARON (1983). «Neuronotrophic activities accumulate in vivo within silicone nerve regeneration chambers». Brain. Res., núm. 261, pàg. 109-117. LUNDBORG, G. (1988). Nerve Injury and Repair. Edimburg: Churchill Livingstone. MACKINNON, S. E.; A. L. DELLON (1990). «Clinical nerve reconstruction with a bioabsorbable polyglycolic acid tube». Plast. Reconst. Surg., núm. 85, pàg. 419424. MADISON, R. D.; S. J. ARCHIBALD; T. M. E. BRUSHART (1996). «Reinnervation accuracy of the rat femoral nerve by motor and sensory neurons». J. Neurosci., núm. 16, pàg. 5698-5703. MADISON, R. D.; C. F. DA SILVA; P. DIKKES; R. L. SIDMAN; T. H. CHIU (1987). «Peripheral nerve regeneration with entubulation repair: Comparison of biodegradable nerve guides versus polyethylene tubes and the effects of a laminin-containing gel». Exp. Neurol., núm. 95, pàg. 378-390. MELVILLE, S.; T. E. SHERBURN; R. E. COGGESHALL (1995). «Preservation of sensory cells by placing stumps of transected nerve in an impermeable tube». Exp. Neurol., núm. 105, pàg. 311-315. MENDELL, L. M. (1984). «Modifiability of Spinal Synapses». Physiol. Rev., núm. 64, pàg. 260-324. MEWS, M.; MEYER, M. (1993). «Modulation of Schwann cell phenotype by TGF-b-1: Inhibition of P0 mRNA expression and downregulation of the low affinity NGF receptor». Glia, núm. 8, pàg. 208-217. MILLESI, H. (1981). «Reappraisal of nerve repair». Surg. Clin. N. Am., núm. 61, pàg. 321-340. MONTSERRAT, L.; M. BENITO (1988). «Facial Synkinesis and aberrant regeneration of facia nerve». Adv. Neurol., núm. 49, pàg. 211-224. MORA, F.; M. SANGUINETTI (1992). Diccionario de Neurociencias. Madrid: Alianza.
MÜLLER, H. W.; L. R. WILLIAMS; S. VARON (1987). «Nerve regeneration chamber: evaluation of exogenous agents applied by multiple injections». Brain. Res., núm. 413, pàg. 220-326. MUNRO, C.; J. SZALAI; S. MACKINNON; R. MIDHA (1998). «Lack of association between outcome measures of nerve regeneration». Muscle Nerve, núm. 21, pàg, 1095-1097. NATURE NEUROSCIENCE. (1998). «Editorial: From neurons to thoughts: exploring the new frontier, núm. 1 (maig). NAVARRO, X.; F. J. RODRÍGUEZ; R. O. LABRADOR; M. BUTÍ; D. CEBALLOS; N. GÓMEZ; J. CUADRAS; G. PEREGO (1996). «Perinteral nerve regeneration through biorebsorbable and durable nerve guides», J. Periph. Nerv. System, núm. 1, pàg. 57-64. NAVARRO, X.; E. VERDÚ; M. BUTÍ (1994). «Comparison of regenerative and reinnervating capabilities of different functional types of nerve fibers». Exp. Neurol., núm. 129, pàg. 217-224. NIETO-SAMPEDRO, M. (1996). «Plasticidad neural: una propiedad básica que subyace desde el aprendizaje a la reparación de lesiones». A: MORA F. (ed.). El cerebro íntimo, Barcelona: Ariel, pàg. 66-96. NISSL, F. (1882). «Über die Veränderungen der Ganglienzellen am Facialis-Kern des Kaninchens nach Aureissung der Nerven». Allg. Z. Psychiat, núm. 48, pàg. 197-198. PASTOR, A. M.; B. MORENO-LÓPEZ; R. DE LA CRUZ; J. M. DELGADO-GARCÍA (1997). «Effects of botulinum neurotoxin type A on abducens motoneurons in the cat: ultrastructural and synaptic alterations». Neuroscience, núm. 81 (2), pàg. 457-478. POLITIS, M. J.; K. EDERLE; P. S. SPENCER (1982). «Tropism in nerve regeneration in vivo. Attraction of regenerating axons by diffusible factors derived from cells in distal nerve stumps of transected peripheral nerves». Brain Res., núm. 253, pàg. 1-12. RAIVICH, G.; G. W. KREUTZBERG (1993). «Peripheral nerve regeneration: role of growth factors and their receptors». Int. J. Dev. Neurosci., núm. 11, pàg. 311-324. RAMÓN y CAJAL, S. (1898). Reglas y consejos sobre la investigación científica. Los tónicos de la voluntad. Madrid: Espasa Calpe. RAMÓN y CAJAL, S. (1913). Estudios sobre la degeneración y regeneración del sistema nervioso. Tomo I. Degeneración y Regeneración de los nervios. Madrid. REICHERT, F.; A. SAADA; S. ROTSHENKER (1994). «Peripheral nerve injury induces Schwann cells to express two macrophages phenotypes: phagocytosis and the galactose-specific lectin» MAC-2. J. Neurosci., núm. 14, pàg. 3231-3245. ROGERS, S. L.; P. C. LETOURNEAU; S. L. PALM; J. B. MCCARTHY; L. T. FURCHT (1983). «Neurite extension by peripheral and central nervous system neurons in response to substratum-bound fibronectin and laminin». Dev. Biol., núm. 98, pàg. 212-220.
DE LA DESINTEGRACIÓ DEL CONEIXEMENT CIENTÍFIC A L'ASSASSINAT DE LA GLOBALITAT 201 SANES, J. N.; S. SUNER; J. P. DONOGHUE (1990). «Dynamic organization of primary motor cortex output to target muscles in adult rats. I. Long-term paterns of reorganization following motor or mixed peripheral nerve lesions». Brain Res., núm. 79, pàg. 479-491. SELZER, M. E. (1980). Regeneration of peripheral nerve. The physiology of peripheral nerve disease. Philadelphia: Saunders, pàg. 358-431. SJÖBERG, J.; M. KANGE; A. EDSTRÖM (1988). «Influence of non-neuronal cells on regeneration of the rat sciatic nerve». Exp. Brain Res, núm. 453, pàg. 221-226. SNIDER, W. D. (1994). «Function of the neurotrophins during nervous system development: what the knockouts are teaching us». Cell, núm. 77, pàg. 627-638. SNIDER, W. D; J. L. ELLIOT; Q. YAN (1992). «Axotomy-induced neuronal death during nervous system development». J. Neurosci. Res., núm. 37, pàg. 278-286. SUMNER, A. J. (1989). «Aberrant peripheral nerve regeneration». A: AAEE Symposium, pàg. 35-36. SUMNER, A. J. (1990). «Aberrant reinnervation». Muscle Nerve, núm. 13, pàg. 801-803. SUNDERLAND, S. (1978). Nerve and nerve injuries. Edimburg: Churchill Livingstone. SUNDERLAND, S. (1991). Nerve injuries and their repair. A critical appraisal. Edimburg: Churchill Livingstone. VALLS-SOLÉ, J.; E. TOLOSA; M. PUJOL (1992). «Miokymic discharges and enhanced facial nerve reflex resposnses after recovery from idiopathic facial palsy». Muscle Nerve, núm. 15, pàg. 37-42. VARON, S.; L. R. WILLIAMS (1986). «Nerve regeneration chamber: physical and molecular influences». Exp. Brain Res, suplement 13, pàg. 309-316. VERDÚ, E.; X. NAVARRO (1998). «The role of Schwann cell in nerve regeneration». A: NIETO-SAMPEDRO M.; B. CASTELLANO; B. GONZALEZ (ed.) Understanding Glial Cells. Boston: Kluwer Academic Publishers, pàg. 319-359.
VERGE, V. M. K.; K. A. GRATTO; L. A. KARCHEWSKI; P. M. RICHARDSON (1996). «Neurotrophins and nerve injury in the adult». Phil. Trans. Roy. Soc. Lond. B 1996, núm. 351, pàg. 423-430. WALL, J.; D. J. FELLEMAN; J. KAAS (1983). «Recovery of normal topography in the somatosensory cortex of monkeys after nerve crush and regeneration». Science, núm. 221, pàg. 771-773. WALL, J.; J. KAAS (1986). «Long-term cortical consequences of reinnervation errors after nerve regeneration in monkeys». Brain Res, núm. 372, pàg. 400-404. WALLER, A. V. (1850). «Experiments on the section of the glossopharungeal and hypoglossal nerves of the frog, and observation on the alteration produced thereby in the structure of their primitive fibres». Philos. Trans. R. Soc. Lond. (Biol.), núm. 140, pàg. 423-473. WASSERSCHAFF, M. (1990). «Coordination of reinnervated muscle and reorganization of spinal cord motoneurons after nerve transection in mice». Brain Res, núm. 515, pàg. 241-246. WAXMAN, S. G. (1988). «Biophysical mechanisms of impulse conduction in demyelinated axons». Adv. Neurol., núm. 47, pàg. 185-213. WILLIAMS, L. R.; H. C. POWELL; G. LUNDBORG; S. VARON (1984). «Competence of nerve tissue as distal insert promoting nerve regeneration in a silicone chamber». Brain Res., núm. 293, pàg. 201-211. ZHANG, J.; J. MING; F. DONELLY; D. SONG; XUE-JUN; R. H. LAMOTTE (1997). «Axotomy increases the excitability of dorsa root ganglion cells with unmyelinated axons». J. Neurophysiol., pàg. 2790-2794. ZIGMOND, R. E.; H. HYATT-SACHS; R. P. MOHNEY; R. C. SCHREIBER; A. M. SHADIAK; Y. SUN; S. A. VACCARIELLO (1997). «Changes in Neuropeptide Phenotype after axotomy and the role of Leukaemia inhibitory factor». Perspectives Dev. Neurobiol.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 203-211
LA COMPRENSIÓ DE LA CONDUCTA: APORTACIONS DE LA GENÈTICA MOLECULAR ROSA M. ESCORIHUELA Unitat de Psicologia Mèdica. Departament de Psiquiatria i Medicina Legal. Facultat de Medicina. Universitat Autònoma de Barcelona. Adreça per a la correspondència: Unitat de Psicologia Mèdica. Departament de Psiquiatria i Medicina Legal. Facultat de Medicina. Universitat Autònoma de Barcelona. 08193 Bellaterra (Barcelona). Telèfon: 34-93-581 23 78. Fax: 34-93-581 14 35.
ELS ESTUDIS AMB MÈTODES CLÀSSICS Als laboratoris de les facultats de psicologia, l estudi de la genètica de la conducta començà per la criança selectiva de rosegadors que mostraven conductes extremes en tests d ansietat, exploració, aprenentatge, ingesta d alcohol o d altres. D aquesta manera s han generat diferents models animals que han estat molt útils per a la recerca conductual, endocrinològica, neuroquímica, morfològica i electrofisiològica de processos neuropsicològics implicats en el comportament. Per exemple, les rates Romanes d alta i baixa evitació (RHA i RLA, respectivament) s obtingueren a partir de la conducta que mostraven rates d una soca comuna, Wistar, en aprendre a evitar un xoc elèctric precedit per un senyal acústic i/o lumínic. Amb aquest procediment, es generaren dues línies de rates: la RHA, evitadora, amb una execució de 65 % de respostes
correctes en la primera sessió d entrenament; i la RLA, no evitadora, que tot just arriba a fer el 2 % de respostes correctes. L estudi del fenotip conductual d aquests animals ha revelat que a més a més de les diferències esmentades, les dues soques divergeixen en el seu perfil emotiu, de percaça de sensacions i en habilitats cognitives (Escorihuela et al., 1994; Fernández-Teruel et al., 1997; Steimer et al., 1997). El treball neuroendocrinològic i neuroquímic indica que les reaccions ansioses de la soca poc evitadora estan acompanyades d alliberaments d hormones d estrès més elevades que les de la soca evitadora; i també, que la funcionalitat de sistemes de neurotransmissors relacionats amb la percaça de sensacions, com el de la dopamina, és més alta en la soca evitadora (Corda et al., 1997; Driscoll et al., 1998; Giorgi et al., 1997). L estratègia d estudiar soques de rates obtingudes per criança selectiva a partir de la conducta que els animals mostraven en
204 R. M. ESCORIHUELA
un paradigma experimental, ha donat lloc a altres parelles de soques amb conductes divergents, com ara les relacionades amb drogues d abús (Crabbe et al., 1994), per a l autoestimulació intracraneal, per a la resolució de laberints, etc. (Driscoll 1988, 1989, 1991 per a referències). Per un altre costat, des dels laboratoris de les facultats de biologia, la feina dirigida a l obtenció de soques consanguínies de ratolins ha estat aprofitada per iniciar la recerca sobre les bases genètiques d algunes conductes. Actualment es coneix el fenotip conductual de la majoria de soques consanguínies de ratolins que hi ha (ens referim específicament a les soques naturals i no a les soques consanguínies mutants o obtingudes per manipulació genètica). S han avaluat conductes d ansietat en conflictes experimentals de magnitud diversa (camp obert, laberint elevat en creu, evitació passiva, por condicionada, etc.) i també les habilitats cognitives en models d aprenentatge senzills no associatius (habituació), en models complexos d aprenentatge espacial (laberints radials, test de Morris) i en paradigmes de condicionament (evitació activa). També es coneixen algunes conductes agressives, de comportament sexual i reproductiu, i altres relacionades amb els efectes de subtàncies d abús i psicofàrmacs com l alcohol, la cocaïna, els opiacis, els antipsicòtics o els ansiolítics (veure Crawley et al., 1997). Però la feina encara no s ha acabat. Per un costat diverses característiques conductuals en algunes de les soques estan pendents d ésser avaluades; per l altre, hi ha pocs estudis que comparin un nombre gran de soques. Això últim seria molt útil per conèixer la distribució conductual d aquestes soques, la qual cosa permetria escollir amb més coneixement els animals més idonis per a testar hipòtesis específiques. Amb les soques obtingudes per criança selectiva en funció d una característica con-
ductual i amb les soques de ratolins consanguínies, també s ha treballat per avaluar la influència de variables ambientals rellevants en el comportament i per detectar interaccions significatives entre factors genètics i ambientals. En referència a això últim, al nostre laboratori hem fet diversos experiments amb l objectiu d estudiar els efectes de diversos tractaments d estimulació infantil en les rates Romanes. Globalment observàrem que el tractament d enriquiment ambiental, que consistí en col·locar els animals en grups de deu en gàbies grans amb objectes i joguines que es canviaven cada dos dies, augmentava la conducta exploratòria de manera espectacular i disminuïa l emotivitat de les rates RHA. En canvi, un altre tipus d estimulació, que consistia en col·locar els animals individualment en gàbies durant deu minuts diaris durant tot el període d alletament, tenia aquells mateixos efectes en les rates de la soca RLA específicament (Escorihuela et al., 1994; Fernández-Teruel et al., 1997). Fins aquí hem esmentat estratègies que durant anys han estat profitoses per a la recerca dels factors genètics i ambientals que influeixen en el comportament. En la resta d aquest capítol presentem alternatives d incorporació recent que produiran coneixement nou de manera ràpida i eficaç durant els propers anys. Les alternatives i els exemples que es presenten tracten essencialment d aprofitar models animals amb genomes totalment o parcialment coneguts per a l estudi de conductes més o menys complexes, processos neuropsicològics o mecanismes neurobiològics implicats. Són aportacions fetes des d una branca de la biologia, la genètica molecular, que han originat una revolució en l estudi del comportament. Concretament, perquè fan possible la manipulació de característiques genètiques de l organisme i l avaluació conductual dels efectes d aquestes manipulacions.
LA COMPRENSIÓ DE LA CONDUCTA: APORTACIONS DE LA GENÈTICA MOLECULAR 205
ELS GENS, EL SISTEMA NERVIÓS I EL COMPORTAMENT Sydney Brenner (1974) inicià l estudi de mutants de Caenorhabditis elegans, amb el propòsit d abordar-lo en dues parts: primer, com els gens produeixen el sistema nerviós i segon, com el sistema nerviós produeix conductes. A més a més de ser un organisme amb un genoma petit (8x10⁷ parells de bases aproximadament, la meitat de les que hi ha al genoma de la Drosophila, organitzats en sis cromosomes haploides), i de neuromorfologia i conductes simples, el nematode Caenorhabditis elegans ofereix una combinació d avantatges interessant. La majoria de cucs adults són hermafrofites que s autofecunden, tot i que també hi ha un nombre petit de mutants mascles que s aparellen amb els hermafrodites adults. El sistema nerviós dels individus hermafrodites el formen 302 neurones i el dels individus mascles 381; la qual cosa fa possible que cadascuna de les neurones estigui anatòmicament identificada i numerada; fins i tot estan identificades les cinc mil sinapsis, sis-centes unions gap i dues mil unions neuromusculars que estableixen les neurones. A més a més, la funció de cada neurona pot ésser estudiada individualment perquè es disposa d una tècnica que permet eliminar-les selectivament amb un làser, de manera que les neurones veïnes es mantenen intactes. Pel que fa al repertori conductual, aquests organismes responen a estímuls tàctils, vibracions del medi, gradients de concentració químics o canvis de temperatura, amb moviments ondulants produïts per la contracció rítmica dels músculs dorsals i ventrals. Poden fer aprenentatges no associatius, com l habituació, la deshabituació i la sensibilització; i també associatius, com per exemple, dirigir-se a substàncies químiques prèviament associades amb menjar i evitar d altres associades amb estímuls aversius.
Una de les conductes més sorprenents d aquests nematodes és la resposta sensorial a substàncies oloroses volàtils (Tomas, 1994). En una atmosfera que contingui un gradient químic olorós, responen a l estímul amb moviments dirigits amunt o avall. El que crida més l atenció és que, de les cent vint substàncies provades fins ara, els animals n han detectat la meitat; fins i tot en ambients saturats amb diverses olors són capaços de dirigir-se al gradient d altres. Se sap que la informació sensorial és processada per dos tipus de neurones sensorials que identifiquen set tipus d olors, i ja hi ha vint gens implicats en aquesta resposta sensorial. Però en C. elegans la defecació també és una conducta complexa ordenada en tres moviments consecutius, cadascun dels quals és produït per un múscul diferent (posterior, anterior i entèric). L estudi de diversos organismes mutants ha demostrat que cadascun dels moviments està controlat per un conjunt de gens diferents, però que també hi ha conjunts de gens independents d aquests que controlen alhora els moviments dels músculs anterior i entèric. La qual cosa suggereix que hi pot haver diferents alternatives genètiques per a la regulació d algunes conductes (Tomas, 1994). Tot plegat il·lustra com en un organisme amb la descripció completa del genoma, la morfologia del sistema nerviós i el repertori conductual, serà possible traçar ordenadament i amb precisió quins elements del genoma intervenen en el desenvolupament i formació del sistema nerviós; i també, quins elements del sistema nerviós intervenen en cadascuna de les conductes. A través de passes successives s identificaran les mutacions que afecten la diferenciació i la migració cel·lular durant l ontogènia, les que afecten l especificitat sinàptica i el mapa neuroanatòmic, i les que provoquen alteracions en els sistemes de neurotransmissió.
206 R. M. ESCORIHUELA
Paral·lelament, de cadascuna de les alteracions es tindrà la correspondència en la conducta dels animals i es podrà estudiar la influència de variables ambientals en l expressió fenotípica (Rankin i Beck, 1992). LA RECERCA SOBRE LES BASES GENÈTIQUES DE LA MEMÒRIA El coneixement dels mecanismes que intervenen en l aprenentatge i la memòria és un objectiu prioritari en la comprensió del comportament. Temporalment podem distingir la memòria a curt termini (la informació roman només unes poques hores) i la memòria a llarg termini (vint-i-quatre hores o més). En la Drosophila melagonaster s ha identificat un gen clau per a l establiment de memòries a llarg termini. Tim Tully i col·laboradors (Connolly i Tully, 1996) han trobat el factor de transcripció CREB, que produeix dues formes isomorfes de proteïna, l una activadora i l atra inhibidora. Els experiments fets amb mosques transgèniques han mostrat que l expressió de la forma repressora bloqueja la formació de memòries a llarg termini sense interferir amb la formació de memòries a curt termini; en canvi, l expressió de la forma activadora millora la memòria a llarg termini específicament. Per fer aquests experiments, els investigadors han escollit una situació experimental que consisteix a entrenar les mosques a evitar una substància olorosa prèviament associada a un corrent elèctric. Per tal d associar els dos estímuls, els animals es col·loquen inicialment en un recipient amb la superfície electrificada on s ha injectat un aire que conté la substància olorosa. Posteriorment, els animals es col·loquen al centre d un laberint en forma de T on es fan convergir dos corrents d aire amb olors diferents, un dels quals correspon a l olor coneguda. Amb diverses repeticions d aquest procediment,
s aconsegueix que el 90 % de les mosques evitin l olor associada prèviament al corrent elèctric desplaçant-se cap al braç oposat del laberint. Sorprenentment, els experiments (Connolly i Tully, 1996; Tully, 1998) revelaren que les mosques transgèniques que sobreexpressen la forma activadora de CREB en tenien prou amb una sessió, en canvi les mosques normals necessitaven deu sessions d entrenament separades per períodes de descans. Molt recentment, la troballa s ha dut als mamífers. El grup de Soren Impey (Impey et al., 1998) ha vist que la forma activadora s expressava específicament en l hipocamp de ratolins transgènics per CRElacZ entrenats en una tasca de condicionament al context. Se sap que l hipocamp és l estructura clau que fa possible aprendre l associació entre estímuls aversius i el context on es produeixen. En el futur es preveu que aquesta proteïna servirà per marcar les neurones i els circuits neurals que participen en la formació de memòries a llarg termini en mamífers. Aproximacions com ara aquesta il·lustren com el coneixement d un organisme senzill com la Drosophila ajudaran a dilucidar una part de la seqüència d esdeveniments subjacents a la conducta. LES ANÀLISIS DE QTL PER A CONDUCTES DE POR I LA INGESTA D ALCOHOL Una de les tècniques que ha generat més expectatives és l anàlisi de quantitative trait locus (QTL) (Lander i Kruglyak, 1995). Consisteix en encreuar individus homozigots de dues soques (A i B) que s han fet consanguínies al llarg de generacions, i que mostren fenotips divergents per a la conducta que es vulgui analitzar. Després s encreuen els individus obtinguts en la primera generació
LA COMPRENSIÓ DE LA CONDUCTA: APORTACIONS DE LA GENÈTICA MOLECULAR 207
(F1) per tal d obtenir-ne la segona (F2) portadora de cromosomes recombinants amb material genètic d A i B. A continuació s estudia la conducta que correspongui en els animals F2. Cal conèixer marcadors genètics repartits per tot el genoma que difereixin entre les soques parentals A i B, i determinar si els individus F2 han heredat el tipus A o B per a cadascun dels marcadors. Amb metodologia estadística sofisticada que inclou variants de models lineals, els fragments cromosòmics recombinants i no recombinants es relacionen amb el fenotip conductual que correspon a cadascun dels individus. Finalment s identifiquen els locus significatius per a la conducta analitzada. Un cop identificada la localització cromosòmica, el clonatge del DNA d aquesta regió permetrà la identificació del gen. Fins ara, aquesta tècnica s ha utilitzat per identificar locus associats a diverses conductes relacionades amb l addicció a substàncies d abús en el ratolí. Per exemple, s han identificat regions relacionades amb la son induïda per alcohol al cromosoma 11, amb l abstinència de l alcohol o la preferència per la sacarina al cromosoma 6 i amb la preferència per l alcohol als cromosomes 2 i 7. Al mig del cromosoma 9 hi ha regions relacionades amb la sensibilitat a l atàxia, la tolerància a la hipotèrmia, el condicionament pel lloc de preferència, el consum de metamfetamina, la catalèpsia induïda per haloperidol i d altres. Aquesta localització cromosòmica és especialment interessant per la presència del receptor 2 de la dopamina (D2), un neurotransmissor clau en els sistemes de reforçament cerebral i en els circuits responsables de l activació motora. Conductes relacionades amb l ansietat també han estat sotmeses a anàlisi de QTL, i les dades obtingudes per diferents laboratoris són homogènies pel que fa a les regions cromosòmiques identificades. Jonathan Flint et al. (1995) foren els primers en relacio-
nar locus dels cromosomes 1, 12 i 15 amb conductes d activitat i defecació al camp obert, en un laberint en Y i en el laberint elevat en creu. Més recentment (Caldarone et al., 1997; Wehner et al., 1997), regions del cromosoma 1 també han estat associades a la conducta de petrificació que mostren els rosegadors quan se ls presenta un estímul (visual, auditiu) prèviament associat a un corrent elèctric (por condicionada). Les anàlisis de QTL són aplicables a gairebé totes les variables conductuals, però la limitació més important de la tècnica és que es necessita un nombre molt gran d individus F2, la qual cosa n augmenta el cost i el temps. No obstant això, la tendència a analitzar conductes amb aquesta tecnologia augmenta amb rapidesa. A més a més, ja hi ha treballs on es localitzen QTL de conductes molt específiques, podríem dir que dissecades. Per exemple, l activitat dels rosegadors al camp obert es pot descompondre al llarg del temps, ja que a l inici del test els subjectes tendeixen a romandre un temps immòbils al centre de l aparell (immobilitat inicial, por induïda per la novetat de la situació); o en els diferents espais, perquè els animals recorreran més o menys el centre de la superfície segons estiguin més o menys atemorits. Doncs bé, ja hi ha publicacions amb les localitzacions cromosòmiques d immobilitat inicial o del tipus d exploració (Gerhenfeld et al., 1997). Probablement en els propers anys veurem un munt de QTL per a conductes dissecades així, i no ens hem de sorprendre si inicialment hi ha poca convergència entre els treballs fets a diferents laboratoris. El cert és que en les valoracions conductuals de les soques parentals i dels individus F2, les diferències en procediments experimentals o en les condicions de manteniment o manipulació dels animals són molt rellevants per a la consistència dels resultats, i és probable que aquests factors generin discordància en les localitzacions cromosòmiques.
208 R. M. ESCORIHUELA
EL PROBLEMA DEL CONTEXT GENÈTIC EN KNOCKOUTS I TRANSGÈNICS Per últim, els avenços en genètica molecular han posat a disposició de la comunitat científica una quantitat aclaparadora de ratolins amb manipulacions genètiques molt diverses que fan possible l estudi de gens concrets i els seus productes. Per exemple, en una revisió recent (Jucker i Ingram, 1997) on es repassen els models de ratolí disponibles en el camp de l envelliment i de les malalties neurodegeneratives, apareixen una vintena d animals transgènics o knockouts. Els estudiosos del comportament ja han començat a estudiar les característiques conductuals d aquests animals, però la feina no és gens fàcil. Cal tenir present que en molts casos, els tests de conducta i els procediments havien estat validats i estandarditzats per a rates de laboratori, essent necessari adaptar les mides dels aparells i els procediments experimentals als ratolins. Però el problema més important en l estudi del efectes conductuals de la manipulació genètica és la seva interpretació. La majoria de manipulacions genètiques es fan en cultius de cèl·lules embrionàries derivades de la soca de ratolins 129. Posteriorment les cèl·lules de tipus 129 portadores de la manipulació genètica s introdueixen en embrions, els quals, si tot va bé, arribaran a terme i es desenvoluparan en animals adults. Posteriorment, la manipulació genètica es pot transmetre a generacions futures encreuant els animals adults. Normalment s usen individus normals d altres soques, com ara la C57BL6/6, perquè tenen una bona viabilitat; un cop obtinguda la primera generació F1, s obté la segona F2. Amb el procediment anterior s aconsegueixen alteracions genètiques col·locades en contexts genètics diferents en funció de la soca d animals que s utilitza per als en-
creuaments, essent la C57 la més habitual però no l única. Aquest fet origina la primera dificultat en la interpretació dels resultats, perquè s ha vist en diversos casos que les alteracions conductuals que s observen en els animals depèn de quina sigui la soca normal usada per als encreuaments. Per exemple, Hsiao et al., (1995) construïren un ratolí amb transgens de la proteïna precussora del ß-amiloide amb animals de la soca FVB/N. Aquest ratolins transgènics mostraven mort prematura (sovint al voltant dels cent dies d edat), dèficits importants en tasques d aprenentatge espacial, conducta neofòbica i disminució del consum de glucosa en algunes àrees corticals, encara que no s observà la neuropatologia pròpia de la malaltia d Alzheimer. En canvi, si els transgens es col·locaven en contextos genètics diferents com ara l encreuament C57BL/6,SJL no s observava cap dels efectes anteriors (Hsiao et al., 1995). La segona dificultat per poder interpretar els resultats prové de les recombinacions genètiques que hi ha en la població d individus F2. Hi trobem subjectes homozigots per la manipulació genètica, heterozigots i normals, però també subjectes amb genomes recombinants. Com que la probabilitat de recombinació disminueix a mesura que ens allunyem del locus del gen manipulat, els al·lels tipus 129 de gens amb locus propers i el locus que contingui la manipulació genètica es mantenen junts en els individus F2 que en siguin portadors. En canvi, els individus F2 no portadors de la manipulació, contindran al·lels normals, tipus C57 per exemple, en la mateixa regió cromòsomica. Paradoxalment, la soca 129 de ratolins és una de les més particulars pel que fa al seu comportament: mostren dificultats greus en models d aprenentatge espacial i molt poca activitat motora, a més a més d alteracions neurològiques importants com ara disgènesi del cos callós (Lipp i Wahlsten, 1992). El
LA COMPRENSIÓ DE LA CONDUCTA: APORTACIONS DE LA GENÈTICA MOLECULAR 209
problema principal és que animals amb manipulació genètica procedents de cèl·lules 129 manifesten alteracions conductuals molt semblants a les de la soca 129, tot i que la soca receptora sigui una altra, la qual cosa evidencia la influència del context genètic en la interpretació de les dades conductuals (Crawley 1996; Gerlai 1996). La solució proposada pels experts als problemes anteriors es basa en establir altres línies cel·lulars alternatives a partir d altres soques que no siguin la 129, i posteriorment encreuar els animals adults portadors de la manipulació genètica amb individus que siguin de la mateixa soca que la línia germinal (Crawley 1996; Gerlai 1996). D aquesta manera les recombinacions deixarien de ser un problema perquè el material recombinat seria idèntic en els dos progenitors. Ara bé, abans d això caldria obtenir la distribució conductual completa de totes les línies consanguínies de ratolins que hi ha, per tal d escollir les més adequades per a l establiment de les línies cel·lulars. Convindrà triar aquelles soques que es col·loquin en posicions intermèdies en la distribució, per tal de poder estudiar efectes de manipulacions genètiques que augmentin o disminueixin el valor de la variable, segons correspongui (Crawley, 1996; Crawley et al., 1997). CONCLUSIONS La riquesa de les estratègies proposades fins aquí permetrà identificar gens que intervenen en mecanismes i processos biològics subjacents en conductes específiques, la qual cosa és imprescindible per explicar el comportament en tota la seva extensió. Durant els propers anys, en el nematode Caenorhabditis elegans trobarem l explicació de relacions funcionals entre els gens, la neuromorfologia del sistema nerviós i la conducta
d aquesta espècie; en la Drosophila s identificaran altres mecanismes relacionats amb les memòries que permetran completar el panorama i probablement, estudiar també els efectes conductuals d interaccions gèniques. Però pel que fa a l estudi del comportament, la feina més necessària cal fer-la en els rosegadors. Es generaran una gran quantitat de noves dades a partir de les anàlisis de QTL i l estudi d animals amb manipulació genètica. Però caldrà ser minuciós en la manera de treballar per facilitar la interpretació dels resultats. La dissecció de les conductes donarà lloc a un gran nombre de localitzacions cromosòmiques que poden ésser heterogènies entre els diferents treballs a causa de diferències en el procediment experimental dels tests conductuals. Per un altre costat, si bé la infinita varietat d animals amb manipulació genètica que és possible generar fa possible l estudi d hipòtesis específiques referides a la implicació de gens, cal tenir en compte que les interaccions amb el context genètic on es col·loquen aquelles manipulacions genètiques poden invalidar el resultats obtinguts. Essencialment es tracta de treballar de manera que els efectes de la manipulació genètica puguin ésser diferenciats de les interaccions. Hi ha propostes basades en l ús de noves línies cel·lulars i en soques consanguínies prèviament caracteritzades conductualment. Tota la feina proposada ens durà al coneixement de gens i d interaccions gèniques, però amb això no n hi haurà prou. Les nostres actuacions en el món són el resultat d interaccions molt complexes entre la informació genètica continguda en el nostre DNA i les nostres experiències, en les quals intervé el sistema nerviós. Per a comprendre el comportament humà caldrà dilucidar amb força precisió altres problemes, com ara el funcionament dels nostres sistemes perceptius, que en definitiva són els canals d entrada a través dels quals coneixem l en-
210 R. M. ESCORIHUELA
torn. O bé, la producció i l ús del llenguatge com a eina de pensament i de comunicació, les relacions socials, etc. Però això ja no és únicament feina de la biologia. Hi ha d altres disciplines, especialment la psicologia, que s hi hauran d esforçar. AGRAÏMENTS Aquest treball ha rebut suport de la CIRIT (1998SGR 00070) i la DGICYT (PM960068). BIBLIOGRAFIA BRENNER S. (1974). «The genetics of Caenorhabditis elegans». Genetics, núm. 77, pàg. 71-94. CALDARONE, B.; C. SAAVEDRA; K. TARTAGLIA; J. WEHNER; B. C. DUDEK; L. FLAHERTY (1997). «Quantitative Trait Loci Analysis Affecting Contextual Conditioning in Mice». Nature Genetics, núm. 17, pàg. 335-337. CONNOLLY, J. B.; T. TULLY (1996). «You Must Remember this». The Sciences, (maig/juny), pàg. 37-42. CORDA, M.; D. LECCA; G. PIRAS; G. DI CHIARA; O. GIORGI. (1997). «Biochemical Parameters of Dopaminergic and GABAergic Neurotransmission in the CNS of Roman high-avoidance and Roman low-avoidance Rats». Behav. Genet., núm. 27, pàg. 527-536. CRABBE, J. C.; J. K. BELKNAPP; K. J. BUCK (1994). «Genetic Animal Models of Alcohol and Drug Abuse». Science, núm. 264, pàg. 1715-1723. CRAWLEY, J. N. (1996). «Unusual Behavioral Phenotypes of Inbred Mouse Strains». Trends Neurosci., núm. 19, pàg. 181-182. CRAWLEY, J.N.; J. K. BELKNAP; A. COLLINS, J. C. CRABBE; W. FRANKEL; N. HENDERSON; R. J. HITZEMAN; S. C. MAXSON; L. L. MINER; A. J. SILVA; J. M. WEHNER; A. WYNSHAW-BORIS; R. PAYLOR (1997). «Behavioral Phenotypes of Inbred Mouse Strains: Implications and Recommendations for Molecular Studies». Psychopharmacology, núm. 132, pàg. 107-124. DRISCOLL, P. (1988). «Genetic Models in Brain and Behavior Research». Part I. Experientia, núm. 44, pàg. 463464. DRISCOLL, P. (1989). «Genetic Models in Brain Behavior Research». Part II. Experientia, núm. 45, pàg. 787-788. DRISCOLL, P. (1991). «Genetic Models in Brain and Behavior Research». Part III. Experientia, núm. 47, pàg. 988-999. DRISCOLL, P.; R. M. ESCORIHUELA; A. FERNÁNDEZ-TERUEL; O. GIORGI; H. SCHWEGLER; TH. STEIMER; A. WIERSMA;
M.G. CORDA; J. FLINT; J.M. KOOLHAAS; W. LANGHANS; P. E. SCHULZ; J. SIEGEL; A. TOBEÑA (1998). «Genetic Selection and Differential Stress Responses. The Roman Lines/strains of Rats». A: P. CSERMELY (ed.): Stress of Life. From Molecules to Man. Nova York: The New York Academy of Sciences, (Annals of the New York Academy of Sciences, núm. 851). pàg. 501-510. ESCORIHUELA, R. M.; A. TOBEÑA; A. FERNÁNDEZ-TERUEL (1994). L estimulació Infantil. Efectes de l ambient primerenc i l herència sobre l emotivitat i l aprenentatge. Bellaterra: Servei de Publicacions de la Universitat Autònoma de Barcelona. FERNÁNDEZ-TERUEL, A.; R. M. ESCORIHUELA; B. CASTELLANO; B. GONZÁLEZ; A. TOBEÑA. (1997). «Neonatal Handling and Environmental Enrichment Effects on Emotionality, Novelty/reward Seeking, and Age-related Cognitive and Hippocampal Impairments: Focus on the Roman Rat Lines». Behav. Genet., núm. 27, pàg. 513-526. FLINT, J.; R. CORLEY; J. C. DE FRIES; D. W. FULKER; J. A. GRAY; S. MILLER; A. C. COLLINS (1995). «A Simple Genetic Basis for a Complex Psychological Trait in Laboratory Mice». Science, núm. 269, pàg. 1432-1435. GERHENFELD, H. K.; P. E. NEUMANN; C. MANTIS; J. N. CRAWLEY; X. LI; S. M. PAUL (1997). «Mapping Quantitative Trait Loci for Open-field Behavior in Mice». Behavior Genetics, núm. 27, pàg. 201-210. GERLAI, R. (1996). «Gene-targeting Studies of Mammalian Behavior: is it the Mutation or the Background Genotype?». Trends Neurosci., núm. 19, pàg. 177-181. GIORGI, O.; M. CORDA; G. CARBONI; V. FRAU; V. VALENTINI; G. DI CHIARA. (1997). «Effects of Cocaine and Morphine in Rats from two Psychogenetically Selected Lines: a Behavioral and Brain Dialysis Study». Behav. Genet., núm. 27, pàg. 537-546. HSIAO, K. K.; D. R. BORCHELT; KOLSON; R. JOHANNSDOTTIR; C. KITT; W. YUNIS; S. XU; C. ECKMAN; S. YOUNKIN; D. PRICE; C. IADECOLA; H. B. CLARK; G. CARLSON. (1995). «Age-related CNS Disorder and Early Death in Transgenic FVB/N Mice Overexpressing Alzheimer Amyloid Precussor Protein». Neuron, núm. 15, pàg. 1203-1218. IMPEY, S.; D. M. SMITH; K. OBRIETAN; R. DONAHUE; C. WADE; D. R. STORM (1998). «Stimulation of cAMP Response Element (CRE)-mediated Transcription During Contextual Learning». Nature Neuroscience, núm. 7, pàg. 595-601. JUCKER, M.; D. K. INGRAM (1997). «Murine Models of Brain Aging and Age-related Neurodegenerative Diseases». Behav. Brain Res., núm. 85, pàg. 1-25. LANDER, E.; L. KRUGLYAK (1995). «Genetic Dissection of Complex Traits: Guidelines for Interpreting and Reporting Linkage Results». Nature Genet., núm. 11, pàg. 241-47. LIPP, H. P.; D. WAHLSTEN (1992). «Absence of the Corpus
LA COMPRENSIÓ DE LA CONDUCTA: APORTACIONS DE LA GENÈTICA MOLECULAR 211 Callosum». A: DRISCOLL, P. (ed.): Genetically Defined Animal Models of Neurobehavioral Dysfunctions. Boston: Birkhäuser, pàg. 217-225. TOMAS, J. H. (1994). «The Mind of a Worm». Science, núm. 264, pàg. 1698-1699. TULLY, T. (1998). «Toward a Molecular Biology of Memory: the Light s Coming on!». Nature Neuroscience, núm. 7, pàg. 595-601. RANKIN, C. H.; C. D. O. BECK (1992). «Caenorhabditis elegans: a Simple Systems Approach to the Genetics of Behavior». A: GOLDOWITZ, D.; D. WAHLSTEN; R. E. WIMER (ed.): Techniques for the Genetic Analysis of
Brain and Behavior: Focus on the Mouse. Amsterdam: Elsevier, pàg. 445-463. STEIMER, TH.; S. LA FLEUR; P. E. SCHULZ (1997). «Neuroendocrine Correlates of Emotional Reactivity and Coping in Male Rats from the Roman High (RHA/Verh) and Low (RLA/Verh)-avoidance Lines». Behav. Genet., núm. 27, pàg. 503-512. WEHNER, J. M.; R. A. RADCLIFFE; S. T. ROSMANN; S. C. CHRISTENSEN; D. L. RASMUSSEN; D. W. FULKER; M. WILES (1997). «Quantitative Trait Locus Analysis of Contextual Fear Conditioning in Mice». Nature Genetics, núm. 17, pàg. 331-334.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 213-223
LA BIOLOGIA DEL DESENVOLUPAMENT JORDI GARCIA-FERNÀNDEZ Departament de Genètica. Universitat de Barcelona Adreça per a la correspondència: J. Garcia-Fernàndez. Departament de Genètica. Facultat de Biologia. Universitat de Barcelona. Diagonal 645. 08028 Barcelona. Telèfon: 34-93-402 15 02. Fax: 34-93-411 09 69. Adreça electrònica: jgarcia@bio.ub.es
UNA REFLEXIÓ PERSONAL El principal objectiu de la biologia del desenvolupament és entendre com, a partir d una única cèl·lula ou, indiferenciada, es forma el patró d estructures tridimensionals d un organisme adult. Aquesta planera definició amaga una història curta, però intensa, d una branca de la biologia que fins no fa massa anys era més coneguda amb el títol d embriologia. Quan als anys vuitanta era estudiant de llicenciatura a la Universitat de Barcelona, i em consta que per a molts estudiants encara és així, el nom Embriologia feia certa recança, i de fet no vaig cursar l assignatura optativa així anomenada aleshores. Per què? Segurament perquè l embriologia que havíem estudiat al BUP o a les primeres assignatures de la carrera era un llistat (interminable) de noms que ens sonaven estranys: blàstula, gàstrula, blastopor, mesoderma, celoma, telolecític, i molts d altres, que ens eren definits i explicats sobre dibuixos (sovint amb colors) a la pissarra.
Molts dies acabaves la classe amb un munt de fulls plens de dibuixos de presumptes embrions de granota en diferents estadis del desenvolupament. Cada dibuix estava envoltat d unes quantes d aquestes noves paraules estranyes, d on sortien fletxes que amb més o menys fortuna apuntaven estructures, línies, o fins i tot espais buits. Una setmana abans de l examen corresponent intentaves trobar algú que hagués pres aquells mateixos apunts, però amb colors, i així esbrinaves que allò groc era l ectoderma, el taronja l endoderma, i el verd que apareixia en els darrers esquemes, el mesoderma. Desafortunadament, en fer les fotocòpies perdies la valuosa informació dels colors. També podies consultar llibres d embriologia (el de moda era un de petitet amb cobertes platejades) on, malauradament, es feia servir el blau per a l ectoderma, el vermell per a l endoderma, i el verd (aquest sí) per al mesoderma. Finalment acabaves per intentar fer una fotografia mental d uns quants dels esquemes, memoritzar el mà-
214 J. GARCIA-FERNÀNDEZ
xim nombre possible de noms de capes, estructures, i cavitats, i desitjar que el tema de l examen no fos quelcom com «gastrulació» o, pitjor encara, «celoma». Una vegada superat el primer cicle de biologia, i absolutament decidit a no cursar l assignatura optativa d embriologia, vaig matricular-me de la resta d assignatures impartides pel departament de genètica, ja que sempre havia cregut que aquesta era la branca de la biologia que més m atreia. Així n hi havia una que es deia Epigenètica, i que no estava gaire clar de què anava. Ara s anomena Genètica i Biologia Molecular del Desenvolupament, nom més clar però molt llarg, i que sovint s escurça a Epi. L Epi va ser una assignatura diferent. Es tractava (també!), d embriologia, però hi havia diferències substancials, que la feien encara més difícil: 1) se ns insistia que els embrions tenien tres dimensions 2) un estadi venia, en el temps, darrera de l altre, 3) els moviments dins l embrió eren molt importants. És a dir, el desenvolupament embrionari s havia de veure com un procés en quatre dimensions. Si la tercera dimensió era difícil d imaginar, la quarta, el temps, o com d un estadi es passava dinàmicament a un altre, va ser (i és), el més complicat d entendre. I finalment, per primera vegada, se ns va dir que hi havia gens que controlaven el desenvolupament embrionari, els anomenats gens del desenvolupament, que activant-se en diferents llocs de l embrió i en diferents temps del desenvolupament, controlaven el desenvolupament i la formació de l organisme. Interessat, però no encara convençut que quelcom relacionat amb embriologia fes per a mi, vaig començar a fer la tesi doctoral al grup d Epi, no per què m interessés especialment el desenvolupament, sinó perquè aleshores era un dels pocs grups a Catalunya que començaven a emprar les modernes tècniques de genètica molecular. Com que el que de fet volia era clonar gens, seqüenciar, i utilit-
zar tota aquesta colla de tècniques aleshores tan capdaventeres, m hi vaig ficar. A més, el treball tenia cert caire evolutiu que trobava molt interessant, ja que intentava esbrinar si animals primitius tenien també aquests famosos gens del desenvolupament, el que podia implicar que el mateix tipus de gens era responsable de fer animals molt diferents, i evolutivament molt distants. EMBRIOLOGIA I DESENVOLUPAMENT Crec que aquesta petita experiència personal reflecteix en certa mesura el passat i apunta el present i el futur de la biologia del desenvolupament. El segle XIX i el principi del segle XX van ser dominats per l embriologia descriptiva. D aquesta època daten la majoria de treballs exhaustius de descripció morfològica del desenvolupament embrionari de molts organismes. No és infreqüent veure en articles científics, sobretot de models animals no majoritàriament emprats, referències a articles de principis de segle. Aquells metòdics treballs d histologia i microscòpia no han estat repetits encara, emprant tècniques més avançades, i els laboratoris que treballen amb animals que no són de llibre fan servir com a referència els esquemes dibuixats en aquests articles, sovint escrits en alemany. Dels estudis d embriologia descriptiva prové la classificació en etapes del desenvolupament de la majoria d animals: 1) Segmentació. La cèl·lula ou o zigot es divideix ràpidament donant lloc a un nombre determinat de cèl·lules anomenades blastòmers. Normalment al final de la segmentació l embrió té forma d esfera buida, anomenada blàstula. 2) Gastrulació. Els blastòmers experimenten complexos i variats moviments dins l embrió, sovint les cèl·lules més externes es
LA BIOLOGIA DEL DESENVOLUPAMENT 215
mouen cap a dins de l embrió, i en general el final de la gastrulació marca dos fets importants: l aparició dels tres fulls embrionaris típics (ectoderma, endoderma i mesoderma), i l establiment dels eixos corporals (antero-posterior, dorso-ventral i lateral). Si bé avui en dia sabem que no és del tot cert, en general cadascun dels fulls embrionaris produirà tota una colla d estructures finals en l embriò; entre d altres l ectoderma donarà lloc a la pell i el sistema nerviós, l endoderma al tub digestiu, i el mesoderm als teixits ossis, els músculs, el cor o el ronyó. 3) Organogènesi. Les cèl·lules de les diferentes capes embrionàries interaccionen entre elles i es diferencien per formar els diferents òrgans de l organisme adult. Poc desprès de la descripció morfológica del desenvolupament varen venir els que avui en dia són els estudis clàssics d embriologia experimental. Ja no es tractava d observar com es desenvolupa l embrió, sinó de manipular-lo experimentalment. Molts dels treballs es basaven en ablacions de parts de l embrió, o de trasplantaments de petites parts. Un dels més famosos el feren Hans Spemann i Hilde Mangold, quan el 1924 trasplantaren el llavi dorsal del blastopor (la invaginació que s inicia en la part dorsal de l embrió a l inici de la gastrulació) d un embrió d axolot a un altre, en una posició ventral. L embrió receptor desenvolupava, en el lloc on havia rebut l empelt, un segon embrió, al menys parcialment. Així definiren que el llavi dorsal del blastopor era un organitzador de l embrió, i que podia dirigir la formació d un nou eix corporal mitjançant un fenomen d inducció. Al meu parer hi ha dues conclusions bàsiques de l embriologia experimental, que han resistit fins i tot l atac de la biologia molecular: 1) el desenvolupament és eminentment un fenomen cel·lular i 2) el desenvolupament embrionari és eminentment progressiu.
La divisió, migració, mort i diferenciació cel·lulars són crítiques en el desenvolupament, junt amb la formació del patró, terme que es refereix a l ordenació espacial correcta de les cèl·lules, per exemple que els dits es desenvolupin a l extrem de la mà, o els ulls al cap. Entendre el desenvolupament d un organisme no és més (ni menys) que entendre perquè una cèl·lula es divideix en un moment concret del desenvolupament, migra cap a un lloc determinat, canvia de forma, interacciona amb les cèl·lules del voltant, es diferencia o mor. Les decisions durant el desenvolupament són eminentment graduals. En general en un embrió es prenen primer grans decisions: què donarà lloc a la part anterior, què a la posterior, o quina a l ectoderma i quina a l endoderma. El patró corporal de la majoria d animals és bàsicament bilateral, i així s han de definir ben aviat els tres gran eixos corporals: anterior-posterior (què serà cap i què cua), dorso-ventral (esquena i panxa), i esquerra-dreta. L eix pròximo-distal dels apèndixs i extremitats es definirà més tard en el desenvolupament. Gradualment les cèl·lules de cada regió o territori aniran especificant el seu destí, cada vegada més finament, fins a diferenciar-se en un tipus cel·lular particular en un lloc determinat. Així el destí de cada cèl·lula es va refinant cada vegada més. Al mateix temps que va restringint el seu destí, sovint perd la capacitat de tirar enrera. El concepte de determinació cel·lular és difícil, però implica que una cèl·lula ja té el seu destí fixat, i que nomès podrà donar lloc al tipus cel·lular o al territori per al qual està destinada. Un grup de cèl·lules determinades a ser cèl·lules d ull, en ser trasplantades en un altre lloc de l embrió, no podran adquirir el mateix destí que les cèl·lules que envolten l empelt, i es diferenciaran, amb més o menys èxit, en cèl·lules d ull. Si l empelt s ha fet emprant cèl·lules destinades normalment a
216 J. GARCIA-FERNÀNDEZ
donar ull, però encara no determinades, les cèl·lules de l empelt canviaran el seu destí, i adquiriran el del territori on s han empeltat. El professor Antonio García-Bellido, el primer genètic del desenvolupament espanyol, va fer en una xerrada un símil telefònic del procés de determinació durant el desenvolupament que trobo il·lustratiu. Imaginem que la cèl·lula ou o zigot, totipotent, té el número de telèfon 34. Aquest és el prefix d Espanya, i implica que la cèl·lula ou té la potencialitat de formar tot l organisme (o trucar a qualsevol número). A mesura que es va dividint, les cèl·lules filles van restringint els números de telèfon o la potencialitat. Per exemple, una o poques cèl·lules tindran el número 34-93. Aquestes cèl·lules estan determinades a ser de la província de Barcelona, o, per exemple, a ser cèl·lules mesodèrmiques. D altres tindran el prefix 96, que les determina a ser de València, o, per exemple, a ser cèl·lules del cap. Les cèl·lules 34-93-765, descendents de les determinades a mesoderma, ja estaven determinades a ser del mesoderma, però ara del Maresme, o que formaran la musculatura esquelètica: així, gradualment, les cèl·lules embrionàries van determinant-se, perdent potencialitat, fins a quedar determinades al seu destí final: una cèl·lula diferenciada en un lloc determinat, o un número particular de telèfon de nou xifres. Les decisions de determinació rarament són individuals, normalment son en comitè: grups de cèl·lules que interaccionen entre elles i amb les veïnes. En altres paraules, les cèl·lules han de prendre decisions de desenvolupament en el context de les decisions preses per les seves veïnes. GENÈTICA I DESENVOLUPAMENT En els estudis clàssics d embriologia la genètica no hi tenia lloc. De fet, genètics i
embriòlegs varen tenir poc contacte a la primera meitat del segle XX. El pare de la genètica de Drosophila, Thomas Hunt Morgan, era embriòleg, però arribà a la conclusió que els gens (presents en el nucli cel·lular), poc tenien a veure en els estadis inicials del desenvolupament, on el citoplasma, especialment els anomenats determinants citoplasmàtics tenien un paper fonamental. El divorci va ser definitiu quan els genètics proclamaren que el desenvolupament no havia de ser més que el resultat de l acció dels gens, mentre els embriòlegs esgrimien que no podia haver-hi una explicació genètica del desenvolupament, quan totes les cèl·lules de l organisme tenen els mateixos gens (els mateixos cromosomes). No va ser fins al final dels anys quaranta, en descobrir-se que els gens codificaven proteïnes (que estaven en el citoplasma), que els embriòlegs i els genètics iniciaren tímids apropaments. Si les propietats fonamentals d una cèl·lula eren degudes a les proteïnes, i les proteïnes eren codificades pels gens, aleshores sí era possible imaginar que els gens tinguessin un cert paper en la regulació del desenvolupament embrionari, ja que indirectament podien controlar el comportament cel·lular, clau del desenvolupament. Avui en dia embriòlegs i genètics han refet les relacions, i són una bona parella. La clau és l expressió gènica diferencial. En el llibre Cap on va la biologia moderna de la Societat Catalana de Biologia del 1971, el desenvolupament es tracta en l article del professor Antoni Prevosti titulat La regulació del funcionament dels gens i la posterior discussió. El Dr. Prevosti ja apunta que a cada cèl·lula només una part dels gens estarien actius, i a diferents nivells. La discussió es centra en com pot tenir lloc aquesta activitat genètica diferencial, i es concreta en els mecanismes aleshores coneguts, bàsicament els operons procariotes, amb proteïnes repressores o activadores de la transcripció
LA BIOLOGIA DEL DESENVOLUPAMENT 217
dels gens de l operó. M ha sorprès constatar que fa menys de trenta anys es conegués poc, o res, dels mecanismes de regulació gènica en els eucariotes. No intentaré fer-ne un resum, però el concepte d expressió gènica diferencial (és a dir, els nivells de regulació gènica, dels quals la regulació a nivell transcripcional és només un d ells), és central per entendre la biologia del desenvolupament d avui. Molts alumnes de llicenciatura tenen greus problemes per assumir que no és el mateix tenir un gen en una cèl·lula, que tenir el gen o la funció gènica activats. En la concepció actual del desenvolupament embrionari, gran part de la feina està en esbrinar quins gens s activen en cada moment i en cada territori de l embrió, les relacions entre ells, i el detall molecular d aquestes relacions. Els conceptes clàssics sovint no han canviat. Una cèl·lula determinada a un destí particular és una cèl·lula on el gen X està expressat, i que iniciarà una xarxa de regulació gènica que donarà lloc a un destí particular; aquest destí final ho és perquè té tota una altra colla de gens actius, els gens de diferenciació terminal Y i Z, precisament activats, directa o indirectament, pel producte del gen X. Una cèl·lula depèn de les veïnes perquè aquestes es comuniquen amb ella mitjançant proteïnes de membrana, o secretades, que interaccionen amb els receptors de membrana corresponents. Una cèl·lula mor perquè rep un senyal apoptòtic, o perquè ha deixat de rebre senyals de la cèl·lula veïna (en forma de contacte cèl·lula-cèl·lula per un efector i un receptor, per exemple), explicació molecular de la romàntica teoria del mascle del colom, on el mascle es mor de pena quan la parella se n va o mor. Els determinants citoplasmàtics són proteïnes o RNA no traduïts distribuïts irregularment en el citoplasma. Els experiments de trasplantaments i induccions són reproduïts, injectant en el mateix lloc no el teixit donador,
sinò la proteïna codificada pel gen W, que per si sol té capacitat inductora. El punt d inflexió de la genètica del desenvolupament són al meu parer els experiments de Christianne Nüsslein-Volhard i Erich Wieschaus en el seu famós crivellatge de mutants materns i zigòtics a Drosophila (1980), i el descobriment del complex bithorax d Edward Lewis (1978), també a Drosophila. Tots tres van ser reconeguts amb el premi Nobel de Medicina el 1995. La producció i anàlisi sistemàtica de mutants d efecte matern (on els gens de la mare dipositen productes gènics, RNA o proteïnes en l ou) i zigòtics (on els gens responsables són els del zigot), que afectaven els estadis inicials del desenvolupament, va permetre identificar els principals gens responsables dels estadis primerencs, on es prenen decisions respecte dels eixos principals de l organisme. Ed Lewis, per la seva banda, va identificar per mètodes genètics un complex de gens, avui anomenat complex Hox, que s encarrega de la diversificació antero-posterior de l animal seguint un ordre anteroposterior, que curiosament reflecteix l ordre en el qual es troben els gens en el complex. Des d aleshores el nombre de gens del desenvolupament identificats no ha parat d augmentar. Quasi tots reben noms impronunciables que reflecteixen en anglès, alemany o japonès, l aspecte del fenotip mutant. Això sí, tambè n hi ha un parell amb noms catalans: pintallavis (divertidament pronunciat paintal·lafis pels anglosaxons) i patufet (l hi diran peitiufit?); un darrer gen català serà batejat properament amb el nom de capicua, fent competència semàntica al gen «francès» caracul. No és tasca d aquest escrit entrar en el detalls genètics del desenvolupament de Drosophila. Simplement esmentaré que en general hi ha tota una jerarquia de gens que activant-se en llocs determinats donen informació posicional dels eixos antero-poste-
218 J. GARCIA-FERNÀNDEZ
rior i dorso-ventral. Aquesta informació es va refinant cada vegada més. En l eix antero-posterior té un paper molt important el gen matern bicoid, que es distribueix (el seu mRNA) en un gradient antero-posterior en l oòcit (nanos es distribueix en un gradient oposat), mentre que en l eix dorso-ventral es disposa un gradient ventro-dorsal de la proteïna codificada pel gen dorsal. Una vegada la informació posicional inicial està establerta, la resta seran decisions de subdivisió i refinament. Per exemple, en l eix antero-posterior aquest refinament es fa seqüencialment pels gens anomenants gap (que divideixen l embrió en quatre parts), després els pair-rule (que el divideixen en catorze regions o segments), i els de polaritat segmental (en vint-i-vuit), mentre que la identitat de cada segment serà responsabilitat dels anomenats gens homeòtics. En general es respecta, ara en termes moleculars i d activació gènica, el principi de la progressivitat o gradualitat de les decisions, del més general al més particular. MODELS DEL DESENVOLUPAMENT Com en tota ciència, la majoria d investigadors treballen amb animals anomenats model. La majoria de vegades els models han estat triats per motius tècnics, bé sigui per la facilitat d obtenir embrions, perquè tenen un cicle de vida curt, perquè el cigot és gran, o per motius històrics o antropocèntrics. Presumptament, les respostes obtingudes en un sistema model poden permetre generalitzacions sobre com tenen lloc els processos de desenvolupament. En els vertebrats, els models més clàssics son el pollet i el gripau Xenopus laevis, ambdós triats per tenir embrions fàcilment accesibles a la manipulació experimental. Entre els invertebrats el model en majúscules és Drosophila. De fet, prop del cent per cent dels gens ma-
jors del desenvolupament s han identificat inicialment a Drosophila. El gran avantatge de Drosophila ha estat, i és, que es pot fer anàlisi genètica: des dels anys vint que s obtenen artificialment mosques mutants amb els més variats fenotips. Algunes d elles, sobretot després dels experiments de Wieschaus i Nüsslein-Volhard, són mutacions en gens que intervenen en el desenvolupament. Avui en dia, induint mutacions amb elements transpositius, qualsevol laboratori pot fer tot el procés: induir mutacions a l atzar, analitzar aquells mutants interessants, clonar el gen que està mutat i analitzar el seu patró d expresió durant el desenvolupament embrionari en un organisme normal. Aleshores, donada la gran informació ja disponible, pot mirar d encreuar el seu mutant amb altres soques amb fenotips relacionats, i així anar dissecant la xarxa gènica responsable d un determinat procés, sigui la formació del cap, l aparició d una pota o la separació entre dues venes d una ala. El nivell de detall molecular amb què es coneixen molts processos, amb multitud de gens implicats, activant-se, inhibint-se, cooperant o competint, és del tot sorprenent. És impossible fer una llista de totes les noves tècniques d anàlisi genètico-molecular disponibles a Drosophila actualment. De la visió més simple, en la qual un gen és responsable de la formació de l estructura o territori que manca en l individu mutant per aquell gen, s ha passat a tècniques que permeten, per exemple, activar un gen particular en un lloc particular durant un moment particular del desenvolupament, o al revés, inactivar un gen només en aquell lloc que volem i quan volem, i a més repetint l experiment sobre mosques que tenen tots uns altres gens, possiblement relacionats, mutats o no. Després de l explosió de la genètica molecular, als anys vuitanta, tota una nova colla d animals model han vist la llum. Tots
LA BIOLOGIA DEL DESENVOLUPAMENT 219
ells, de fet tots els éssers vius, poden ser objecte ara de l anàlisi genètico-molecular del desenvolupament. Dos fets han estat clau: el primer és la possibilitat d aïllar gens d un organisme semblants a un gen conegut en un altre, mitjançant la hibridació d àcids nucleics o, des de fa uns deu anys, mitjançant les tècniques de la PCR. El segon, biològicament més important, és que molts gens importants per al desenvolupament estan força conservats entre animals molt distants. Els nous models amb més empenta actualment són, entre els vertebrats, el ratolí i el peix zebra. El ratolí té un clar avantatge antropocèntric: és força semblant a l home, i per definició, millor model, fins i tot per a estudiar malalties humanes. A més a més, té un avantatge tècnic molt important: és possible fer-hi genètica. Fins fa poc era l únic vertebrat en el qual es podia anar al revés: en lloc d analitzar un fenotip mutant fins trobar el gen responsable, primer es troba el gen per tècniques moleculars, i després s obté el ratolí knock-out, amb el gen mutat, i se n observa el fenotip. El peix zebra és un petit peix típic d aquari, amb un cicle de vida molt curt i molt fàcilment (i econòmicament) cultivable. A més a més, té un embrió gran i transparent, fàcilment observable al microsocopi, i amb el qual la majoria de tècniques moleculars funcionen molt bé. També a causa d una iniciativa de Christianne Nüsslein-Volhard, l anàlisi genètica, mitjançant induccions de mutacions, està actualment en forta expansió. Entre els invertebrats, el nou model és el nematode Caenorhabditis elegans, del qual es coneix quasi tot: és molt petit i té al voltant de mil cèl·lules, de les quals es coneix perfectament el llinatge cel·lular (quina prové de quina en el desenvolupament). Recentment, el seu genoma ha estat completament seqüenciat, cosa que el fa el primer animal del qual es coneix tot (o quasi tot) el bagatge genètic, tots els seus gens.
En conclusió, avui en dia es coneixen detalls impensables fa pocs anys dels gens i les xarxes de regulació gènica que intervenen en moltes de les decisions del desenvolupament, des de les més generals, com l establiment dels eixos corporals, fins a procesos de morfogènesi molt particular, com la formació de l ull. Moltes d aquestes xarxes gèniques són molt complexes, i sovint poc lògiques (per la lògica humana). Per exemple, un gen n activa un altre que n inhibeix un altre que n inhibeix un altre. Sembla una pèrdua d energia i temps i seria molt més fàcil que el primer gen activés directament el darrer. Les xarxes, però, no han de ser lògiques, sinó que són com són per la història evolutiva que porten al darrere. La meva visió del desenvolupament és que moltes de les funcions clau són responsabilitat de xarxes gèniques, que m agrada anomenar kits genètics, que s han anat acoblant durant l evolució, i que s encarreguen d una funció particular. La funció pot ser l establiment d un eix, la formació d una estructura, la interacció entre dues capes de cèl·lules, una inducció local, un comportament cel·lular o moltes altres. El nombre d aquests kits és limitat, m atreviria a insinuar un nombre de tres xifres, i un mateix kit pot ser emprat en diferents llocs de l embrió, o en diferents temps, per fer estructures diferents. La màgia del desenvolupament és, segons el meu parer, com s han originat aquests kits, i com la coordinació de tots els kits fan un organisme complet. L EVO-DEVO (LA NOVA SÍNTESI?) L eminent Lewis Wolpert inicia el seu llibre de text Principles of Development amb la frase «El desenvolupament dels organismes multicel·lulars a partir d una única cèl·lula, l ou fertilitzat, és un brillant triomf de l evolució». El darrer capítol del llibre l inicia
220 J. GARCIA-FERNÀNDEZ
amb «Ha estat suggerit que res en biologia té sentit a no ser que es vegi des del punt de vista de l evolució». Vorejant el canvi de mil·leni ha aparegut una nova branca de la ciència batejada com a Evolució del Desenvolupament (la versió reduïda Evo-Devo té detractors i partidaris, entre els darrers dels quals em compto per simplicitat). Que està de moda no hi ha dubte, si més no pel nombre d articles i llibres que se n publiquen i pel nombre de congressos que s organitzen. L Evo-Devo intenta ser una nova síntesi de l evolució, des del punt de vista dels mecanismes del desenvolupament. L evolució dels organismes és el canvi en la forma, en el patró corporal, i aquest està controlat pels gens del desenvolupament. Els canvis en els gens del desenvolupament canvien la forma, i per tant, són la base de l evolució morfològica. L Evo-Devo intenta reunir en aquesta teoria sintètica la biologia del segle XIX, sense genètica però amb molta anatomia i embriologia comparades, i la del segle XX, amb un paper central de les teories evolutives i la genètica. L Evo-Devo intenta explicar l evolució i diversitat morfològica dels éssers vius com a conseqüència de canvis en els programes de desenvolupament embrionari. Un dels resultats més sorprenents de la introducció de les tècniques moleculars és que s han aïllat molt ràpidament gens homòlegs d aquells descoberts a Drosophila a pràcticament tots els altres animals en què s han buscat, des del nematode fins a l home. Des que es descobreix un nou gen a Drosophila fins que es publica l homòleg o homòlegs de ratolí passa ben poc temps. Viceversa, quan s aïlla un gen humà responsable d una malaltia, de seguida es busca a Drosophila, o es mira al banc de dades si C. elegans en té un de semblant. Molt sovint, a més, el gen té un paper important en el desenvolupament. La norma general és que els gens estan conservats entre els diferents fílums, i realitzen
funcions molt semblants durant el desenvolupament. Sovint es conserven xarxes gèniques (kits) completes que determinen processos de desenvolupament, una estructura morfològica, o una característica cel·lular. La gran conservació dels components genètics ha fet postular la universalitat dels mecanismes de desenvolupament, i grans esforços científics es centren en confirmar aquesta universalitat o en esbrinar si és veritat que els mateixos gens fan una mosca, un cuc o un home. La paradoxa és que la base de l evolució és precisament el canvi, pel que l Evo-Devo s està enfrontant al gran repte d intentar entendre els processos del canvi morfològic, de la innovació evolutiva, utilitzant uns elements, els gens del desenvolupament, que semblen estar molt conservats en estructura i funció, fins i tot en fílums molt distants. L Evo-Devo s enfronta a l excitant enigma d explicar les bases moleculars i genètiques del canvi, la diversitat i la innovació morfológica patents en el regne animal. Per exemple, un resultat espectacular de l Evo-Devo ha estat demostrar que els gens encarregats de l eix dorso-ventral en els artròpodes estan conservats en els vertebrats. Això no seria gaire impactant de no ser que, com succeeix, els gens siguin els mateixos, però actuïn en l ordre invers: el gen que a Drosophila fa ventral, fa dorsal a vertebrats, i al contrari. D aquí s ha extret que en la separació entre els artròpodes (protòstoms) i els vertebrats (deuteròstoms), l eix dorsiventral s ha invertit, o que el que per a la mosca és l esquena, per a nosaltres és la panxa. Amb l Evo-Devo han aparegut tota una nova sèrie d animals model, triats aquesta vegada no per motius tècnics, sinó per criteris biològics o evolutius. Alguns d aquests models són totalment nous, altres s han rescatat després de cent anys d oblit. Molts són animals considerats primitius, per simples, i exemples d estadis inicials o clau de l evolu-
LA BIOLOGIA DEL DESENVOLUPAMENT 221
ció d un fílum particular. El que l anatomia i embriologia comparades de fa cent anys varen proposar en termes d homologia, divergència o innovacions, és ara reavaluat amb eines moleculars per determinar la funció (o si més no l expressió) de gens del desenvolupament. Per exemple, l estudi dels gens responsables de la formació de les ales a Drosophila en tota una colla d artròpodes ha permès fer noves hipòtesis de com, en l evolució, s originaren les diferències en el patró corporal de les diferents classes d insectes. Un altre animal que s ha fet un lloc rellevant en l Evo-Devo és l amfiox, un cefalocordat, presumpte descendent viu del més immediat avantpassat dels vertebrats. El seu aspecte s ha definit com el d un trist filet d anxova, i està en els llibres de text d «invertebrats» en el darrer capítol, o en el primer dels de «vertebrats», o en cap dels dos. Té un patró corporal bàsic típic d un vertebrat, però molt més senzill. L anàlisi dels seus gens Hox feu postular la hipòtesi, de la qual sóc un xic culpable, que els vertebrats s originaren per duplicació gènica a gran escala, posterior divergència dels gens duplicats i adquisició (invenció) de tota una colla de noves funcions i estructures (com un cervell molt desenvolupat) que ens fan ser tan complexos en relació amb els nostres avantpassats. Aquesta teoria de la duplicació gènica ha donat en certa manera una empenta a l estudi de l anàlisi del genoma en els vertebrats, i al concepte de grups de paralogia (grans regions duplicades en el genoma) i la seva importància en l organització del genoma. Com hi ha poques coses simples en ciència, l Evo-Devo tampoc té, encara, una resposta simple per explicar com ha tingut lloc l evolució del regne animal, o el seu sinònim, com s han generat els diferents patrons de desenvolupament animal. Segurament no n hi ha cap de simple. Hi ha exemples de la importància del nombre de gens i l adqui-
sició de noves funcions (com l esmentat cas de l origen dels vertebrats); en altres casos grans canvis morfològics són deguts a subtils canvis en el patró d expressió d un o pocs gens del desenvolupament; en d altres el que canvia semblen ser els gens que responen a aquests gens majors, els seus gens diana, o l afinitat d una proteïna determinada pel seu cofactor. M atreviria a suggerir que altres innovacions o modificacions han tingut lloc per canvis no ja dins d un kit genètic particular, sinó de les relacions entre dos o més kits. L Evo-Devo crida de nou al concepte de la macroevolució, enfront dels canvis graduals en les freqüències gèniques responsables de la microevolució. Molts científics estan anant ben avall en l arbre evolutiu animal, per centrar-se en un punt, l anomenada explosió càmbrica, durant la qual s originaren sobtadament tots els fílums animals superiors, bàsicament els protòstoms (artròpodes, anèl·lids, nematodes, mol·luscs, platihelmints, etc.) i els deuteròstoms (equinoderms, cordats). Es discuteix fins i tot si hi va haver realment una explosió. L any 1998 vàrem proposar una nova hipòtesi, basant-nos en el descobriment d un complex gènic, bessó del complex Hox i que anomenem ParaHox, segons la qual la duplicació d un complex gènic hipotètic ancestral, el complex ProtoHox, pot haver estat clau per a l explosió càmbrica, i per a la gènesi de tots els patrons corporals, els fílums, superiors (figura 1). El segle XXI ens dirà si aquesta hipòtesi és o no correcta. I ARA? Al segle XXI l anàlisi geneticomolecular del desenvolupament intentarà anar més enllà. En pocs anys es coneixeran tots el gens humans. Els projectes genoma humà i Drosophila es completaran ben aviat. Fins i tot s han seqüenciat ja quinze mil gens dife-
222 J. GARCIA-FERNÀNDEZ
FIGURA 1. Hipòtesi sobre l origen i evolució dels complexos gènics Hox i ParaHox, involucrats en l eix antero-posterior animal. La duplicació d un presumpte complex ProtoHox podria haver coincidit amb l explosió càmbrica, on es generaren la majoria de fílums animals actuals. La duplicació del complex pot haver estat important i crític per a la invenció dels nous patrons corporals. Hipòtesi d Evo-Devo del 1998 que serà confirmada o refutada al segle XXI.
rents (un 90 % del total) que s expressen durant el desenvolupament de l amfiox. Segur que els patrons d expressió de tots o quasi tots els gens es coneixeran. Aleshores es completarà l anàlisi de la morfologia molecular del desenvolupament i s haurà d anar a entendre més en profunditat com es juguen les fitxes, els gens del desenvolupament. Per entendre el joc, fa falta l anàlisi genètica. Junt a Drosophila, aquesta anàlisi s anirà fent cada vegada més accessible en altres animals model, el peix zebra, el nematode, el ratolí, potser el pollastre, potser d altres. Sovint, les xarxes gèniques es faran més i més complexes, i cada vegada entendrem més subtileses moleculars. Els escriptors de revisions tindran molta feina per sintetizar i simplificar els coneixements. Un objectiu que veig molt important és el d omplir el forat entre la funció dels gens del desenvolupament i el comportament cel·lular. Més amunt he insistit que el desenvolupament embrionari és un fenomen eminentment cellular. Les cèl·lules es mouen, es comuniquen (parlen), es diferencien, s entristeixen i moren. Els gens del desenvolupament s enca-
rreguen precisament d això, i hem d entendre bé com ho fan. També començarem a entendre com es relacionen dos o més kits i la sinergia de les xarxes gèniques en el desenvolupament. Descobrirem, una mica frustrats, que tots els animals fan servir unes eines molt semblants. Potser haurem de pensar que els animals, encara que diferents, no som fonamentalment massa diferents, i que sovint questions genètiques quasi de detall, provoquen diferències que morfològicament trobem fonamentals: que la guia telefònica d un zigot amb prefix 33 de França és molt semblant a la del zigot amb el prefix 44 del Regne Unit. Per altra banda, la biologia del desenvolupament està i seguirà expandint-se a altres àrees (o es diluirà entre elles), i les interrelacions entre les diferents disciplines es faran cada vegada més paleses. L organització del genoma humà no pot perdre de vista l evolució del genoma, i l evolució del genoma està íntimament lligada als canvis en el desenvolupament; la genètica humana descobrirà, com ja ho està fent, que moltes malalties són produïdes per alteracions dels mecanismes del desenvolupament, ja sigui inicial o terminal (de formació del patró o de diferenciació), que els gens responsables de la malaltia estan força analitzats ja en models de desenvolupament, i que han de fer servir models experimentals que es puguin manipular, o en els quals es pugui fer genètica, premisses bàsiques per als biòlegs del desenvolupament; els biòlegs cel·lulars estudien ja problemes de desenvolupament, i continuaran fent-ho; els biòlegs evolutius s aproparan a la síntesi d evolució i desenvolupament; els neurobiòlegs també estan estudiant el desenvolupament del sistema nerviós, que no es pot separar conceptualment ni mecanísticament del desenvolupament complet de l animal. Malauradament, el principal inconvenient de la biologia del desenvolupament a Catalunya
LA BIOLOGIA DEL DESENVOLUPAMENT 223
serà la dificultat de crear una massa crítica de biòlegs del desenvolupament, donat que molts hi arribaran indirectament, des d altres disciplines, i no els serà fàcil dir que, en el fons, són biòlegs del desenvolupament. Esperem que els estaments responsables de la potenciació de la recerca tinguin una visió àmplia i clara i que també entenguin el paper central de la biologia del desenvolupament en la biologia i la biomedicina. En tota aquesta reflexió no he dedicat un sol mot al desenvolupament de les plantes. En demano disculpes, i voldria destacar que molts mecanismes cel·lulars i moleculars del desenvolupament vegetal s estan descobrint dia rere dia. Amb cert retard respecte dels animals, tècniques molt semblants s hi estan fent servir, tant genètiques com moleculars i cel·lulars, i força gens clau han estat aïllats i analitzats. De segur que molts mecanismes fonamentals del desenvolupament són comuns a animals i plantes, i en els propers anys el pes d aquesta secció en la biologia del desenvolupament anirà creixent. No voldria acabar aquest escrit sense intentar donar una dada objetiva, que anés més enllà de la visió personal, de segur esbiaixada, de la importància relativa de l aspecte de la biologia en què un treballa. La revista Nature és per a molts considerada la publicació científica més important del món: setmanalment inclou uns vint o trenta
articles de totes les branques científiques, des de l astronomia fins a la química o la biologia. L any 1998 es varen publicar en aquesta revista prop de cent articles de biologia i genètica del desenvolupament. Aquesta dada reflecteix, al meu parer, que la biologia del desenvolupament és una de les branques de la biologia amb més empenta avui en dia, i amb un futur més prometedor: fins i tot fa que estudiants que s esgarrifaven sentint la paraula celoma acabin apassionats per la màgia que té una cèl·lula ou en desenvolupar-se. BIBLIOGRAFIA GILBERT, S. F. (1997). Developmental Biology. 5a edició. Sunderland, Massachusetts: Sinauer Assoc. Inc. Existeix una traducció al castellà de la 1a edició anglesa de 1985: Barcelona: Omega, 1988. També hi ha la traducció al castellà de la 5a edició de 1997, Omega, 2000. GILBERT, S. F.; A. M. RAUNIO (1997). Embryology, constructing the organism. Sunderland, Massachusetts: Sinauer Assoc. Inc. GERHART, J. C.; M. W. KIRSCHNER (1997). Cells, Embryos and Evolution. Oxford: Blackwell Science. Traducció al castellà, Barcelona: Omega, 1999. GRIFFITHS A. J. F.; W. M. GELBART; W. M. MILLER; R. C. LEWONTIN, Modern Genetic Analysis. Nova York: W. H. Freeman & Co., cap. 16. KLUG, W. S.; M. R. CUMMINGS. Conceptos de Genètica, 5a ed, Madrid: Prentice Hall Iberia S.R.L., cap. 20. WOLPERT, L.; R. BEDDINGTON; J. BROCKES; T. JESSELL; P. LAWRENCE; E. MEYEROWITZ (1998). Principles of Development. Nova York: Oxford University Press.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 225-233
LA COMPRENSIÓ DELS MECANISMES DE L EVOLUCIÓ DAVID DE LORENZO Human Genetics Center. University of Texas. Houston, USA. Adreça per a la correspondència: Human Genetics Center. University of Texas. P. O. Box 20334. Houston, TX 77225-0334. Telèfon: 1-713-500 9827. Adreça electrònica: david@delorenzo.com
INTRODUCCIÓ L evolució com a coneixement és un dels camps de la ciència que desperta més interès, la qual cosa no implica que sigui el més entès i conegut. Ans al contrari; el lector probablement haurà sentit expressions com que l evolució és simplement l adquisició de millors característiques físiques, que els micos que veiem actualment són els nostres antecessors, o que no existeix cap organisme més evolucionat que l ésser humà. Tanmateix, sabem que moltes espècies es van extingir, el que implica que l evolució és quelcom més complex que millorar al llarg del temps. També sabem que els micos actuals han sofert un procés d evolució i per tant la nostra relació amb ells és més aviat de cosins llunyans més que d ascendents-descendents. Curiosament, però, sembla que l home presenta una de les menors taxes de canvi (nombre de canvis per unitat de temps), amb la qual cosa es dedueix que l home és menys evolucionat que altres dels
seus congèneres primats. Finalment, tot i que és cert que la nostra capacitat mental és clarament superior a la d altres éssers vius, existeix també un elevat grau de complexitat en el mecanisme en què les plantes transformen la llum i el diòxid de carboni en matèria viva, que no és menys sofisticat que aquells que observem en la nostra espècie. Sabem del cert que l evolució s ha produït i, com es veurà més endavant, tenim una idea clara dels seus mecanismes essencials. Aquest capítol no pretén ser un compendi sobre l evolució. Senzillament pretén aclarir tot un seguit de conceptes mitificats tot aplicant-los a situacions del present i del futur cap a on s adreça l estudi de l evolució en els nostres dies. LA PASSIÓ PER APRENDRE O L ART D ENSENYAR? L home esta dotat de la capacitat de transmetre coneixements d un individu a
226 D. DE LORENZO
l altre, d una generació a la següent, a través del llenguatge. Però hi ha quelcom més que diferencia l home de la resta d animals: l ànsia per transmetre aquests coneixements, el saber i en definitiva, el poder comunicar un conjunt d idees prèviament adquirides, ja sigui a través de l aprenentatge o fruit del pensament i la reflexió. En l àmbit de la ciència com a coneixement, és paradigmàtic el difícil que de vegades resulta la via de comunicació entre els científics i la societat. Molt sovint és conseqüència de la complexitat que s ha donat al llenguatge científic i altres vegades, potser com a resultat de l anterior, per la manca d interès que genera. Tanmateix, el tema de l evolució presenta un tret que el caracteritza: la facilitat de comprensió conceptual i el consegüent interès. En altres paraules, l interès pels nostres propis orígens ens atrau potser com a resultat de l antropocentrisme que en certa manera forma part del pensament, però especialment perquè es pot discutir sobre evolució ja en l àmbit popular, sense haver de recórrer a coneixements profunds en la matèria. De fet, evolució és un dels temes de què es parla més en revistes de divulgació científica. I malgrat la quantitat d articles que ha generat, és sorprenent veure el desconeixement que se n té i, més, dels mecanismes de l evolució. La paraula evolució s utilitza exhaustivament, fins i tot en l àmbit no científic, en referència a un sentit de millora o desenvolupament. Etimològicament, l ús és correcte, però podem estar cometent un error quan, per exemple, parlem de la teoria de l evolució de Darwin i Wallace de mitjan segle XIX. PERÒ... ÉS REALMENT IMPORTANT SABER SOBRE EVOLUCIÓ? Precisament, l interès generalitzat a què m he referit prèviament és quelcom real-
ment extraordinari. Preguntes tan senzilles com per què les aus volen o què ens ha permès poder percebre colors es podrien respondre simplement en termes d aerodinàmica o lleis fotoquímiques. Tanmateix, a més d aquestes preguntes immediates n existeixen d altres que apunten més a la causa última de les coses, com per què les aus han adquirit la capacitat de volar o quin avantatge ens aporta el poder distingir els colors. I la causa última de les coses, en el món biològic, és essencialment l evolució o pressió evolutiva. De fet, l evolució pot considerar-se com una part de la filosofia (o com J. B. Lamark va denominar-la, Philosophie Zoologique): s empren la raó i l argumentació per a la recerca de la veritat i el coneixement de la realitat, especialment de les causes i naturalesa de les coses. QUÈ ÉS EXACTAMENT L EVOLUCIÓ? Com he esmentat anteriorment, el concepte evolució, és dual. Pot referir-se a un procés gradual, com el progrés d una forma senzilla cap a una de complicada i també pot referir-se al procés que permet explicar l origen de les espècies com a un desenvolupament a partir de formes prèvies. Etimològicament la paraula prové del mot llatí evolutio, que traduït és desenvolupament, desenrotllament. Amb aquest sentit va ser emprada per primer cop per referir-se al que avui coneixem com a teoria de la preformació proposada per Bonnet l any 1762, la qual postulava que l embrió, en comptes de formar-se com a resultat de la fecundacio, és resultat d una forma preexistent que conté rudiments de totes les parts del futur organisme. I amb aquest mateix sentit, evolució s empra freqüentment com a desenvolupament d una forma senzilla a una de més complexa. Tanmateix, el concepte de teoria de l e-
LA COMPRENSIÓ DELS MECANISMES DE L'EVOLUCIÓ 227
volució, a través de la qual s explica el canvi en les característiques hereditàries de les espècies a través de les generacions, no té cap connotació de millora. L evolució produeix espècies més adaptades a l entorn en el qual es desenvolupen però resulta erroni pensar que genera espècies millors. Ben cert és que de vegades, el sentit evolutiu d una espècie produeix una millora substancial en l espècie, bé sigui en el mètode d obtenció d energia, en la capacitat d escapada de depredadors o en la protecció de la descendència. Una millora és específica per a un determinat entorn. Si l entorn llavors canvia la millora pot esdevenir fins i tot un desavantatge. Un canvi que podia tenir un determinat propòsit (o cap en absolut), pot al cap del temps ser utilitzat per a un altre propòsit avantatjós per a l espècie. Però no sempre condueix a una millora. L estudi i desenvolupament de la teoria de l evolució ha permès contestar dues preguntes que han intrigat els científics al llarg de cents d anys. 1. Per què existeix tanta variació en el regne animal? No cal observar molt detalladament per descobrir un elevat nombre d espècies diferents d animals i plantes. I com més s investiga i s explora més augmenta la nostra estimació del nombre d espècies a la Terra. 2. Per què hi ha tantes similituds entre espècies diferents? Malgrat la diversitat, hi ha un seguit de característiques comunes entre els diferents organismes. Com a exemple, la columna vertebral és una estructura compartida per un elevat nombre d espècies, no només actuals sinó ja extingides. I a escala molecular, les similituds entre diferents espècies són encara més sorprenents. Des dels procariotes fins als mamífers, tots els éssers vius utilitzen els mateixos mecanismes per a dur a terme processos bàsics de la vida. El concepte d evolució biològica permet
respondre a aquestes preguntes. Dóna resposta a les semblances entre organismes argumentant que totes les diferents espècies de plantes, animals i microorganismes que viuen a la terra actualment provenen d ancestres comuns. I dóna resposta a les diferències mitjançant el procés d evolució per selecció natural: tal com Darwin va observar, els éssers vius a la natura produeixen més descendència de la que pot sobreviure i reproduir-se donades les limitacions de recursos, espai, etc. La descendència normalment difereix entre si per diferents trets físics, en darrer terme producte de mutacions en el sentit que són canvis aleatoris i heretables segons les lleis de la genètica mendeliana. Si alguns individus tenen caràcters que són avantatjosos en la lluita per la supervivència i la reproducció, llavors sobreviuran i transmetran aquests trets a la descendència. Aquest procés repetit al llarg del temps, va dur als primers organismes sobre la Terra a diversificar-se en les plantes, animals i microorganismes existents actualment, que malgrat ser diferents, comparteixen molts dels trets ancestrals. Altrament, l aprofitament exhaustiu de nous recursos i nínxols ecològics ha contribuït a augmentar la diversificació que coneixem en els nostres dies. DARWIN I MENDEL: UN PUNT D INFLEXIÓ El món que ens envolta canvia constantment, no només a escala macroscòpica (noves muntanyes, noves valls, nous deserts) sinó a escala microscòpica i molecular (alteracions en la concentració de gasos a l atmosfera, minerals al sòl...). Alguns d aquests canvis són resultat de milers d anys, mentre que d altres són gairebé instantanis. L acció de l´home modifica en gran mesura
228 D. DE LORENZO
la velocitat en què aquests canvis es produeixen. Amb més o menys rapidesa, són fruit d una dinàmica no només en l àmbit geològic sinó també biològic. Però l home no en va ser conscient fins al segle XIX, quan la concepció estàtica que es tenia de la Terra es va transformar radicalment i va passar a ser una concepció dinàmica, d un planeta en constant canvi. En l àmbit biològic, com que en general la velocitat de canvi és major que en l àmbit geològic, ja existia una certa consciència de canvi en els éssers vius en l època dels grecs. Tanmateix, amb l arribada del cristianisme, el món occidental va acceptar la idea de la creació o gènesi del món en sis dies per part de Deu. No va ser fins al segle XIX, que molts naturalistes van començar a especular sobre la possibilitat que en els organismes s hagin produït canvis al llarg de la història de la Terra, especialment quan es varen començar a descobrir formes fossilitzades d espècies ja extingides. Però un altre cop, aquesta idea no va gaudir de gaire acceptació, en part a causa que no es proposava cap mecanisme fiable per produir aquests canvis. L any 1858, dos naturalistes anglesos, C. R. Darwin (1809-1882) i A. R. Wallace (18231913) van proposar el mecanisme de la selecció natural com a explicació per a l origen de les diferents espècies. Ambdós eren conscients que tot i que la majoria de les espècies tenen una descendència nombrosa, la mida de llurs poblacions roman relativament constant. Només uns quants descendendents arriben a l etapa d adultesa, la qual els permet reproduir-se i tenir una descendència, alhora que es genera una certa competència entre els nous individus. Com que cadascun dels membres de l espècie varia lleugerament respecte dels altres, aquells que desenvolupin uns trets avantatjosos en l ambient que els envolta, tindran una probabilitat més elevada de supervivència.
Darwin va presentar aquesta teoria en detall al llibre On the Origin of Species by Natural Selection l any 1859, en el qual no només ordenava les proves a favor de l evolució sinó que descrivia un mecanisme convincent, el de selecció natural en contraposició al terme selecció artificial, que seria conduït per l home. Amb el procés de selecció natural explicaria l evolució biològica, que ell anomenava descendència amb modificació, i l aparició de noves espècies. Però Darwin no explicava el mecanisme per què es genera la variació sobre la qual la selecció natural actua, ni com aquesta variació es transmet a la descendència. Cal especular però, que si els treballs de G. Mendel sobre els mecanismes de l herència publicats el 1866 haguessin tingut impacte i acceptació, Darwin hagués pogut raonar sobre la generació de la variació. En aquella època, es va pensar que els exemples d herència de Mendel eren meres excepcions i els seus treballs van ser ignorats fins a inicis del segle XX, quan es va reconèixer el seu significat, fet que va donar inici a la genètica moderna. El desconeixement de les lleis de l herència va fer que Darwin admetés en cert grau l herència de caràcters adquirits com a part de la causa de l evolució biològica, error força estès en el coneixement de la teoria de l evolució fins i tot avui en dia. En general, es pensa que els organismes canvien llurs característiques en resposta al medi ambient, com si l ambient actués sobre els individus generant en ells uns trets físics que poden ser transmesos genèticament a la descendència. Tanmateix, la selecció natural només pot actuar sobre la variació genètica que ja és present en cada generació, variació que s esdevé aleatòriament per mutació i no pas com a resposta a unes necessitats. L evolució no dissenya nous organismes, sinó que són els nous organismes els que emergeixen de la variació genètica inherent a les poblacions.
LA COMPRENSIÓ DELS MECANISMES DE L'EVOLUCIÓ 229
FIGURA. 1. La teoria proposada per Darwin suggeria que l evolució s havia esdevingut com un arbre amb branques (a), en contrast amb la idea tradicional que l evolució segueix una línia ascendent i unidimensional, on el darrer punt seria l home. De fet, el quadern de notes de Darwin presenta un esquema del que podria considerar-se el primer arbre filogenètic de la història.
La variació genètica és aleatòria, però la selecció natural no. La selecció natural experimenta en cada individu i deixa proliferar aquells que tenen una habilitat més gran per sobreviure i reproduir-se de manera que les poblacions d éssers vius estan en constant adaptació al medi on es troben. La gran diversitat de nínxols ecològics al nostre planeta permet explicar, a través de la selecció natural, la gran variació que existeix entre els éssers vius. La necessitat d estar adaptats a un medi en constant canvi per sobreviure fa que existeixi tanta diversitat en els éssers vius. EVOLUCIÓ CONTÍNUA O DISCONTÍNUA Un dels aspectes criticats de la teoria de l evolució ha estat el problema dels punts intermedis. És a dir, si la selecció natural és la força motriu de l evolució, quin avantatge aporten als individus els estadis intermedis dels òrgans, per exemple? En el cas de la visió és fàcil entendre el fet que hagin existit diversos estadis de l òrgan visual, des de cèl·lules fotosintètiques fins al complex ull
dels mamífers o dels cefalòpodes. I en cada moment, una petita millora en la capacitat visual era beneficiosa per a l individu en el qual apareixia. Tanmateix, hi ha altres casos on no és tan evident el procés d evolució mitjantçant petits canvis acumulatius. Per exemple, les plomes de les aus: de què serveixen als ancestres de les aus les plomes primordials, altrament insuficients per al vol? Per tant, les plomes devien aparèixer en un estadi força avançat, suficient com per permetre un vol rudimentari, la qual cosa és improbable que s esdevingués a l atzar. L explicació de l evolució de les plomes a través de la selecció natural no necessita un canvi tan dràstic. S ha proposat que les plomes, en un primer moment, tenien una funció d aïllant tèrmic. Posteriorment, en augmentar de mida, les plomes primordials van començar a permetre petits vols, i posteriorment es van especialitzar en la funció del vol fins a obtenir la morfologia de la ploma actual. Contràriament a l explicació de l evolució contínua dels caràcters s argumentava el fet que si era de tal manera, el registre fòssil hauria de mostrar una sèrie contínua d espècies amb petites diferències en llurs característiques. L explicació clàssica a l absència d aquests exemplars era que el registre fòssil és incomplet i, per tant, existeixen graons perduts en la cadena de l evolució de les espècies. Actualment, sí que es considera la possibilitat que aquests salts detectats en el registre fòssil siguin reals: el 1972, N. Eldredge i S. J. Gould van proposar que potser l esmentat registre no estava incomplet i que les discontinuïtats del registre no eren artefactes, sinó que eren reals, és a dir, que s esperaria trobar discontinuïtats fins i tot si el registre fòssil fos complet. Segons ells, el procés d especiació no hauria de ser considerat un procés lent i a llarg termini, sinó més aviat un esdeveniment puntual (en l es-
230 D. DE LORENZO
cala geològica del temps). D alguna manera separaven dos processos: 1. El d evolució intraespecífica (és a dir, el procés pel qual es produeixen canvis entre individus d una mateixa espècie). 2. El d especiació (procés pel qual apareixen espècies diferents), producte de macromutacions (mutacions que produeixen canvis dràstics en l individu). Aquesta idea està sostinguda per l estudi de mutacions de gens del desenvolupament, que impliquen grans canvis en la morfologia de l individu.
FIGURA. 2. Segons Eldredge i Gould, la major part dels canvis entre espècies es genera en el moment de l especiació (a), a diferència de la visió clàssica (b), en què les diferències anaven augmentant segons passava el temps.
A diferència de la visió gradualista clàssica (fig. 2, a), en què les noves espècies es generaven per transformació lenta del conjunt complet de la població ancestral en llurs espècies descendents, Eldredge i Gould, en el seu model de l equilibri puntuat (punctuated equilibrium) postulaven que les noves espècies es generaven per la separació ràpida de petites subpoblacions des de la població ancestral. La diferència entre un model i l altre rau principalment en la taxa de canvi o evolució durant i entre successos d especiació. Sembla que en la natura es dóna un ampli rang de taxes de canvi, amb la qual cosa es podria dir que ambdós models són extrems d una àmplia gamma de possibilitats en la generació de noves espècies.
Per tant, sembla clar que en l evolució, la força motriu que dirigeix els processos de canvi en la morfologia i trets dels éssers vius és el medi ambient. Que queda per conèixer? En el següent apartat es comentaran controvèrsies que podrien ser antigues per a una teoria que té més de cent anys d existència, però que encara hi són presents i que van fer que H. J. Muller sentenciés el dia del centenari de la publicació de The Origin of Species que «cent anys sense Darwin són més que suficients». I malgrat tot, no hi ha res del tot clar. L era de la biologia molecular i les dades de variació de les espècies a nivell molecular van plantejar tota una sèrie de qüestions, ja que en gran mesura, els canvis a escala de seqüència de DNA són aparentment invisibles en la selecció natural. LA TEORIA DE L EVOLUCIÓ ACTUAL La teoria de l evolució explica el procés pel qual les formes de vida de la Terra han canviat. El terme teoria però, no es refereix a quelcom que s intueix o sospita, tal com es podria entendre en llenguatge de carrer, sinó a explicacions que es donen als fenòmens naturals i que es construeixen a partir de l observació i d hipòtesis comprovables empíricament. La teoria de l evolució és la millor explicació disponible per a la gran quantitat d observacions realitzades sobre la vida a la Terra. L abundància de proves és tan gran que ja ningú dubta de la seva veracitat. No és només pel que fa a petits canvis en els individus, sinó també pel que fa a l aparició de noves espècies. Malauradament, als científics ens resulta sorprenent veure aparèixer notícies relacionades amb el nostre camp de coneixement. En el camp de l evolució, però, és relativament freqüent veure notícies sobre el descobriment de noves espècies (un dels exemples més recent és
LA COMPRENSIÓ DELS MECANISMES DE L'EVOLUCIÓ 231
el de l artròpode Culex pipiens, un mosquit del qual s ha format una nova espècie als túnels del metro de Londres en el lapse de temps d un segle; El País, 28 d agost de 1998). El perquè de l impacte d aquest tipus de notícia podria venir donat per la curiositat que això desperta i pel fet que el tema de la teoria de l evolució és en certa manera encara sota estudi, per la qual cosa, qualsevol prova en favor seu resulta interessant i transcendent, a més de l interès que susciten aquests exemples quan pensem en l espècie humana i perquè som com som. Tanmateix, hom no pot pensar que la teoria de l evolució necessiti ser contrastada en els nostres dies, és a dir, no existeix cap alternativa científica que pugui substituir la teoria de l evolució. L evolució s esdevé contínuament, malgrat que hi ha moltes preguntes sense resposta de les quals tractaré més endavant. Sovint, s intenta contraposar el creacionisme (explicació de l origen de les espècies segons les escriptures del Gènesi) amb la teoria de l evolució. Tanmateix, no es troben al mateix nivell. La Teoria de l evolució és una teoria científica (creada a partir d observacions i proves empíriques, que pot ser modificada segons els resultats de les observacions i proves), i el creacionisme és un dogma de fe (per tant, acceptat sense proves experimentals que ho demostrin). LA TEORIA DE L EVOLUCIÓ A ESCALA MOLECULAR Un cop es va començar a estudiar la variació de les poblacions naturals a escala molecular, inicialment a escala de proteïna i posteriorment d àcid nucleic (DNA), es van trobar inicialment diverses observacions que es contraposaven al que s esperava sota la teoria de l evolució:
1. El grau de variació observat en les poblacions va resultar més elevat de l esperat. En altres paraules, hi havia un nombre relativament elevat de variants a escala molecular (d acord amb la hipòtesi segons la qual la selecció natural elimina les variants no avantatjoses i selecciona les avantatjoses, caldria esperar que les poblacions presentessin un aspecte uniforme pel que fa a aquest nivell de variació). 2. Es va veure que, per a una mateixa proteïna, la taxa de canvi era significativament constant en diferents tàxons. Era difícil explicar com animals tan diferents com l home i el colibrí, adaptats a ambients tan diferents en termes de canvi en l ambient i, per tant, de selecció natural, presentaven la mateixa taxa de canvi a escala molecular.
FIGURA 3. Existeix una bona correlació entre el nombre de canvis observats en una proteïna entre dues espècies, i el temps transcorregut des que es va produir la seva separació. Per tant, si es té calibrat aquest rellotge per a una determinada proteïna, un cop sabut el nombre de diferències entre dues espècies, pot fer-se una estimació del temps que ha transcorregut des de la seva separació en dues espècies independents.
D aquest parell d observacions varen sorgir dues conclusions que definitivament han marcat l estudi a escala molecular de l evolució. 1. El rellotge molecular (The Molecular Clock, Zuckerkandl i Pauling, 1965). Si la taxa de canvi per a una determinada proteïna és constant en dues espècies diferents, es pot conèixer el temps que ha transcorregut
des de la separació en termes evolutius de les dues espècies tot observant el nombre de canvis esdevinguts comparativament entre la corresponent proteïna de cada una de les dues espècies (figura 3). 2. La teoria neutralista de l evolució molecular (M. Kimura, 1968). Kimura va mostrar que el grau de variació genètica observat a escala molecular en les poblacions era massa elevat per a poder ser mantingut per la selecció natural. Amb tantes variants, existiria en cada generació un nombre massa elevat d individus no òptims que serien eliminats per efecte de la selecció natural si aquesta era realment important. Per tant, per Kimura, no tots els canvis podien ser adaptatius, és a dir, fruit de canvis selectius en els individus d una espècie, sinó més aviat canvis selectivament neutres apareguts per mutació, la qual presenta una freqüència que oscil·la per efecte de l atzar. El polimorfisme observat en les poblacions no es podia mantenir per l efecte de la selecció natural, sinó més aviat seria producte de l efecte de l atzar (deriva genètica, figura 4), que manté un cert grau d heterozigositat a les poblacions. Tot i que els herozigots són formes de transició (els nous polimorfismes apareixen per mutació i augmenten o disminueixen en freqüència per efecte de la deriva genètica, fins assolir la pèrdua o bé la fixació), existeix un nivell d equilibri que depèn de la mida poblacional i de la taxa de mutació. Molta de la recerca que es fa actualment en l àmbit de l evolució a escala molecular es centra bàsicament en dos aspectes: 1. L estudi de la taxa de canvi a nivell molecular i el seu ús i aplicacions en la filogènia. 2. L estudi de la variació molecular i com s ajusta a les prediccions de la teoria neutra. En aquest segon aspecte, últimament s ha qüestionat si el paper de la deriva genè-
Freqüència al·lèlica
232 D. DE LORENZO
Temps
FIGURA 4. Efecte de l atzar o deriva genètica en la freqüència de variants no sotmeses a selecció natural (variants neutres). La freqüència d aquestes variants canvia en cada generació per processos purament estocàstics, de manera que pot arribar a la seva fixació en la població (variants en què la freqüència acaba a la línia superior) o a perdre s. En un determinat moment (com pot ser, per exemple, el punt a), existeixen una sèrie de variants en la població (dues en aquest cas) amb una determinada freqüència. La intensitat d aquest procés depèn principalment de la mida de la població. En poblacions petites és molt fort, per la qual cosa els processos de pèrdua o fixació són realment ràpids (de manera similar a la manera com passa en pobles petits o illes, on sol predominar un cognom).
tica (o atzar) és tan important a escala molecular com es va plantejar en un principi. És a dir, quina és la proporció de noves variants substrat de la selecció. L ESPECIACIÓ A ESCALA MOLECULAR Finalment, una altra de les grans preguntes de l evolució: quins són els mecanismes pels quals es generen noves espècies? Des de l establiment, per part de C. R. Darwin, de la teoria de l evolució de les espècies per selecció natural, han estat nombrosos els mecanismes observats d especiació, però de pocs d ells es comprèn l acció a escala molecular. És coneguda des de fa temps l esterilitat reproductiva dels híbrids entre diferents espècies, però incompresa a escala molecular, la qual cosa reflecteix la complexitat del procés en què participen gens del desenvolupament, del comportament i d altres lligats al procés reproductiu, i on, sovint, s estableixen interaccions epistàtiques
LA COMPRENSIÓ DELS MECANISMES DE L'EVOLUCIÓ 233
entre ells. És, per tant, un camp de recerca que queda obert i que genera un alt grau d interès dins l evolució molecular. CONSIDERACIONS FINALS Un dels objectius de la ciència és comprendre la natura. Comprendre, en ciència, significa relacionar un fenomen natural amb un altre i reconèixer-ne les causes i efectes. Tanmateix, els científics mai no poden estar segurs si una explicació concreta és definitiva. La teoria de l evolució de C. R. Darwin, com a teoria general, s ha mostrat sòlida durant cent anys. Un gran esforç d investigació ha convertit el que inicialment va ser una hipòtesi en una teoria consolidada. Posteriors descobriments, com les dades de variació a escala molecular, han permès incrementar els nostres coneixements dels processos de l evolució a aquesta escala. Amb la moderna teoria neutra de l evolució molecular, el que es qüestiona no és el procés de l evolució a escala molecular, sinó el paper predominant de la selecció natural en aquest procés. S ha vist, tanmateix, que la variació existent en una zona del DNA depèn en gran mesura de l ambient genètic en el qual es troba (és a dir, la seqüència gènica que l envolta) i en quin grau aquest ambient influeix en aquesta zona. Malgrat el fet que una regió de DNA sigui invisible a l acció de la selecció natural, si aquesta regió es
troba lligada genèticament (per trobar-se en una regió amb nivells reduïts de recombinació) a una altra regió sotmesa a una forta pressió selectiva, és evident que la regió suposadament neutra també ha d experimentar aquest efecte de la selecció natural. En resum, l estudi de l evolució roman com un camp actiu d investigació, amb un elevat nombre de nous descobriments que augmenten contínuament el nostre coneixement de la manera com s ha produït l evolució dels éssers vius en el nostre planeta. AGRAÏMENTS Voldria agrair al Dr. J. Bertranpetit l oportunitat d escriure aquest treball, com també als Drs. M. Aguadé, G. Barbujani, D. Graur, M. Gómez-Angelats i S. Ramos-Onsins els seus comentaris i ajut. BIBLIOGRAFIA DARWIN, C. R. (1859). On the Origin of Species. Londres: John Murray. GRAUR, D.; W.-H. LI (1999). Fundamentals of Molecular Evolution, 2a edition. Sunderland: Sinauer Associates. KIMURA, M. (1983). The Neutral Theory of Molecular Evolution. Cambridge: Cambridge University Press. RIDLEY, M. (1996). Evolution, 2a edició. Boston: Blackwell Scientific Publications. RIDLEY, M (ed.) (1997). Oxford Readers Series: Evolution. Oxford: Oxford University Press.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 235-247
LA DIVERSITAT GENÈTICA HUMANA: DE L ESPÈCIE A L INDIVIDU FRANCESC CALAFELL Unitat de Biologia Evolutiva. Facultat de Ciències de la Salut i de la Vida. Universitat Pompeu Fabra. Adreça per a la correspondència: Unitat de Biologia Evolutiva. Facultat de Ciències de la Salut i de la Vida. Universitat Pompeu Fabra. Doctor Aiguader, 80. 08003 Barcelona. Telèfon: 34-93 542 28 41. Fax: 34-93 542 28 02. Adreça electrònica: francesc.calafell@cexs.upf.es
INTRODUCCIÓ En aquest article, tractaré de l estat actual i de les perspectives de futur en l estudi de la diversitat genètica humana, destacant els mètodes que l han fet possible i aquells el desenvolupament dels quals obrirà noves portes en aquest camp. Farem una passejada per aquests temes tot començant des de l àmbit global, l espècie humana i la seva posició filogenètica, i descendirem tot seguit per tractar la diversitat en grups continentals, regionals i locals, fins arribar a l àmbit on es concentra una àmplia majoria de la diversitat humana: l individu. ELS HUMANS I LA NOSTRA POSICIÓ EN EL REGNE ANIMAL Així que hom disposà de les eines apropiades, la relació filogenètica dels humans dintre dels primats fou ràpidament resolta i l interès es va desplaçar, com veurem, a les
branques laterals. L espècie més propera als humans és el ximpanzé, però el resultat més sorprenent de les recerques que mesuraren el grau de diferència entre humans i ximpanzés fou l escassetat de la diferència: en mitjana, només un 1 % dels nucleòtids són diferents entre els genomes dels humans i dels ximpanzés. Tot i que, en termes absoluts, estem parlant d uns trenta milions de nucleòtids diferents, el fet que el 99 % de la dotació genètica de les dues espècies fos idèntica, portà a alguns a reconsiderar la taxonomia dels primats i a col·locar els ximpanzés en el mateix gènere que els humans: Homo troglodytes. En canvi, estudis sobre diversos gens produïren resultats contradictoris sobre la filogènia dels simis antropoides: en alguns casos, semblava que la branca que portava als goril·les se separava abans que la branca que portava als ximpanzés i humans, mentre que l estudi d altres gens suggeria que els humans s havien separat abans de la línia que porta a goril·les i ximpanzés. Una posició de com-
236 F. CALAFELL
promís proposava que, en realitat, la separació de goril·les, ximpanzés i humans s havia produït en un interval molt curt de temps i que la resolució d aquesta tricotomia quedava fora de l abast dels mètodes disponibles. Finalment, Ruvolo (1997) publicà una metaanàlisi dels conjunts de dades existents i arribà a la ferma conclusió que la línia que portava als goril·les s havia separat primer de la línia que portà a ximpanzés i humans. Les dates que hom accepta per a aquestes fissions són fa set milions d anys per als goril·les i fa cinc milions d anys per a la separació entre humans i ximpanzés; s arribà a aquest resultat a partir de la conjunció de les datacions de fòssils i de l aplicació del rellotge molecular a les dades de divergència genètica. Un cop assentada fermament la posició dels humans en l arbre filogenètic, queda per determinar amb major precisió l estructura genètica de les espècies, subespècies i poblacions dels simis antropoides: ximpanzés (Pan troglodytes), bonobos (Pan paniscus), goril·les (Gorilla gorilla) i orangutans (Pongo pygmaeus). Per exemple, cal aclarir el nivell de subdivisió entre goril·les de muntanya, goril·les de les planes orientals i goril·les de les planes occidentals. Malauradament, el principal obstacle per a aquests estudis no és el desenvolupament de les tècniques sinó disposar de les mostres adequades, ja que les poblacions d aquestes espècies estan minvant ràpidament, i, en alguns casos, potser ja no s hi és a temps. LA RECERCA DELS ORÍGENS Un dels debats científics més apassionants i apassionats dels darrers anys ha estat la controvèrsia sobre els orígens dels humans anatòmicament moderns. Paleoantropòlegs, arqueòlegs i genètics s han decantat (en proporcions variables, però) per
una de dues hipòtesis sobre l emergència d aquells humans l anatomia i el comportament dels quals eren ja indistingibles dels nostres. Aquestes hipòtesis s anomenen multiregionalista (o en canelobre) i de substitució (o out of Africa). La primera, defensada sobre tot per paleoantropòlegs, especialment per Milford Wolpoff, consisteix en suposar que, després de la sortida d Homo erectus d Àfrica fa 1,5-2 milions d anys, les poblacions d humans del Vell Món evolucionaren en paral·lel cap a les formes actuals, passant per formes intermèdies com els neandertals a Europa. Aquesta evolució paral·lela fou sincronitzada per la migració i per la difusió dels trets morfològics afavorits per la selecció natural. En la interpretació que els multiregionalistes fan del registre fòssil, s observen exclusivament en els europeus actuals trets presents en els neandertals, i només en els asiàtics actuals es trobarien trets ja presents en els Homo erectus asiàtics. Una conseqüència d aquesta hipòtesi (i un mitjà per a verificar-la) és que la genealogia dels gens humans actuals s hauria de remuntar fins fa 1,5-2 milions d anys, que és quan, segons la teoria multiregionalista, visqué la població ancestral comuna a tots els humans moderns. En canvi, la teoria de substitució (coneguda popularment com a out of Africa) postula que l origen dels humans anatòmicament moderns és molt més recent, fa uns cent cinquanta mil anys. En aquell període, devien aparèixer a l Àfrica els primers moderns, des d on es van estendre a la resta del Vell Món i van reemplaçar els humans arcaics que l habitaven (neandertals a Europa i l Àsia occidental i Homo erectus a l Àsia oriental). Per tant, la teoria de substitució pressuposa un origen molt més recent per als humans moderns i un temps de coalescència (temps a on es remunta la genealogia) dels gens al voltant dels cent cinquanta mil anys. Els primers estudis de la variabilitat en
LA DIVERSITAT GENÈTICA HUMANA: DE L'ESPÈCIE A L'INDIVIDU 237
el DNA humà semblaven inclinar-se cap a temps de coalescència molt recents. Cann et al. (1987) analitzaren el polimorfisme en dianes d enzims de restricció (RFLP, restriction fragment length polymorphism) en el DNA mitocondrial (mtDNA) en individus de procedència geogràfica diversa. El DNA mitocondrial posseeix qualitats que el fan molt apropiat per a aquesta mena d estudis: és d herència materna i no presenta recombinació, pel que hom en pot resseguir fàcilment els llinatges fins a un avantpassat comú; muta amb una taxa més alta que el DNA nuclear, la qual cosa fa que sigui més polimòrfic i calgui analitzar un fragment més curt de seqüència per trobar variabilitat nucleotídica; i, finalment, se n troben milers de còpies per cèl·lula, la qual cosa en facilita l estudi: pensem que l estudi de Cann et al. és anterior a la difusió de l amplificació de DNA per PCR i que havien de partir del DNA extret de placentes senceres. A part del temps de coalescència recent, Cann et al. van trobar que els africans analitzats presentaven nivells de variabilitat interna més alts que la resta de poblacions i que, en construir un arbre filogenètic de les seqüències, les primeres que se separaven eren africanes. La publicació d aquest article va causar un gran rebombori, ja que la interpretació que en va fer la premsa popular era que tots els humans moderns som descendents d una única dona africana: l Eva mitocondrial. En els àmbits científics sorgiren diverses crítiques: molts dels individus «africans» analitzats eren, de fet, afroamericans; i els RFLP són una primera aproximació, però no una descripció acurada de la variabilitat en una seqüència de DNA. Aquestes crítiques foren adreçades per Vigilant et al. (1991), que seqüenciaren la part més variable del mtDNA, la regió de control, en mostres que incloïen africans. Les conclusions restaren inalterades, i diversos problemes detectats en la construcció de
l arbre filogenètic (Templeton, 1992; Hedges et al., 1992) sembla que han estat resolts sense que s alterin les conclusions principals de l estudi. De totes maneres, el mtDNA es comporta com un sol locus, i donats els amplis efectes estocàstics que operen en la generació de la variabilitat humana, cal la confirmació de molts loci diferents abans de poder acceptar raonablement una hipòtesi. Fins ara, la gran majoria de loci estudiats mostren un temps de coalescència recent i/o una diversitat interna més gran en poblacions africanes i/o la primera separació entre africans i no africans en les filogènies de les poblacions humanes, el que és normalment interpretat com a compatible amb la hipòtesi de substitució. Es tracta dels següents tipus de marcadors: i) Els anomenats marcadors clàssics (Cavalli-Sforza et al., 1994); sota aquest nom es coneixen els polimorfismes proteics: grups sanguinis, electromorfs de proteïnes i enzims plasmàtics, i HLA; ii) RFLP (polimorfimes en les dianes dels enzims de restricció) nuclears (Bowcock et al., 1991); iii) microsatèl·lits, és a dir, repeticions d una unitat de dos a sis nucleòtids, polimòrfics en el nombre de repeticions (Bowcock et al., 1994; Goldstein et al., 1995; Deka et al., 1995; Pérez-Lezaun et al., 1997; Jorde et al., 1997; Calafell et al., 1998); iv) minisatèl·lits (Armour et al., 1996), repeticions d unitats més llargues (deu a trenta nucleòtids), polimòrfics tant en nombre de repeticions com en la seqüència de la unitat repetida; v) insercions d un element Alu, d uns 400 bp, que pot estar present o absent en una determinada posició del genoma (Knight et al., 1996; Stoneking et al., 1997); vi) haplotips, és a dir, conjunts de dos o més marcadors molt propers en el genoma i estretament lligats (Castiglione et al., 1995; Tishkoff et al., 1996; 1998); i
238 F. CALAFELL
vii) polimorfismes del cromosoma Y (Hammer et al., 1997). Sembla que l evidència genètica pesa en gran mesura a favor de la hipòtesi de substitució, encara que queden punts per aclarir, com variabilitat en seqüències nuclears que semblen presentar temps de coalescència de l ordre de vuit-cents mil anys (Harding et al., 1997) o superiors (Hey, 1997). L avenç recent més espectacular en aquest camp ha estat l amplificació i anàlisi del mtDNA del fòssil de neandertal epònim, és a dir, del crani trobat a la vall de riu Neander a Alemanya el segle passat i que dóna nom a aquest grup humà. Krings et al. (1997), en un treball tècnicament impecable, obtingueren la seqüència d un fragment de la regió de control del mtDNA de Neandertal, i trobaren que el temps de divergència respecte de la resta de seqüències humanes conegudes era quatre vegades superior al temps de divergència de les seqüències actuals entre elles, cosa que suggereix que els neandertals no són els nostres avantpassats. Existeix la possibilitat que és produís mescla, potser amb poca freqüència, entre els anatòmicament moderns procedents de l Àfrica i els neandertals. Però Comas et al. (1997), tot examinant les seqüències de 483 europeus actuals, trobaren una alta homogeneïtat entre elles i cap seqüència que destaqués de les altres i pogués representar l herència neandertaliana. El fòssil de Neandertal és només un dels cent a cent-cinquanta mil individus del seu grup les restes del qual ens han pervingut. L anàlisi de mtDNA en altres fòssils de neandertal permetria d obtenir una visió poblacional d aquest grup, més enllà del resultat d un sol individu. Caldrà veure, però, si les condicions de preservació del DNA en el fòssil alemany de Neandertal són semblants a les dels altres fòssils neandertalians, o bé si Neandertal es trobava excepcionalment ben conservat.
Sembla ben establert que els nostres orígens es remunten als grups humans que van aparèixer a l Àfrica fa uns cent cinquanta mil anys, i que, a partir de fa cinquanta o seixanta mil anys s estengueren per tot el Vell Món i substituïren les poblacions arcaiques que hi habitaven. Queden moltes preguntes per respondre, especialment referents a la demografia dels primers humans anatòmicament moderns. Quina era llur grandària poblacional efectiva? Dins de la vastitud del continent africà, quin fou llur origen geogràfic? Quina fou la dinàmica de la substitució? Per respondre aquestes preguntes ens caldran noves eines. La capacitat per a abordar un problema depèn, en primera instància, de la disponibilitat de les dades apropiades que permetin atacar-lo. En aquest sentit, qualsevol mètode que permeti generar més dades sobre polimorfismes genètics en humans amb una major rapidesa i un menor cost econòmic serà molt benvingut. En aquesta direcció, el desenvolupament més prometedor és el de single nucleotide polymorphisms o SNP (pronunciat snips ). Es tracta de polimorfismes consistents en la presència d un o altre nucleòtid en una determinada posició del genoma; els RFLP són un subconjunt dels SNP, en els quals el canvi de nucleòtid provoca guany o pèrdua de la diana d un enzim de restricció. Un SNP presenta, normalment, dos al·lels, i és a priori molt menys informatiu que sistemes com els microsatèl·lits, que solen contenir de quatre o cinc a una vintena o més d al·lels diferents. L avantatge dels SNP rau en la possibilitat d automatitzar-ne l anàlisi i d analitzar-ne un gran nombre alhora. Sembla que la tecnologia que ha de permetre un salt quantitatiu en la productivitat de les anàlisis de diversitat genètica són els xips de DNA, és a dir, petits suports on, mitjançant tecnologia de miniaturització, s han immobilitzat fins a milers de
LA DIVERSITAT GENÈTICA HUMANA: DE L'ESPÈCIE A L'INDIVIDU 239
sondes que reconeixen un o l altre al·lel en milers de SNP diferents (Service, 1998). S aconseguiria, per tant, l anàlisi simultània de milers de loci. Però, per tal que aquestes tècniques coneguin una difusió important, caldrà que se n redueixi significativament el cost, ja que en llur estat actual són prohibitives per a gairebé tots els laboratoris. Encara que la primera aplicació (que tractarem més endavant) dels xips de DNA sembla que serà l anàlisi genètica de malalties complexes, aquest tipus de dades ja es poden tractar des d un punt de vista poblacional. A més, l empresa Affymetrix està desenvolupant xips que es podrien utilitzar per a la seqüenciació de la molècula sencera del DNA mitocondrial. Les seqüències senceres (de 16.500 parells de bases) serien molt més reveladores sobre la genealogia del DNA mitocondrial que no pas les seqüències de fragments de la regió de control (d uns tres-cents seixanta parells de bases) que hom produeix actualment o que la detecció de polimorfisme en llocs de restricció de tota la molècula. Ens podem trobar a les envistes d un devessall d informació, però correm el seriós perill de no estar preparats per a tractar-lo adequadament. Una altra àrea d avenç, en connexió amb la major disponibilitat d informació, ha de ser un major rigor en el plantejament estadístic en les hipòtesis a contrastar i nous tests estadístics per a validar aquestes hipòtesis, que siguin capaços d extreure tota la informació continguda en les dades. En aquest sentit, l abril del 1997 se celebrà a Saint Louis un simposi sobre verificació d hipòtesis en evolució humana, on hom insistí en la necessitat de reconduir el camp cap al marc estadístic de formulació i contrastació d hipòtesis. Cal remarcar els mètodes desenvolupats per Alan Templeton, com el nested cladistic analysis (Templeton, 1998; Hammer et al., 1998).
L estudi de l evolució humana s ha beneficiat molt de la interacció entre científics de diverses disciplines, com genètics de poblacions (tant aquells amb una formació més teòrica com aquells que produeixen les dades en el laboratori), paleoantropòlegs, arqueòlegs i lingüistes. Aquesta col·laboració s ha d intensificar encara més en plantejar-nos nous reptes. Cal també millorar la comunicació entre els diferents àmbits, sovint difícil i esbiaixada per la pròpia formació de cada investigador. El desconeixement de les disciplines alienes porta a situacions en què hom accepta acríticament postulats que són encara molt debatuts (o fins i tot obertament rebutjats) en camps que no són el propi. GENS I LLENGÜES Una de les vies que ha portat a reflexions més interessants ha estat la comparació de la diversitat genètica amb la diversitat lingüística entre poblacions. El 1988, Cavalli-Sforza i els seus col·laboradors van publicar una anàlisi d aquest estil, en què comparaven l arbre filogenètic (construït a partir de les freqüències dels al·lels de polimorfismes clàssics) d un conjunt de poblacions representatiu de la variabilitat mundial amb l arbre filogenètic de les llengües parlades per les mateixes poblacions. Encara que fou rebut amb una enorme controvèrsia (Bateman et al., 1990 i altres articles en el mateix número de Current Anthropology; Cavalli-Sforza et al., 1992), aquest article mostrava una àmplia correlació entre la diferenciació genètica i la diferenciació lingüística entre poblacions, que cal atribuir al fet que els processos estocàstics que operen en poblacions petites i aïllades porten a ambdós tipus de diferenciació. Barbujani i Sokal (1990) mostraren que, a Europa, les zones on el canvi genètic és més
240 F. CALAFELL
brusc solen coincidir amb barreres lingüístiques, a través de les quals, per raons culturals, la migració és menys intensa i s afavoreix la diferenciació genètica entre poblacions. Malgrat que diferenciació genètica i lingüística solen coincidir, els casos en què no ho fan són nombrosos, però permeten de fer valuoses inferències sobre la història de les poblacions. Trobem poblacions ben diferenciades lingüísticament de les del seu entorn, però que genèticament hi són molt semblants, o bé la diferència genètica existeix, però no en el grau que la diferència lingüística faria preveure. És el cas d hongaresos (Guglielmino et al., 1990), finesos (Lahermo et al., 1996), turcs (Calafell et al., 1996; Comas et al., 1996; Richards et al., 1996) i algueresos (Moral et al., 1994). En aquests casos, es degué produir un reemplaçament lingüístic sense una aportació important de població. És el que Colin Renfrew (1992, 1994) anomena «model d elite dominance», en el qual una petita elit ben organitzada és capaç d imposar una llengua i una cultura sense representar una fracció demogràficament important de la població total. També podem trobar exemples de la situació contrària, en què poblacions lingüísticament semblants són genèticament diferents. És el cas d islandesos (Wijsman, 1984), sards (Cappello et al., 1996) i nord-africans de parla àrab (Bosch et al., 1997). El futur de l estudi conjunt de diferenciació genètica i lingüística també es beneficiarà de les noves tecnologies de detecció i anàlisi de polimorfismes genètics, però també caldrà fer un major esforç de comunicació i comprensió entre genetistes i lingüistes. Amb aquestes eines i la disponibilitat de les mostres poblacionals adequades, podrem abordar noves qüestions, com el poblament d Austràlia o l expansió bantu.
ELS GRANS DEBATS CONTINENTALS: EL POBLAMENT D EUROPA I AMÈRICA La història de la població que ocupa un continent o de grups més locals ha estat objecte d un gran nombre de treballs en els darrers anys. El camí epistemològic ha estat semblant: a partir de l estudi d un determinat polimorfisme i comptant amb la informació aportada per altres disciplines (com la lingüística, tal com hem vist anteriorment), hom ha intentat reconstruir la història d una població. A tall d exemple, tractarem com s ha abordat l estudi del poblament de dos continents: Europa i Amèrica. El 1984, l arqueòleg Ammerman i el genetista Cavalli-Sforza proposaren una hipòtesi per al poblament d Europa: l anomenada «onada d expansió» del Neolític. Observaren que les dates d aparició de les primeres restes arqueològiques neolítiques (és a dir, lligades a l agricultura i a la ramaderia en comptes de la caça i recol·lecció, fa entre sis i deu mil anys) seguien un gradient molt clar des del l Orient Mitjà i el sud-est cap al nord-oest d Europa. Paral·lelament, les freqüències al·lèliques dels polimorfismes clàssics, sintetitzades mitjançant anàlisi per components principals, seguien també el mateix gradient o clina (Menozzi et al., 1978; Cavalli-Sforza et al., 1994). Per tant, Ammerman i Cavalli-Sforza (1984) proposaren que la gènesi de les poblacions europees actuals es remunta al període de l expansió del Neolític, en què l augment demogràfic provocat per l aplicació de l agricultura i la ramaderia generà una migració d agricultors en cerca de noves terres. En aquest procés, que cal entendre com a lent (a una mitjana d un km per any) i no necessàriament uniforme en el temps i l espai, els agricultors, molt més nombrosos, absorbiren les poblacions locals de caçadorsrecol·lectors; aquesta onada d expansió va
LA DIVERSITAT GENÈTICA HUMANA: DE L'ESPÈCIE A L'INDIVIDU 241
generar les clines observades actualment en les freqüències al·lèliques en les poblacions europees, així com l alta homogeneïtat genètica entre elles. Al contrari, les poblacions que, per raons primordialment ecològiques, quedaren al marge de l onada d expansió del Neolític, com els bascos (Bertranpetit i Cavalli-Sforza, 1991; Calafell i Bertranpetit, 1993, 1994a, 1994b) i els lapons o sami (Sajantila et al., 1995; Lahermo et al., 1996), preservaren la diversitat genètica creada abans del Neolític. Aquestes dues poblacions, juntament amb islandesos i sards, són les úniques que destaquen dins de l uniforme paisatge genètic europeu. Altres autors, amb tècniques diferents, però sempre a partir de polimorfismes clàssics, confirmaren la hipòtesi de l origen neolític de la diversitat genètica europea: Sokal et al. (1991); Barbujani et al. (1995). I Colin Renfrew (1987) afegí un element nou a la hipòtesi: a part de llurs gens, els agricultors que s expandiren amb el Neolític van estendre també llurs llengües, pertanyents a la família indoeuropea, cosa que n explicaria llur predominança a Europa (totes les llengües parlades a Europa, excepte el basc, l hongarès, el finès, el sami i l estonià pertanyen a la família indoeuropea). Cal remarcar que aquesta és una postura minoritària entre els arqueòlegs i els lingüistes, que donen suport a un origen de la família indoeuropea més tardà i provinent de les estepes del sud de Rússia i Ucraïna (vegeu, per exemple, Mallory, 1989). Com hem remarcat anteriorment, l evidència genètica a favor de l expansió neolítica es basava en els polimorfismes clàssics. En canvi, quan hom va disposar de seqüències de mtDNA per a un gran nombre de poblacions europees i de l Orient Mitjà, les edats obtingudes per a la variabilitat genètica europea apuntaven cap al primer poblament d Europa per humans anatòmicament moderns, fa uns trenta-cinc
mil anys (Richards et al., 1996; Comas et al., 1997), és a dir, un fenomen molt més antic que l expansió del Neolític (fa sis mil o deu mil anys). Cal remarcar que tots dos processos de poblament es donaren en la mateixa direcció, des de l Orient Mitjà cap al SE d Europa i d aquí cap al NW del continent, i que, per tant, es fa difícil destriar-ne el patró geogràfic en la variabilitat genètica. L article de Richards i col·laboradors va originar un animat debat, en què Cavalli-Sforza i Minch (1997) i Barbujani et al. (1998) defensaren, amb diversos arguments, la compatibilitat de les dades mitocondrials amb un origen neolític de la diversitat genètica a Europa. Noves dades de DNA (microsatèl·lits; Chikhi et al., 1998) han proporcionat una data recent per a la diferenciació dels europeus, d acord amb un origen neolític. Aquest és un exemple de com nous tipus d informació poden fer qüestionar allò que semblava un paradigma ben establert. Una situació paral·lela es dóna en el poblament d Amèrica, on hi ha controvèrsies obertes en diversos fronts. En el camp arqueològic, dues hipòtesis situen el primer poblament d Amèrica fa uns 10.000 14.000 anys o fa 30.000 anys, segons hom accepti o no la validesa d alguns jaciments, com el brasiler de Pedra Furada. En el camp lingüístic, la classificació tradicional és molt prudent a l hora de reconèixer grans agrupacions o famílies lingüístiques, el que fa que se n hagin proposat fins a dues-centes (més del doble que en tota la resta del món; Ruhlen, 1987). Però Joseph Greenberg (1987), que ja havia abordat abans la classificació lingüística d Àfrica i de Nova Guinea amb la seva metodologia innovadora i controvertida, va proposar que les llengües del continent americà es podien agrupar en tres grans famílies: esquimal-aleutiana, nadené (que comprèn trenta-quatre idiomes parlats en dos territoris: el NW del Canadà i
242 F. CALAFELL
el SW dels EUA) i ameríndia, que engloba els 583 idiomes restants parlats pels nadius americans. Encara que molt pocs especialistes en filologia de les llengües americanes accepten aquesta classificació, ha estat acollida molt favorablement entre els genetistes, ja que permet de formular hipòtesis senzilles sobre el poblament d Amèrica. Així, el grup de Doug Wallace ha estudiat intensament els haplotips obtinguts mitjançant enzims de restricció en el mtDNA, que classifiquen en quatre grans grups o haplogrups: A, B, C i D (Schurr et al., 1990; Torroni et al., 1992, 1994). Torroni i els seus col·laboradors (1993) proposaren que només un haplotip per haplogrup va entrar a Amèrica provinent d Àsia, en tres onades migratòries corresponents als tres grups lingüístics. En canvi, altres autors (Merriwether i Ferrell, 1996, entre d altres) estimen que múltiples variants de cada llinatge entraren a Amèrica, probablement en una sola onada de migració. La solució a aquest dilema passa probablement per un coneixement més detallat de la variabilitat de la molècula de DNA, millors eines numèriques per a la datació de la variabilitat i la detecció de colls d ampolla (reduccions de la mida d una població amb una recuperació posterior), i potser una reflexió més profunda sobre les relacions entre els orígens de la variabilitat en un gen i la variabilitat en una població. GENS I INDIVIDUS: «TOUS PARENTS, TOUS DIFFÉRENTS» Amb aquest títol, el Musée de l Homme de Paris va organitzar una exposició sobre la diversitat genètica humana. I aquest títol ens serveix per recordar que, malgrat l existència de diferències entre poblacions, un 85 % de les diferències entre humans es donen entre individus de la mateixa pobla-
ció (Lewontin 1972, Barbujani et al., 1997). L estudi de les diferències genètiques entre individus té una aplicació molt clara en el camp de l epidemiologia genètica, és a dir, en l estudi de com les diferències genètiques es relacionen amb la diferent susceptibilitat a malalties, particularment a malalties freqüents. Gràcies, en part, a l impuls generat pel Projecte Genoma Humà, en més de cinccents casos (<http://www3.ncbi.nlm.nih. gov:80/Omim/>), hom coneix quin és el gen que, en rebre mutacions, provoca una certa malaltia. En general, es tracta de malalties d herència mendeliana simple i, amb algunes excepcions (com la fibrosi quística, la fenilcetonúria, l anèmia falciforme i les talassèmies), poc freqüents. En canvi, hom està començant de trobar variants o polimorfismes de DNA relativament freqüents que confereixen un risc elevat a malalties comunes, però que no impliquen una certesa absoluta de patir la malaltia, i sovint el risc es modifica amb altres factors genètics o ambientals. És el cas de la malaltia d Alzheimer i l al·lel 4 de l apolipoproteïna E (Corder et al., 1993), o de les variants de l enzim convertidor de l angiotensina i les malalties cardiovasculars. Cal esmentar especialment l associació de polimorfismes genètics amb malalties psiquiàtriques, com les variants dels receptors de serotonina i esquizofrènia, o el receptor D2 de la dopamina i l alcoholisme (Goldman, 1993), encara que aquest resultat ha estat discutit (Kidd et al., 1996). Més enllà de la malaltia psiquiàtrica, s han arribat ja a associar al·lels d un polimorfisme amb trets normals de la personalitat, com la recerca de novetats (novelty-seeking) i al·lels dins del gen del receptor D4 de la dopamina (DRD4; Benjamin et al., 1996), i han aparegut articles amb títols tan inquietants com «L heretabilitat de la felicitat» (Hamer, 1996). La relació entre variabilitat genètica individual i malaltia s està tractant també
LA DIVERSITAT GENÈTICA HUMANA: DE L'ESPÈCIE A L'INDIVIDU 243
des d un altre angle: la farmacogenètica. Es tractaria d aconseguir receptar el medicament més adequat a cada pacient donat el seu bagatge genètic (Linder et al., 1997). Actualment, ignorant aquesta informació, es recepten medicaments costosos que no són efectius o causen efectes secundaris greus. Una de les vies per la qual s ha començat a abordar la farmacogenètica és l estudi de les variants dels enzims que participen en l absorció, transport, metabolització i degradació dels medicaments. Sovint no és el propi medicament el que causa l efecte terapèutic, sinó un metabòlit; si l enzim que genera la forma activa del medicament es troba en una forma al·lèlica més lenta o fins i tot inactiva, el medicament no tindrà els efectes desitjats. Per exemple, uns vint-icinc medicaments receptats sovint són metabolitzats pel citocrom P4502D6 (West et al., 1997), i el polimorfisme en el gen que el codifica (CYP2D6) afecta la gestió de la teràpia de fins al 17 % dels individus en algunes poblacions (West et al., 1997). Aquesta informació pot ésser utilitzada també per a desenvolupar nous fàrmacs específics per a determinades malalties i genotips dels pacients. En aquest camp, el desenvolupament i la finalització del Projecte Genoma Humà representaran un devessall de nova informació que hom podrà aplicar. El coneixement dels cent mil gens (i de llurs funcions) del nostre genoma permetrà de proposar gens candidats a estar implicats en malalties comunes, o de cercar més ràpidament variants d enzims implicats en el metabolisme dels medicaments. Les noves tecnologies de detecció de variants genètiques, com els xips de DNA esmentats anteriorment, suposen la promesa que, en un futur, els metges podran conèixer els genotips rellevants de llurs pacients a un cost raonable i aconseguir una teràpia personalitzada.
UN MARC GLOBAL: EL PROJECTE DE LA DIVERSITAT DEL GENOMA HUMÀ El Projecte Genoma Humà aspira a seqüenciar el genoma sencer d un sol individu. Davant la riquesa de la variabilitat genètica humana que restaria ignorada, Luca Cavalli-Sforza, Allan Wilson, MarieClaire King i altres publicaren el 1991 un manifest per al llançament d un Projecte de la Diversitat del Genoma Humà (HGDP, Human Genome Diversity Project). En el marc de l HGDP es recollirien mostres de sang de les poblacions humanes considerades més interessants i/o en perill de desaparèixer, per tal de transformar-les mitjançant el virus d Epstein-Barr, que permet de mantenir els limfòcits en cultiu indefinit, de forma que constitueixin una font contínua de DNA. Així, es constituiria un recurs que es podria compartir entre investigadors i que permetria que totes les mostres s analitzessin sempre amb els mateixos mètodes, cosa que no succeïa sovint. Un cop analitzades les mostres, l HGDP s encarregaria de crear les bases de dades que continguessin els resultats obtinguts. Encara que és una iniciativa científicament molt important i que fou molt ben acollida entre els genetistes de poblacions, l HGDP ha estat víctima d intensos atacs, especialment per part d ONG dedicades a les poblacions indígenes americanes. Algunes de les crítiques han estat incorporades al projecte, i ara s insisteix que els donants de mostres per al projecte han de consentir-hi després d ésser informats adequadament; que s assegurarà l anonimat de les mostres, i que s exercirà un control estricte sobre els laboratoris que rebin mostres. Cal també que les poblacions estudiades rebin les contrapartides adequades, des d atenció mèdica fins a la comunicació dels resultats dels estudis, que sovint revelaran la història de la població. I, si mai s obtingués cap produc-
244 F. CALAFELL
te patentable a partir de les línies cel·lulars recollides en l HGDP, el projecte asseguraria que una part dels beneficis retornés a la població originària de la mostra. Fins ara, l HGDP no ha acabat d enlairar-se als Estats Units, on ha rebut informes poc entusiastes del National Research Council. En canvi, a Europa, a una escala més modesta, diversos laboratoris han format una xarxa que, sota els auspicis del programa europeu de Capital Humà i Mobilitat ha començat l intercanvi d investigadors entre laboratoris i l organització de trobades científiques per discutir aspectes (com els marcadors a utilitzar o les bases de dades) de l HGDP. El projecte de la diversitat del genoma humà, encara que no hagi reeixit completament, és un exemple del camí que cal seguir, en termes de cooperació entre laboratoris i estandardització de tècniques, si volem seguir endavant en la recerca del nostre passat escrit al gens. AGRAÏMENTS Voldria reconèixer l impacte que han tingut en la meva formació i en la meva visió sobre aquest camp els meus mestres: Luca Cavalli-Sforza, Alberto Piazza, Guido Barbujani, Ken Kidd i, molt especialment, Jaume Bertranpetit. BIBLIOGRAFIA AMMERMAN, A. J.; L. L. CAVALLI-SFORZA (1984). The Neolithic Transition and the Genetics of Populations in Europe. Princeton: Princeton University Press. ARMOUR, J. A.; T. ANTTINEN; C. A. MAY; E. E. VEGA; A. SAJANTILA; J. R. KIDD; K. K. KIDD; J. BERTRANPETIT; S. PÄÄBO; A. J. JEFFREYS (1996). «Minisatellite Diversity Supports a Recent African Origin for Modern Humans». Nature Genetics, núm. 13, pàg. 154-160. BARBUJANI, G.; R. R. SOKAL (1990). «Zones of Sharp Genetic Change in Europe are also Linguistic Bounda-
ries». Proc. Natl. Acad. Sci. USA, núm. 87, pàg. 18161819. BARBUJANI, G.; R. R. SOKAL; N. L. ODEN (1995). «Indo-European Origins: a Computer Simulation Test of Five Hypothesis». Am. J. Phys. Anthrop., núm. 96, pàg. 109-132. BARBUJANI, G.; A. MAGAGNI; E. MINCH; L. L. CAVALLI-SFORZA (1997). «An Apportionment of Human DNA Diversity». Proc. Natl. Acad. Sci. USA, núm. 94, pàg. 4516-4519. BARBUJANI, G.; G. BERTORELLE; L. CHIKHI (1998). «Evidence for Paleolithic and Neolithic Gene Flow in Europe». Am. J. Hum. Genet., núm. 62, pàg. 488-491. BATEMAN, R. M.; I. O. GODDARD; R. T. GRADY; V. A. FUNK; R. MOOI; W. J. KRESS; P. F. CANNELL (1990). «The Feasibility of Reconciling Human Phylogeny and the History of Language». Curr. Anthrop., núm. 31, pàg. 1-24. BENJAMIN, J.; L. LI; C. PATTERSON; B. D. GREENBERG; D. L. MURPHY; D. H. HAMER (1996). «Population and Familial Association Between the D4 Dopamine Receptor Gene and Measures of Novelty Seeking». Nature Genetics, núm. 12, pàg. 81-84. BERTRANPETIT, J.; L. L. CAVALLI-SFORZA (1991). «A Genetic Reconstruction of the History of the Population of the Iberian Peninsula». Ann. Hum. Genet., núm. 55, pàg. 51-67. BOSCH, E.; F. CALAFELL; A. PÉREZ-LEZAUN; D. COMAS; E. MATEU; J. BERTRANPETIT (1997). «A Population History of Northern Africa: Evidence from Classical Genetic Markers». Hum. Biol., núm. 69, pàg. 295311. BOWCOCK, A. M.; J. R. KIDD; J. L. MOUNTAIN; J. M. HEBERT; L. CAROTENUTO; K. K. KIDD; L. L. CAVALLI-SFORZA (1991). «Drift, Admixture and Selection in Human Evolution: A Study with DNA Polymorphisms». Proc. Natl. Acad. Sci. USA, núm. 88, pàg. 839-843. BOWCOCK, A. M.; A. RUIZ-LINARES; J. TOMFOHRDE; E. MINCH; J. R. KIDD; L. L. CAVALLI-SFORZA (1994). «High Resolution of Human Evolutionary Trees with Polymorphic Microsatellites». Nature, núm. 368, pàg. 455-457. CALAFELL, F.; J. BERTRANPETIT (1994a). «Principal Component Analysis of Gene Frequencies and the Origin of Basques». Am. J. Phys. Anthrop., núm. 93, pàg. 201-215. CALAFELL, F.; J. BERTRANPETIT (1994b). «Mountains and Genes: Population History of the Pyrenees». Hum. Biol., núm. 66, pàg. 823-842. CALAFELL, F.; J. BERTRANPETIT (1993). «A simulation of the Genetic History of the Iberian Peninsula». Curr. Anthrop., núm. 34, pàg. 735-745. CALAFELL, F.; P. UNDERHILL; A. TOLUN; D. ANGELICHEVA; L. KALAYDJIEVA (1996). «From Asia to Europe: Mitochondrial DNA Sequence Variability in Bulgarians and Turks». Ann. Hum. Genet., núm. 60, pàg. 35-49.
LA DIVERSITAT GENÈTICA HUMANA: DE L'ESPÈCIE A L'INDIVIDU 245 CALAFELL, F.; A. SHUSTER; W. C. SPEED; J. R. KIDD; K. K. KIDD (1998). «Short Tandem Repeat Polymorphism in Humans». Eur. J. Hum. Genet., núm. 6, pàg. 38-49. CANN, R.; M. STONEKING; A. C. WILSON (1987). «Mitochondrial DNA and Human Evolution». Nature, núm. 325, pàg. 31-36. CAPPELLO, N.; S. RENDINE; R. GRIFFO; G. E. MAMELI; V. SUCCA; G. VONA; A. PIAZZA (1996). «Genetic Analysis of Sardinia: I. Data on 12 polymorphisms in 21 linguistic Domains». Ann. Hum. Genet., núm. 60, pàg. 125-141. CASTIGLIONE, C. M.; A. S. DEINARD; W. C. SPEED; G. SIRUGO; H. C. ROSENBAUM; Y. ZHANG; D. K. GRANDY; E. L. GRIGORENKO; B. BONNÉ-TAMIR; A. J. PAKSTIS; J. R. KIDD; K. K. KIDD (1995). «Evolution of Haplotypes at the DRD2 Locus». Am. J. Hum. Genet., núm. 57, pàg. 1445-1456. CAVALLI-SFORZA, L. L.; E. MINCH (1997). «Paleolithic and Neolithic Lineages in the European Mitochondrial Gene Pool». Am. J. Hum. Genet., núm. 61, pàg. 247251. CAVALLI-SFORZA, L. L.; A. PIAZZA; P. MENOZZI; J. L. MOUNTAIN (1988). «Reconstruction of Human Evolution: Bringing Together Genetic, Archaeological and Linguistic Data». Proc. Natl. Acad. Sci. USA, núm. 85, pàg. 6002-6006. CAVALLI-SFORZA, L. L.; A. C. WILSON; C. R. CANTOR; R. M. COOK-DEGAN; M. C. KING (1991). «Call for a Worldwide Survey of Human Genetic Diversity: a Vanishing Opportunity for the Human Genome Project». Genomics, núm. 11, pàg. 490-491. CAVALLI-SFORZA, L. L.; E. MINCH; J. L. MOUNTAIN (1992). «Coevolution of Genes and Languages Revisited». Proc. Natl. Acad. Sci. USA, núm. 89, pàg. 5620-5624. CAVALLI-SFORZA, L. L.; P. MENOZZI; A. PIAZZA (1994). History and geography of human genes. Princeton, N. J.: Princeton University Press. CHIKHI, L.; G. DESTRO-BISOL; G. BERTORELLE; V. PASCAL; G. BARBUJANI (1998). «Clines of Nuclear DNA Markers Suggest a Largely Neolithic Ancestry of the European Gene Pool». Proc. Natl. Acad. Sci. USA, núm. 95, pàg. 9053-9058. COMAS, D.; F. CALAFELL; E. MATEU; A. PÉREZ-LEZAUN; J. BERTRANPETIT (1996). «Geographic Variation in Human mtDNA Control Region Sequence: the Population History of Turkey and its Relationship to European Populations». Mol. Biol. Evol., núm. 13, pàg. 1067-1077. COMAS, D.; F. CALAFELL; E. MATEU; A. PÉREZ-LEZAUN; E. BOSCH; J. BERTRANPETIT (1997). «Mitochondrial DNA Variation and the Origin of Europeans». Hum. Genet., núm. 99, pàg. 443-449. CORDER, E. H.; A. M. SANDERS; W. J. STRITTMATTER; D. E. SCHMECHEL; P. C. GASKELL; C. W. SMALL; A. D. ROSES; J. L. HAINES; M. A. PERICAK-VANCE (1993). «Gene Dose of Apolipoprotein E type 4 Allele and the
Risk of Alzheimer Disease in Late Onset Families». Science, núm. 261, pàg. 921-922. DEKA, R.; M. D. SHRIVER; L. M. YU; S. DECROO; J. HUNDRIESER; C. H. BUNKER; R. E. FERRELL; R. CHAKRABORTY (1995). «Population Genetics of Dinucleotide (dCdA)n (dG-dT)n Polymorphisms in World Populations». Am. J. Hum. Genet., núm. 56, pàg. 461-474. GOLDMAN, D. (1993). «The DRD2 Dopamine Receptor and the Candidate Gene Approach in Alcoholism». Alcohol alcohol. suppl., núm. 2, pàg. 27-29. GOLDSTEIN, D. B.; A. RUIZ-LINARES; L. L. CAVALLI-SFORZA; M. W. FELDMAN (1995). «Genetic Absolute Dating Based on Microsatellites and the Origin of Modern Humans». Proc. Natl. Acad. Sci. USA, núm. 92, pàg. 6723-6727. GREENBERG, J. (1987). Language in the Americas. Stanford: Stanford University Press. GUGLIELMINO, C. R.; A. PIAZZA; P. MENOZZI; L. L. CAVALLISFORZA (1990). «Uralic Genes in Europe». Am. J. Phys. Anthrop., núm. 83, pàg. 57-68. HAMER, D. H. (1996). «The Heritability of Happiness». Nature Genetics, núm. 14, pàg. 125-126. HAMMER, M. F.; A. B. SPURDLE; T. KARAFET; M. R. BONNER; E. T. WOOD; A. NOVELLETTO; P. MALASPINA; R. J. MITCHELL; S. HORAI; T. JENKINS; S. L. ZEGURA (1997). «The Geographic Distribution of Human Y Chromosome Variation». Genetics, núm. 145, pàg. 785-805. HAMMER, M. F.; T. KARAFET; A. RASANAYAGAM; E. T. WOOD; T. K. ALTHEIDE; T. JENKINS; R. C. GRIFFITHS; A. R. TEMPLETON; S. L. ZEGURA (1998). «Out of Africa and Back Again: Nested Cladistic Analysis of Human Y Chromosome Variation». Mol. Biol. Evol., núm. 15, pàg. 427-441. HARDING, R. M.; S. M. FULLERTON; R. C. GRIFFITHS; J. BOND; M. J. COX; J. A. SCHNEIDER; D. S. MOULIN; J. B. CLEGG (1997). «Archaic African and Asian Lineages in the Genetic Ancestry of Modern Humans». Am. J. Hum. Genet., núm. 60, pàg. 772-789. HEDGES, S. B.; S. KUMAR; K. TAMURA; M. STONEKING (1992). «Human Origins and Analysis of Mitochondrial DNA Sequences». Science, núm. 255, pàg. 737-739. HEY, J. (1997). «Mitochondrial and Nuclear Genes Present Conflicting Portraits of Human Origins». Mol. Biol. Evol., núm. 14, pàg. 166-172. JORDE, L. B.; A. R. ROGERS; M. J. BAMSHAD; W. S. WATKINS; P. KRAKOWIAK; S. SUNG; J. KERE; H. C. HARPENDING (1997). «Microsatellite Diversity and the Demographic History of Modern Humans». Proc. Natl. Acad. Sci. USA, núm. 94, pàg. 3100-3103. KIDD, K. K.; A. J. PAKSTIS; C. M. CASTIGLIONE; J. R. KIDD; W. C. SPEED; D. GOLDMAN; W. C. KNOWLER; R.-B. LU; B. BONNÉ-TAMIR (1996). «DRD2 Haplotypes Containing the TaqI A1 Allele: Implications for Alcoholism Research». Alcoholism: clinical and experimental research, núm. 20, pàg. 697-705. KNIGHT, A.; M. A. BATZER; M. STONEKING; H. K. TIWARI; W.
246 F. CALAFELL D. SCHEER; R. J. HERRERA; P. L. DEININGER (1996). «DNA Sequences of the Alu Elements Indicate a Recent Replacement of the Human Autosomal Genetic Complement». Proc. Natl. Acad. Sci. USA, núm. 93, pàg. 4360-4364. KRINGS, M.; A. C. STONE; R. W. SCHMITZ; A. KRAINITZKI; M. STONEKING; S. PÄÄBO (1997). «Neandertal DNA Sequences and the Origin of Modern Humans». Cell, núm. 90, pàg. 19-30. LAHERMO, P.; A. SAJANTILA; P. SISTONEN; M. LUKKA; P. AULA; L. PELTONEN; M.-L. SAVONTAUS (1996). «The Genetic Relationship Between the Finns and the Finnish Saami (Lapps): Analysis of Nuclear DNA and mtDNA». Am. J. Hum. Genet., núm. 58, pàg. 1309-1322. LEWONTIN, R. C. (1972). «The Apportionment of Human Diversity». A: DOBZHANSKY, T. H.; HECHT, M. K.; STEERE, W. C. Evolutionary Biology. Nova York: Appleton-Century-Crofts, pàg. 381-398. LINDER, M. W.; R. A. PROUGH; R. J. VALDES (1997). «Pharmacogenetics: a Laboratory Tool for Optimizing Therapeutic Efficiency». Clin. Chem., núm. 43, pàg. 254-266. MALLORY, J. P. (1989). In search of Indo-Europeans. Language, Archaeology and Myth. Londres: Thames and Hudson. MENOZZI, P.; A. PIAZZA; L. L. CAVALLI-SFORZA (1978). «Synthetic Maps of Human Gene Frequencies in Europeans». Science, núm. 201, pàg. 786-792. MERRIWETHER, D. A.; R. E. FERRELL (1996). «The Four Founding Lineage Hypothesis and the New World: a Critical Reevaluation». Mol. Phylogenet. Evol., núm. 5, pàg. 241-246. MORAL, P.; G. MAROGNA; M. SALIS; V. SUCCA; G. VONA (1994). «Genetic Data on Alghero Population (Sardinia): Contrast Between Biological and Cultural Evidence». Am. J. Phys. Anthrop., núm. 93, pàg. 441-453. PÉREZ-LEZAUN, A.; F. CALAFELL; E. MATEU; D. COMAS; R. RUIZ-PACHECO; J. BERTRANPETIT (1997). «Microsatellite Variation and the Differentiation of Modern Humans». Hum. Genet., núm. 99, pàg. 1-7. RENFREW, C. (1987). Archaeology and Language. The Puzzle of Indo-European origins. Londres: Jonathan Cape. RENFREW, C. (1992). «Archaelogy, Genetics and Linguistic Diversity». Man, núm. 27, pàg. 445-478. RENFREW, C. (1994). «World Linguistic Diversity». Sci. Am., núm. 270(1), pàg. 104-110. RICHARDS, M.; H. CORTE-REAL; P. FORSTER; V. MACAULAY; H. WILKINSON-HERBOTS; A. DEMAINE; S. PAPIHA; R. HEDGES; H. J. BANDELT; B. SYKES (1996). «Paleolithic and Neolithic Lineages in the European Mitochondrial Gene Pool». Am. J. Hum. Genet., núm. 59, pàg. 185-203. RUHLEN, M. (1987). A guide to the world s languages. 1a edició. Stanford: Stanford University Press.
RUVOLO, M. (1997). «Molecular Phylogeny of the Hominoids: Inferences from Multiple Independent DNA Sequence Data Sets». Mol. Biol. Evol., núm. 14, pàg. 248-265. SAJANTILA, A.; P. LAHERMO; T. ANTTINEN; M. LUKKA; P. SISTONEN; M.-L. SAVONTAUS; P. AULA; L. BECKMAN; L. TRANEBJAERG; T. GEDDE-DAHL; L. ISSEL-TARVER; A. DI RIENZO; S. PÄÄBO (1995). «Genes and Languages in Europe: an Analysis of Mitochondrial Lineages». Gen. Res., núm. 5, pàg. 45-52. SCHURR, T. G.; S. W. BALLINGER; Y. GAN; J. A. HODGE; D. A. MERRIWETHER; D. N. LAWRENCE; W. C. KNOWLER; K. M. WEISS; D. C. WALLACE (1990). «Amerindian Mitochondrial DNAs have Rare Asian Mutations at High Frequencies, Suggesting they Derived from Four Primary Paternal Lineages». Am. J. Hum. Genet., núm. 46, pàg. 613-623. SERVICE, R. F. (1998). «DNA Xips Survey an Entire Genome». Science, núm. 281, pàg. 1122. SOKAL, R. R.; N. L. ODEN; L. WILSON (1991). «Genetic Evidence for the Spread of Agriculture in Europe by Demic Diffusion». Nature, núm. 351, pàg. 143-145. STONEKING, M.; J. J. FONTIUS; S. L. CLIFFORD; H. SOODYALL; S. S. ARCOT; N. SAHA; T. JENKINS; M. A. TAHIR; P. L. DEININGER; M. A. BATZER (1997). «Alu Insertion Polymorphisms and Human Evolution: Evidence for a Larger Population Size in Africa». Gen. Res., núm. 7, pàg. 1061-1071. TEMPLETON, A. R. (1992). «Human Origins and Analysis of Mitochondrial DNA Sequences». Science, núm. 255, pàg. 737. (1998). «Nested Clade Analysis of Phylogeographical Data: Testing Hypotheses About Fene Flow and Population History». Mol. Ecol., núm. 7, pàg. 381397. TISHKOFF, S. A.; E. DIETZCH; W. SPEED; A. J. PAKSTIS; J. R. KIDD; K. CHEUNG; B. BONNÉ-TAMIR; S. SANTACHIARABENERECETTI; P. MORAL; M. KRINGS; S. PÄÄBO; E. WATSON; N. RISCH; T. JENKINS; K. K. KIDD (1996). «Global Patterns of Linkage Disequilibrium at the CD4 Locus and Modern Human Origins». Science, núm. 271, pàg. 1380-1387. TISHKOFF, S. A.; A. GOLDMAN; F. CALAFELL; W. C. SPEED; A. S. DEINARD; B. BONNÉ-TAMIR; J. R. KIDD; A. J. PAKSTIS; T. J. JENSEN; K. K. KIDD (1998). «A Global Haplotype Analysis of the DM Locus: Implications for the Evolution of Modern Humans and the Origin of Myotonic Dystrophy Mutations». Am. J. Hum. Genet., núm. 62, pàg. 1389-1402. TORRONI, A.; T. G. SCHURR; C. C. YANG; E. J. E. SZATHMARY; R. C. WILLIAMS; M. S. SCHANFIELD; G. A. TROUP; W. C. KNOWLER; D. N. LAWRENCE; K. M. WEISS; D. C. WALLACE (1992). «Native American Mitochondrial DNA Analysis Indicates that the Amerind and the Nadene Populations were Founded by Two Independent Migrations». Genetics, núm. 130, pàg. 153-162.
LA DIVERSITAT GENÈTICA HUMANA: DE L'ESPÈCIE A L'INDIVIDU 247 TORRONI, A.; T. G. SCHURR; M. F. CABELL; M. D. BROWN; J. V. NEEL; M. LARSEN; D. G. SMITH; C. M. VULLO; D. C. WALLACE (1993). «Asian Affinities and Continental Radiation of the Four Founding Native American mtDNAs». Am. J. Hum. Genet., núm. 53, pàg. 563-590. TORRONI, A.; J. V. NEEL; R. BARRANTES; T. G. SCHURR; D. C. WALLACE (1994). «Mitochondrial DNA clock for the Amerinds and its Implications for Timing their entry into North America». Proc. Natl. Acad. Sci. USA, núm. 91, pàg. 1158-1162. VIGILANT, L.; M. STONEKING; H. HARPENDING; K. HAWKES;
A. C. WILSON (1991). «African Populations and the Evolution of Mitochondrial DNA». Science, núm. 253, pàg. 1503-1507. WEST, W. L.; E. M. KNIGHT; S. PRADHAN; T. S. HINDS (1997). «Interpatient Variability: Genetic Predisposition and other Genetic Factors». J. Clin. Pharmacol., núm. 37, pàg. 635-648. WIJSMAN, E. M. (1984). «Techniques for Estimating Fenetic Admixture and Applications to the Problem of the Origins of the Icelanders and the Ashkenazi Jews». Hum. Genet., núm. 67, pàg. 441-448.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 249-266
LES INFECCIONS DEL FUTUR RAFAEL ABÓS I HERRÀNDIZ Unitat Clinicoepidemiològica. Ciutat Sanitària i Universitària de Bellvitge. Adreça per a la correspondència: ABS Baix Berguedà. Carrer Pau Casals, 1. 08692 Puig-Reig. Telèfon 93 829 02 88. Fax 93 838 13 02. Adreça electrònica: Abosh@hotmail.com
INTRODUCCIÓ Els agents infecciosos han modulat la història de la vida a la terra. Virus, bacteris, fongs, protozous i d altres mircoorganismes han interaccionat amb la humanitat i en les relacions d aquesta amb la resta dels organismes terrestres. Factors transnacionals com són els ajustaments macroeconòmics i polítics, el comerç, els viatges, la demografia, les emigracions, la seguretat alimentària, el medi ambient, l ús de la tecnologia i les comunicacions contribueixen a fer més complexa i rica la comprensió del comportament d aquells microorganismes, en un entorn global en constant evolució. D igual manera que en el passat les infeccions van modular la història (Benedictow, 1987), les infeccions per nous agents i l aparició d antigues malalties infeccioses sota un altre comportament configuraran el nostre futur. És un repte ineludible que abordarem al llarg d aquest treball.
Els lectors trobaran en aquest capítol quatre grans àrees de comprensió. La primera es dedica al marc conceptual i s hi descriu la biodiversitat a la terra, el perfil demogràfic de la família humana, l epidemiologia, com una de les eines disponibles per a l estudi de les malalties infeccioses i, finalment, una projecció de futur en matèria de malalties infeccioses. La segona divisió fa un recorregut pels diversos vehicles de transmissió de malalties infeccioses. En el tercer tram, els lectors es trobaran amb un conjunt de malalties considerades importants, el grau de les quals ve donat pel nivell de gravetat que presenten, per la magnitud de l afectació que demostren a escala global, per la impossibilitat actual de trobar-hi tractament i per la importància social que tenen. El quart apartat es dedica a l organització sanitària i de recerca en la lluita contra les malalties infeccioses. Acabarem donant unes pinzellades sobre el futur proper de tot aquest entorn. Les malalties infeccioses no són un tema per recordar com una qüestió obsoleta i
250 R. ABÓS I HERRÀNDIZ
allunyada de la realitat present, ans al contrari. En el darrer any del segle XX, el Cinquè Programa Marc de Recerca de la Unió Europea, estableix que una de les cinc accions prioritàries en recerca serà el control d aquestes malalties. És possible que després de la lectura del present capítol hom tingui la impressió que han quedat en el tinter diversos agents infecciosos o malalties específiques. El cert és que no es tracta de presentar un manual de malalties infeccioses per a biòlegs motivats, sinó de mostrar un perfil de projecció futura de convivència i predació entre la humanitat i els microorganismes vius. EL MARC DE LES MALALTIES INFECCIOSES Biodiversitat i ecologia mundial Existeixen aproximadament 1,4 milions d organismes al planeta Terra que han estat descrits morfològicament, però tan sols l 1 % d aquestes espècies ha estat sotmès a l escrutini molecular (Leipe, 1996). La caracterització individualitzada i el paper que desenvolupen en el conjunt de la diversitat biològica de la terra és, ara per ara, desconegut. La visió de la Terra des de l espai permet veure-la com un planeta únic i compartit, on totes les espècies es mostren en equilibri entre elles i amb la mateixa Terra. Aquest equilibri, fi i estable a escala geològica, sembla regit per una entitat major que assegura la supervivència de les espècies més adaptades. Gaia, que és l antic nom grec que es donava a la deessa terra, és el nom que rep aquesta teoria científica que engloba la Terra i el conjunt d éssers vius. Gaia, que és testable i té el seu propi model matemàtic (Lovelock, 1995), explica que la vida a la Terra té una gran diversitat de formes, colors i com-
portaments i que la desestabilització dels sistemes naturals no té, en aquests moments, un solució tècnica. Un cúmul de creences equivocades i sense base científica defensen la idea que cada problema té una solució tècnica (Cavalieri i Kocak, 1995), que la societat humana pot alterar el sistema natural segons les seves necessitats i que aquests sistemes són incapaços de modificar la societat humana (Cairns, 1996; Kump, 1996). Centrats en aquest escenari biològic, l espècie humana és una espècie més que habita la superfície de Gaia. Fem-hi un cop d ull. Demografia mundial És en un marc de biodiversitat esponerosa i d un ús inadequat dels recursos de Gaia, que l espècie humana creix, es desplaça, es multiplica, emmalalteix i mor. Es creu que en el primer quinquenni del segle XXI, la població global del planeta passarà a una xifra oscil·lant al voltant dels dotze mil milions de persones. En els propers vint-i-cinc anys aquest procés de creixement, ni s aturarà (Creep, 1998) ni sembla que hagi de comportar una catàstrofe global per exhauriment de recursos. El que es pot preveure que molt probablement passarà és un augment dels problemes socials (Cleland, 1996). L epidemiologia i els sistemes de vigilància epidemiològica L epidemiologia és una ciència bàsica i multidisciplinària que vol aproximar-se a la comprensió de la causalitat de les malalties en les poblacions (Pearce, 1996; Spitzer, 1996). La investigació de les infeccions1, dels brots epidè1. Infecció: procés resultant del trobament entre un agent potencialment patogènic i un hoste humà amb una porta d entrada adequada. OSTERHOLM, M. T.; C. W. HEDBERG; K. L. MACDONALD (1997). «Epidemiologia de las enfermedades infecciosas». A: MANDELL, G. L.; J. E. BENNETT; R. DO-
LES INFECCIONS DEL FUTUR 251
mics2 i de les pandèmies3, que no formen part exclusiva de l epidemiologia i la salut pública, permeten identificar la font del brot, estudiarne la possible prevenció de casos i de brots nous i incrementar els coneixements d una malaltia determinada (Reingold, 1998). L epidemiologia es nodreix, en part, de la informació que arriba als centres de recollida d aquest tipus de dades i a partir de les notificacions que certifica el personal mèdic, que en la seva extensió s anomena vigilància epidemiològica. Tot plegat permet detectar els inicis d una epidèmia i actuar-hi en conseqüència. Però no tot és explicable mitjançant l epidemiologia, la vigilància epidemiològica o altres tècniques. Els registres de mortalitat contenen sovint morts inexplicables que malgrat no poder ser atribuïdes a malalties infeccioses, en alguns casos, es comencen a identificar amb aquesta mena d entitats (Perkins et al., 1996). La necessitat de millors sistemes de vigilància topa amb els recursos escassos, que ara per ara es basen en mecanismes d informació passiva. A més, el resultat d un estudi epidemiològic pot ser útil per a una àrea concreta però és sovint qüestionable si pot extrapolar-se a altres àrees o països (Todd, 1997). A la complexitat de la coordinació necessària entre les diverses disciplines, cal afegir-hi la diversitat d estratègies de control i maneig de les malalties i l enorme varietat d agents patògens, de vectors i de poblacions de risc (Meslin, 1997a).
Les malalties del futur Si consultem l índex d un llibre de malalties infeccioses ens adonarem ràpidament de la gran varietat de microorganismes que poden causar malaltia (Mandell et al., 1997). Alguns ho fan de manera subtil, larvada i poc important. En canvi, altres mostren una extrema agressivitat contra el gènere humà. L Organització Mundial de la Salut (OMS) ha realitzat un estudi anomenat Global Burden of Disease Study (Murray i Lopez, 1996) que pretén conèixer les malalties que més impacten sobre la vida, tot calculant el nombre d anys que viu una persona amb discapacitat. El model final prediu, en ordre descendent, nou causes principals de discapacitat: la malaltia coronària, la depressió major, els accidents de trànsit, la malaltia cerebrovascular, la malaltia pulmonar obstructiva crònica, les infeccions respiratòries del tracte inferior, la tuberculosi, les ferides de guerra i la diarrea. En més de la meitat d elles estan presents, de forma directa o indirecta, les infeccions. Podem dir que, globalment, la tendència de la salut en els propers vint-i-cinc anys vindrà determinada per l envelliment de la població mundial, la disminució de la mortalitat per malalties comunicables, l extensió de la sida i l augment de mortalitat atribuïble al tabac (Murray i Lopez, 1997). D elles, també dues tenen relació directa amb les infeccions. El que es facin més o menys presents dependrà de diversos factors que ara anirem desenvolupant.
LIN, Enfermedades infecciosas. Principios y prácticas. 4a ed.
Editorial Panamericana, pàg. 177-188. 2. Epidèmia: malaltia infecciosa, accidental i transitòria, que es difon a un gran nombre de persones d un territori o una regió determinats. CASASSAS, O. (dir. ) (1990) Diccionari enciclopèdic de medicina. Acadèmia de Ciències Mèdiques de Catalunya i Balears; Enciclopèdia Catalana, pàg. 501. 3. Pandèmia: malaltia epidèmica estesa a molts països i que afecta molts individus del mateix país a la vegada. CASASSAS, O. (dir.) (1990) Diccionari enciclopèdic de medicina. Acadèmia de ciències mèdiques de Catalunya i Balears; Enciclopèdia Catalana, pàg. 1132.
ELS FACTORS QUE VEHICULITZEN LES MALALTIES INFECCIOSES Viatjar: transport de vectors Les troballes fòssils dels primers homínids mostren que ben d hora l instint de supervivencia i conservació els llençà al canvi
252 R. ABÓS I HERRÀNDIZ
de paratges per buscar un millor hàbitat (Wilson, 1995). En el Neolític, els humans i els seus animals domèstics s encarregaven de transportar ells mateixos els vectors de malalties. Amb l arribada de la navegació i els transports, qualsevol tipus de nau o vehicle pot transportar els vectors que, a més, aprofiten per reproduir-s hi. Actualment, els vols d avió han reduït tant les distàncies que en dos dies un insecte pot arribar a qualsevol part del món. És en aquest sentit que el transport afavoreix el període d incubació de les malalties. Aquest moviment té la peculiaritat d haver-se constituït en un mecanisme molt potent per explicar l emergència de diverses malalties en la població visitada i en el seu ecosistema (Wilson, 1995); ja a mitjan segle XIX Warren (1879) formulava hipòtesis en aquesta direcció. L exemple de la gran extensió mundial de tifus murí de finals del segle XIX estesa de port en port pels vaixells de vapor infectats de rates i puces i la colonització immediata de mosquits, vector de la febre groga, de l aeroport de la Polinèsia francesa acabat d estrenar, fan veure que l activitat humana genera infeccions noves en nous llocs. Un possible mecanisme que pot aturar en alguns casos aquesta expansió de nous agents en paratges inèdits pot ser la dificultat que mostren a l adaptació al nou entorn, que no sempre es produeix (Mouchet et al., 1995). Les migracions humanes, que han estat el vehicle de disseminació de malalties infeccioses i han fet desplaçar cultures senceres i despoblar territoris (Martin, 1996), continuaran definint el tipus d emergència, la freqüència i l extensió d infeccions en la geografia i en la població en el futur. Quan viatgem, els humans ho fem amb el bagatge genètic, les marques immunològiques d antigues infeccions, les preferències culturals, els costums, els comportaments i un ample
ventall d agents biològics estesos pel cos. Potser, fins i tot, ens acompanya un cert tipus d animal més o menys domèstic (Wilson, 1995). Els actuals volum, velocitat i destinació dels viatges no tenen precedent conegut a la història de la humanitat. De manera concomitant, els canvis en l entorn, el clima, la tecnologia, l ús i conreu de la terra, el mateix comportament humà i la demografia convergeixen a afavorir l emergència de malalties infeccioses causades per un gran marge d organismes en humans, en altres animals i en plantes (Wilson, 1995). La proliferació de microorganismes, que acaba produint les infeccions, troba el terreny adobat en poblacions humanes fetes vulnerables per la violència social, econòmica o política del moment, a banda del substrat patològic previ. Aquestes poblacions són víctimes de desplaçaments massius i han d abandonar el seu marc de referència geogràfic habitual. Això altera la seva nutrició habitual, els sotmet a estrès psíquic i tot plegat facilita l accés d infeccions i malalties. Aquesta situació, portada a l extrem, produeix situacions calamitoses que poden provocar la mort de més d un milió de persones per desnutrició en molt poc temps (Jourand, 1998). Si posem com exemple un continent sencer ens adonarem una mica més de la subtil combinació de complexitat i fragilitat que guarda l equilibri entre l espècie humana i Gaia. El continent africà, on viu aproximadament el 8 % de la població mundial, té nombrosos perills naturals com són les sequeres, les inundacions i els focs i plagues a l agricultura. A la vegada, els desastres naturals interaccionen amb els desastres causats per l home, com són els conflictes armats, els accidents de carretera, d avió i tren i els accidents en les indústries de la mineria i la química. A tot això, cal afegir un context de ràpid creixement po-
LES INFECCIONS DEL FUTUR 253
blacional a tot el continent, moviments forçats de població, degradació ambiental, urbanització precària, inseguretat alimentària, pobresa i fragilitat econòmica, infraestructural, institucional, cultural i política. Tots els cinquanta-tres països de l Àfrica estan considerats, des d aquest punt de vista, vulnerables. Al juny del 1996 hi havia urgències alimentàries a catorze països amb vint-i-dos milions de persones afectades d escassetat d aliments. A més, els diferents conflictes bèlics han destruït el 70 % de la xarxa de salut d alguns països i han deixat enterrades entre trenta i quaranta milions de mines antipersones, fent de l Àfrica el continent més infectat de mines terrestres del món (Loretti, 1996). En ecologia es descriu l anomenada síndrome del destret (distress) de l entorn, per la qual la manca de predadors importants porta a una selecció de patògens i això podria facilitar l emergència d infeccions. El ressorgiment de brots d hantaviriasi acompanyats d una mala climatologia a les àrides terres del sudest nord-americà i l aparició d una nova variant de Vibrio cholerae (O139 Bengal), emergent a l Àsia i acompanyada de marees roges, suggereixen la necessitat d un entorn unificat entre la salut, la climatologia i l ecologia (Epstein, 1995). Tampoc falta qui afirma que un augment d alguna malaltia infecciosa sembla precedir en el temps a catàstrofes i esdeveniments calamitosos (Radovanovich, 1996). El sexe: les malalties de transmissió sexual (MTS) A finals del segle XX, les MTS són les infeccions notificades més comunes al món. Aquest fet s ha vist marcat per l aparició de la pandèmia del virus de la immunodeficiència humana (VIH) que, juntament amb altres malalties de transmissió sexual, se sinergitzen.
Malgrat que el coneixement general de les MTS creix entre els viatgers, podem afirmar que el nivell de coneixements de què disposem té molt poc a veure amb les actituds finals que trobem, de manera que es dóna una gran diversitat de comportaments sexuals entre els viatgers i els habitants locals (Mulhall, 1996). Els trasplantaments L acció dels trasplantaments és beneficiosa per alleugerir i combatre malalties o dèficits metabòlics en substituir un òrgan sòlid (per exemple, el fetge) o líquid (la sang). Aquesta tècnica necessita de l ajuda de la histocompatibilitat que busca entre la diversitat genètica i la distribució geogràfica dels donadors el teixit que li sigui més compatible. Tant l una com l altra van en augment, i això pot facilitar l aparició de microorganismes en el període de posttrasplantament (Whiting et al., 1997). El possible ús d òrgans d animals per al trasplantament a humans (xenotrasplantaments) pot portar, si no es prenen mesures, a l emergència d un conjunt de noves malalties anomenades xenozoonosis. Amb tot, el risc d infecció en un trasplantat depèn de la intensitat de l exposició a l agent patogen i de l estat de la immunitat de l hoste. Aquest risc canvia en el temps posterior al trasplantament i tampoc és constant per a tots els agents patògens. En el període immediat al recanvi d un òrgan els agents que es fan més freqüents són el Toxoplasma sp., l Herpes simplex, el Pneumocitis carinii, i la Nocardia asteroides. Fins als sis mesos després es poden fer presents el Citomegalovirus (CMV), el virus Epstein-Barr (VEB), els virus B (VHB) i C (VHC) de l hepatitis i el VIH. La combinació d immunosupressors i d infecció viral afavoreix l aparició del Pneumocitis carinii i de la Lysteria monocytogenes. Més enllà dels sis primers
254 R. ABÓS I HERRÀNDIZ
mesos, als esmentats CMV, VEB, VHB y VHC cal afegir el Papillomavirus. En definitiva, per augmentar la seguretat de l òrgan trasplantat en el futur, cal augmentar la sensibilitat dels tests diagnòstics detectant infeccions incipients, monitoritzar millor la funció de la immunitat i desenvolupar noves terapèutiques antibiòtiques (Fishman i Rubin, 1998). Tot això, sense tenir en compte que les institucions tancades, les concentracions humanes retingudes, siguin sanitàries (Morb. Mortal. Wkly. Rep., 1997a), militars o de qualsevol altre tipus (Olson et al., 1995), poden també generar certes malalties anomenades nosocomials.4 Les infeccions nosocomials o emmalaltir sense viatjar Constantment apareixen guies científiques per millorar la vigilància i el control de les infeccions dins dels hospitals on es fa referència a noves modalitats de malalties, com poden ser, per exemple, i dins l aparell respiratori, la malaltia del legionari, apareguda el 1979, o una altra entitat com l aspergil·losi. Hem de tenir en compte que la pneumònia és la segona infecció nosocomial més comuna als Estats Units i s associa amb una alta morbiditat i mortalitat. El desenvolupament de noves tecnologies en el camp de la sanitat pot aportar una millora de la capacitat diagnòstica prèvia, però donada l agressivitat d algunes tècniques invasives i terapèutiques s incrementa el risc d infecció nosocomial (Morb. Mortal. Wkly. Rep., 1997b), que cal combatre amb una farmacologia antibiòtica més potent. 4. Nosocomial: relatiu a un nosocomi. Nosocomi: establiment on hom té cura dels malalts. CASASSAS, O. (dir. ) (1990) Diccionari enciclopèdic de medicina. Acadèmia de ciències mèdiques de Catalunya i Balears; Enciclopèdia Catalana, pàg. 1069.
Un problema especial: les infeccions zoonòtiques5 L emergència i reemergència de zoonosis és un tema complex, perquè abarca agents zoonòtics coneguts, que apareixen en llocs prèviament no observats, i agents que desapareixen i tornen a aparèixer més tard i més lluny, en forma epidèmica (Meslin, 1997b). És cert però, que molts nous patògens humans, emergents o reemergents a tot el món, provenen d animals o de productes originaris dels animals, i per això, moltes espècies d animals estan implicades en la reaparició de malalties. Així, animals salvatges (ratpenats i tot tipus de rosegadors), animals de tir (cavalls) i animals destinats al consum humà (vacuns i bovins) hi estan implicats. Molts dels agents responsables de les noves infeccions i de les malalties en humans són virus (Hantavirus, Lyssavirus i Morbillivirus) l impacte dels quals encara roman desconegut. Els bacteris, especialment els entèrics (Salmonellae sp. i Escherichia coli) també estan involucrats, de manera important, en els grans brots de toxiinfeccions alimentàries. A més, s especula sobre l origen zoonòtic d algunes malalties humanes com l Èbola, la nova variant de la malaltia de Creutzfeldt-Jakob i les encefalitis, en aquest darrer cas transmesa per simple convivència entre animal i humà. En tot cas, encara queda molt per conèixer sobre les infeccions virals zoonòtiques (Zaki, 1997). El bioterrorisme Els agents inductors de malaltia infecciosa han estat, són i seran, malauradament, 5. Zoonosi: denominació genèrica de les malalties dels animals, especialment de les que poden ésser transmeses a l home, com per exemple la brucel·losi. CASASSAS, O. (dir. ) (1990) Diccionari enciclopèdic de medicina. Acadèmia de ciències mèdiques de Catalunya i Balears; Enciclopèdia Catalana, pàg. 1626-1627.
LES INFECCIONS DEL FUTUR 255
objectes d estudi i mercadeig de la indústria de l armament i de la guerra. L amenaça que suposa un microorganisme biològicament agressiu en determinades circumstàncies socials o geogràfiques pot esdevenir un objecte cobdiciat per grups terroristes. No ha d estranyar l existència de diverses publicacions científiques que analitzen el cost econòmic d un suposat atac amb armes biològiques carregades amb tres clàssics agents patògens (Bacillus anthracis, Brucella melitensis, Francisella tularensis) contra una suposada gran ciutat occidental. Els autors troben justificació econòmica a desenvolupar mesures de profilaxi immediatament després de l exposició (Kaufmann et al., 1997; Russell, 1997) a aquests agents. LES PRINCIPALS MALALTIES La sida La situació mundial d aquesta malaltia és inestable i alarmant. Des que es va reconèixer la sida l any 1981 ha esdevingut una pandèmia amb noves subepidèmies regionals del virus estenent-se ràpidament en diferents continents (April et al., 1997). Avui, se n han identificat dues formes: el VIH-1, que està distribuït per tot el món, i el VIH-2, restringit als països de l Àfrica occidental (Mandell et al., 1997). Vers l any 2000 més de quaranta milions de persones n estaran infectades (Quinn, 1995) perquè a escala global l epidèmia del VIH no ha arribat al seu màxim: en uns anys, dotze milions de persones s afegiran als vint-i-vuit milions existents (April et al., 1997; Khan i Walter, 1998). La repercusió de l epidèmia de sida en moltes parts del món en desenvolupament és ja greu i serà pitjor a mesura que augmenti el nombre de malalts. La sida no només afecta els individus infectats, les seves famí-
lies i els seus amics, sinó també a la comunitat, amb repercussió perllongada sobre el sector sanitari, la demografia i els sistemes econòmics i socials. Potser l aspecte més visible de l epidèmia de la sida és el gran nombre d homes (Mandell et al., 1997) i especialment de dones africanes (Fowler et al., 1997) als hospitals, que constitueixen més del 50 % de tots els malalts ingressats. Avui, la sida és la causa principal de mort en adults en una ciutat com Abidjan (Mandell et al., 1997). De la mateixa manera, la càrrega global d aquesta malaltia i l impacte econòmic que genera en el països avantatjats és també molt important: entre el joves dels Estats Units la sida ha esdevingut la primera causa de mort en homes i la quarta en dones. Els afectats pertanyen majoritàriament al sector productiu d aquelles societats (Piot i Merson, 1997). La sida, per sobre de tot, és una MTS i per tant, la conducta sexual és el determinant més important de la seva extensió (Mandell et al., 1997). A més, es transmet també parenteralment i perinatalment (Quinn et al., 1995). Malgrat que les circumstàncies i els antecedents personals són definitoris per descriure la capacitat de recepció i disseminació d aquest virus (Hansen, 1997), la probabilitat de transmissió de persona a persona per altres vies és quantificable, i encara que molt petita, és real. Posem-ne dos exemples. Els treballadors de la sanitat que han rebut exposicions ocupacionals del VIH-1, per punció amb agulles de malalts, s han infectat amb una proporció del 0,3 % (Mandell et al., 1997); el sector de la sanitat ha vist com els seus treballadors portadors també poden escampar la malaltia amb una probabilitat com a mínim entre 0,03 i 7,5 per milió en cada procediment (Hansen i McIntire, 1996). S han fet avenços espectaculars en la comprensió de la patogènesi del virus VIH, en el control de la sida i en el seu tractament
256 R. ABÓS I HERRÀNDIZ
(Morb. Mortal. Wkly. Rep., 1998; Hirschel i Francioli, 1998) de manera que cada cop combinacions més agressives de nous fàrmacs maximalitzen la supressió de la replicació viral (Morb. Mortal. Wkly. Rep., 1998). Per ells mateixos, els avenços en la teràpia antiviral que ha aportat l aparició de la sida són espectaculars perquè prèviament a aquella les opcions de qualsevol tractament antivíric eren remotes o simplement nul·les. Malgrat els grans avenços en aquesta malaltia i les seves complicacions, encara manca una comprensió global del funcionament del virus i del desenvolupament fisiopatològic de la malaltia que produeixen (Miles, 1997), més i millors estratègies preventives (April et al., 1997) i una implicació més gran de tots els sectors afectats per tal d obtenir una millor qualitat de vida per als pacients (Miles, 1997). En qualsevol cas, el segle XX, des del punt de vista de les malalties infeccioses, quedarà marcat per l eradicació de la verola i l aparició de la sida (Mandell et al., 1997). Cinc malalties letals L OMS té identificades les cinc malalties amb més letalitat. Deixant a banda la sida, aquestes són la pneumònia, la diarrea, el xarampió, la malària i la malnutrició. Elles soles arrosseguen més del 70 % de les morts entre els infants de menys de cinc anys en els països en desenvolupament (B. World Health Organ., 1995). La presentació de la darrera entitat excedeix els límits del treball i el xarampió el trobaran més endavant. La pneumònia i el virus de la influença El virus de la influença (o virus de la grip) és un dels microorganismes acel·lulars amb major ubiqüitat del planeta i el causant de pneumònies a una gran part de la població mundial. La dinàmica natural i el
comportament d aquest agent necessita supervisió i iniciatives de prevenció i control. Diverses institucions d abast internacional treballen plegades per obtenir la composició de la vacuna d un any per a l altre. Aquests centres són l OMS, els Centers for Disease Control and Prevention d Atlanta, als Estats Units, l exèrcit nord-americà i setanta laboratoris col·laboradors estesos arreu (Williams et al., 1997). Per la preocupació que una nova soca d influença pogués assolir característiques semblants a la pandèmia vírica patida el 1918-1919, l any 1947 es va crear un programa de vigilància específic per al virus influença. La vacunació massiva no va aturar els brots dels anys 1957 i 1969. Sens dubte, el comerç i la xarxa actual de transports mundials fan que la disseminació de la influença, en aquest cas, sigui molt fàcil (Hampson, 1997). A més del virus de la influença, la bronquitis aguda, com a trastorn inflamatori de l arbre traqueobronquial, que acostuma a associar-se amb la infecció respiratòria generalitzada (Gwaltney, 1997), pot combinarse amb altres agents virals (Donowitz i Mandell, 1997). Les diarrees i les toxiinfeccions alimentàries (TIA) La transmissió de microorganismes toxigènics a l alimentació ha estat un assumpte d interès sanitari i social durant dècades. Als anys cincuanta, el botulisme del menjar envasat, la salmonel·losi provinent d animals portadors i la infestació per estafilococs de tot tipus de producte alimentari eren infeccions conegudes a bastament (Foster, 1997). Però la preocupació per les TIA ha augmentat en les darreres dues dècades entre els governants i la indústria de l alimentació. Els motius són diversos: l aparició de nous agents que afecten els humans, la tro-
LES INFECCIONS DEL FUTUR 257
balla que agents tradicionalment no associats amb l alimentació ara ho estan, el nombre creixent de grans eclosions epidèmiques, el fort impacte de les TIA en els menors, els immunodeficients i els anciants, les poblacions que emigren lluny i demanen la seva alimentació original i, en darrer terme, el desenvolupament d una florent industria de l alimentació que inclou l aqüicultura. Es considera que avui l epidemiologia de les malalties vehiculitzades per l alimentació està fent una transició. Nous patògens emergeixen (Listeria monocytogenes, Escherichia coli O157:H, Campylobacter jejuni i Vibrio parahaemolyticus; Foster, 1997). D altres, que s han estès pel món (Salmonella enteritidis i Yersinia enterocolitica), tenen reservoris en els animals sans destinats al consum humà, des dels quals s escampen a una major varietat progressiva d aliments. Aquests patògens causen milions de casos esporàdics de malaltia amb complicacions cròniques i provoquen brots epidèmics a regions i nacions (Tauxe, 1997). Cada any s estima que hi ha als Estats Units d Amèrica entre 800.000 i 4 milions de casos de salmonel·losi, dels quals 500 són mortals (Glynn et al., 1998). Cal una millor vigilància que combini la identificació de les subtipologies dels microorganismes, la multicol·laboració en la recerca (Tauxe, 1997) i que la FAO (Organització per a l Agricultura i l Alimentació), que és la principal agència de les Nacions Unides amb la funció de vigilar per la qualitat i la seguretat alimentàries, assoleixi un paper estandarditzador en aquests assumptes (Orriss, 1997). La millora del coneixement de com i per què un agent patogen persisteix en un reservori animal hi pot contribuir decissivament. Antigament la prevenció d aquestes malalties consistia a aturar la contaminació fecal animal del menjar dels humans. En el futur les mesures de control han d exercir-se també en el menjar i
l aigua que prenen els animals de consum humà (Tauxe, 1997). L obtenció d aigua potable per al consum humà mitjançant un ús racional dels avenços tecnològics i una educació social que miri amb més cura els aspectes de la prevenció de diarrees especialment en els infants, són tasques prioritàries a escala mundial. La malària (el paludisme) El paludisme és una malaltia que ha afectat la humanitat durant mil·lenis i continuarà fent-ho avui dia. És un problema important en països d economia poc desenvolupada (300 milions de casos i d un a dos milions de morts per any) i una complicació potencialment fatal per als qui viatgen als tròpics (Krogstad, 1997). Juntament amb la sida i la tuberculosi, els casos de paludisme per 100. 000 habitants en els països del món en desenvolupament es presenten com indicadors parcials de l estat de salut poblacional (PNUD, 1997). La malària reapareix als anys noranta de manera endèmica a l Amèrica del Sud. Durant els anys setanta es van assolir taxes baixes d aquesta malaltia, però després li ha seguit un creixement geomètric. L Equador és l únic país d aquell subcontinent que presenta una reducció de l aparició de nous casos encara que és alhora l únic que ha continuat utilitzant el DDT per aturar el mosquit vector. El control global de la malària després de la prohibició de l ús del DDT queda pendent d una profunda revisió a escala mundial (Roberts et al., 1997). Una de les conseqüències de l escalfament progressiu de la Terra per l efecte hivernacle pot ser l augment de la transmissió de la malària en augmentar la facilitat de transmissió de la seva forma vivax a través de l Anopheles maculipensis: petits increments de calor en temperatures relativa-
258 R. ABÓS I HERRÀNDIZ
ment baixes poden augmentar el risc de transmissió substancialment. Això és important donat que les comunitats humanes més vulnerables, les pitjor protegides pels serveis de salut i que viuen en llocs de transmissió erràtica o absent de la malària, tenen el risc incrementat de futurs brots. Les àrees considerades de transmissió estable poden veure s poc afectades per l augment de temperatura (Lindsay, 1996). En qualsevol cas, els reptes de la progressió de la malària al Sud-Est Asiàtic i l extensió mundial de la resistència als fàrmacs antipalúdics són importants i suposaran en el futur un camp preparat per rebre avenços significatius. Com que la malària no produeix una resposta immunitària clàssica, no es té cap garantia que la seva resposta humoral o cel·lular als antígens específics protegeixin contra la infecció. A més, l extensa diversitat d antígens que produeix dificulta la troballa d una vacuna efectiva (Krogstad, 1997). La infecció pels virus de l hepatitis Seguint amb les malalties d abast mundial, l hepatitis viral està extensament present en el món i la seva gravetat oscil·la molt, en funció del virus, de la seva tipologia, de l òrgan i de l hoste afectats. Aquesta gravetat pot ser molt variada perquè pot anar des de l absolut silenci (manifestacions subclíniques), pot passar a formes poc agressives o molt agressives (hepatitis fulminant), pot acabar eliminant la funció biològica del fetge (cirrosi hepàtica) o generar un càncer (Acorn et al., 1995). Hi ha diversos tipus d hepatitis. L hepatitis per virus D, té relació directa amb la del tipus B (Robinson, 1997). La forma E de les hepatitis és molt diferent de la C, com la B ho és de l A (Lemon i Brown, 1997). Per entendre l abast i la importància d aquest conjunt de malalties, que es transme-
ten pels fluïds corporals (Acorn et al., 1995), només cal veure n les xifres. Únicament l hepatitis tipus B ha infectat més de 2.000 milions de persones, de les quals, 350 milions són portadores cròniques del virus transmissor (Kane, 1995); el 75 % dels infectats viuen a l Àsia i van adquirir la malaltia en néixer (New Engl. J. Med. , 1998), i un milió de persones moren anualment per seqüeles agudes o cròniques d aquest tipus d hepatitis (Kane, 1995). L agent etiològic de l hepatitis B és un petit virus DNA hepatotròpic que només infecta humans i aquests constitueixen l únic reservori conegut del virus (Robinson, 1997). El futur tècnic de la lluita contra aquesta infecció té dues estratègies vigents. En primer lloc desenvolupar i estendre la vacunació, que en el cas de l hepatitis B és considerada molt efectiva, i en segon lloc, aturar el dany cel·lular que produeixen aquests virus al fetge. L absència d una resposta immunitària protectora i definida després de la infecció complica la perspectiva del desenvolupament d una vacuna (Lemon i Brown, 1997). En una escala més global, cal resoldre el tema de la transmissió d aquesta infecció en les transfusions de sang, que especialment a l Amèrica Central continua sense estar resolt, malgrat l esforç realitzat pels respectius sistemes sanitaris (Schumis et al., 1998). A tall d apunt d aquesta infecció, cal citar una estranya i encara poc explorada relació entre virus i càncer. Aquesta relació ha estat identificada arran de la contaminació de diversos cultius i del comportament oncogènic de partícules víriques en animals de laboratori (Stenton, 1998). La tuberculosi Curiosament, a l altra banda de l hepatitis, i en matèria de curació, hi trobem la tuberculosi. Aquesta malaltia infecciosa, present als informes del Programa de les
LES INFECCIONS DEL FUTUR 259
Nacions Unides per al Desenvolupament (PNUD, 1997) i que és perfectament tractable i guarible, continua suposant un gran repte per a l OMS (Snider, 1998) i per als governs dels països afectats, que veuen com en la dècada dels anys noranta fins a vuitantavuit milions de persones han estat víctimes d aquesta malaltia. Si entenem la tuberculosi com a zoonosi, fet que afegeix una altra dificultat perquè cal controlar els animals (Cosivi et al., 1998), i li afegim el fenomen creixent de la resistència microbiana als tuberculostàtics, podem adonar-nos del futur d aquesta malaltia. Entre els pacients que no tenen història prèvia de tractament d aquesta malaltia una mediana del 9,9 % (rang entre 2 % i 41 %) de soques de Mycobacterium tuberculosis són resistents com a mínim a un fàrmac; entre els que sí tenen història prèvia de tractament el rang oscil·la entre el 5,3 % i el 100 % (Pablos et al., 1998). La resistència a aquesta malaltia és present a tots els països i regions del món, però la creixent pandèmia de la sida, la transmissió de soques resistents de persona a persona, una pràctica mèdica desprotocol·litzada i el mal compliment dels règims terapèutics per part dels malalts dibuixen el quadre d un futur força complicat i dels punts de major interès en el futur. Les dues darreres circumstàncies tenen relativament fàcil el seu acompliment. Més difícil és tractar amb la resistència antibiòtica dels microorganismes com veurem més avall. Tres families de virus: els filovirus, els flavivirus i els lentivirus La història de la virologia abasta la totalitat de la història humana documentada i per això els virus posseixen el privilegi de ser els responsables de les malalties humanes més antigues conegudes (la ràbia i la pòlio), de les més noves (la sida) (Tyler i Fields, 1997) i dels comportaments biològics més especials.
Els filovirus són els agents de la febre hemorràgica que poden causar mortalitat entre un 22 % i un 88 % de la gent afectada (Feldmann, 1996). Són virus RNA anomenats de diverses maneres: Marburg i Èbola, més coneguts, i Lassa, Machupo i Junin, més rars. El virus de Marburg va ser aïllat en un brot europeu al 1967 i l Èbola va emergir el 1976 en un brot simultani al sud del Sudan i al nord del Zaire, reapareixent a Kikwit el 1995. Sembla ser que el contacte personapersona és el vehicle de transmissió, però el reservori d aquest agent viral, i altres característiques, romanen en el desconeixement. La darrera onada de la infecció de l Èbola per l Àfrica ha permès comprovar l enorme agressivitat d aquesta malaltia tramesa per sang, que pot fer-se endèmica en algunes parts del món i que en d altres causa brots (Peters, 1997). La família dels flavivirus inclou seixanta-set virus, dels quals vint-i-nou produeixen malaltia als humans. La majoria es transmeten per mosquits o paparres i d altres són infeccions zoonòtiques. És ben cert que cap d elles és transmissible directament de persona a persona. En aquest capítol queden incloses la febre groga i el dengue. En relació a aquesta primera, fou descrita l any 1688 i es constituí en un dels gran flagells de la humanitat. El 1927 se n aïllà el virus i, malgrat que l any 1934 aparegué una vacuna efectiva que en reduí la importància, avui dia segueix provocant epidèmies d impacte devastador, especialment al continent africà. La febre groga es caracteritza per tenir una ecologia complexa, que inclou primats i diferents mosquits selvàtics. Pel que fa al dengue, comunicat per primera vegada el 1780, la malaltia continua essent un problema important de salut i una amenaça potencial (Tyler, 1997; Monath, 1997). Els lentivirus tenen una història peculiar. Fa una mica més de cinquanta anys
260 R. ABÓS I HERRÀNDIZ
van emergir dues epidèmies de malaltia als pulmons i al sistema nerviós central anomenades Maedi i Visna, respectivament, en poblacions ovines d Islàndia. En aquell moment es va poder demostrar l existència de transmissibilitat i d un període perllongat d incubació, que defineixen les infeccions lentes en els humans. El descobriment que la sida és una infecció lenta causada pel VIH, que està relacionat, si bé de forma distant, amb els agents del Maedi i Visna, i en darrer cas la similitud de la seqüència d algun virus de la immunodeficiència simiana amb els VIH-1 i VIH-2, planteja la possibilitat que els lentivirus humans tinguin un origen relativament recent i zoonòtic, d un hoste primat a poblacions humanes (Haase, 1997). Malaltia mental: neurodegeneració i prions És possible que en un futur proper es faci més clara la relació entre la malaltia infecciosa i la mental (McSweegan, 1998). El 1982 Pursiner va proposar el nom de prió per a l agent responsable d un grup de transtorns degeneratius, progressius i crònics del sistema nerviós central, causats per un agent transmissible amb propietats biològiques poc convencionals. Aquest tipus de malaltia inclou el Kuru, la malaltia de Creutzfeldt-Jakob, l encefalopatia espongiforme bovina i l encefalopatia d ungulats exòtics. El terme prió va ser elegit per destacar la hipòtesi que l agent causal de les malalties neurodegeneratives eren proteïnes infeccioses que es distingien de qualsevol partícula vírica per l afinitat mostrada a l àcid nucleic (Tyler, 1997). Les malalties neurològiques, com la de Creuftzfeld-Jakob poden tenir una transmissió sanguínia, a través de productes de la sang, com també per trasplantament de còrnees infectades, empelts de duramàter6 i
l ús d instruments neuroquirúrgics o d elèctrodes estereotàxics profunds contaminats (Tyler, 1997). Aquesta circumstància ha fet que el govern canadenc hagués de revisar la seva classificació de les malalties per millorar les estadístiques de mortalitat (Stratton, 1997). ELS SISTEMES DE SALUT PER AL SEGLE XXI Arribats a aquest punt sembla interessant donar un cop d ull als sistemes de salut del món. La majoria d aquestes organitzacions entren al segle XXI en plena crisi. I així ho fan per l efecte combinat de la reducció dels pressupostos destinats a sanitat, l increment de les despeses destinades a aquesta partida, l augment de la pobresa i la desigualdat d accés als serveis de salut de llurs poblacions, fins i tot en els països més florents. El vell objectiu d augmentar la salut a tota la població sota l estratègia de Salut per a tothom al 2000, i especialment als més necessitats, ha donat pas a lliurar tecnologia mèdica a qui pot pagar-la (Seventh Consultative Committee, 1997). Hi ha una necessitat imperiosa d obtenir uns criteris consistents, coherents i sense ambigüitats dels principis per organitzar els sistemes de salut dels països. El gran repte per al segle XXI és fer dels sistemes de salut vehicles globals de servei al benestar de la humanitat (Seventh Consultative Committee, 1997), en un món cada cop més interdependent (Yach i Bettcher, 1988). La institució que ha de facilitar i defensar més el dret a la protecció de la salut és l OMS, tot modificant substancialment la 6. Duramàter: La més externa i gruixuda de les tres membranes meníngees que envolten l encèfal i la medul·la. CASASSAS, O. (dir. ) (1990) Diccionari enciclopèdic de medicina. Acadèmia de ciències mèdiques de Catalunya i Balears; Enciclopèdia Catalana, pàg. 451-452.
LES INFECCIONS DEL FUTUR 261
seva estructura i redissenyant un nou procés a l esguard de la nova i vigent direcció (Godlee, 1997). Caldrà també revisar el conjunt de regulacions internacionals referents a la salut, perquè sovint el control global de les malalties infeccioses comporta posar molta atenció en el dret internacional vigent que governa les nacions (Fidler, 1996). Vacunes i infeccions vacunables Segons les troballes arqueològiques, la pràctica del que entenem per vacunació pot datar-se d almenys sis-cents aC, en procesos semblants a la variolizació. El desenvolupament de les vacunes ha suposat un gran avenç tecnològic i sanitari, però el percentatge de nens totalment vacunats al món en aquests moments és baix, fins i tot quan el cost és assequible. En qualsevol cas, cal dir que el ritme d aparició de nous brots i les seqüeles de les malalties víriques i bacterianes estan disminuint significativament i ho continuaran fent. L eradicació de la verola és l unic exemple d una guerra guanyada als microorganismes (Walson, 1997). Pel que fa a la resta de malalties vacunables, la situació és lluny d estar controlada. Un exemple: el 1995 només el 38 % dels nens del centre d Àfrica estaven totalment vacunats (Cutts i Steinglass, 1998). La tecnologia de les vacunes està força desenvolupada, però també cal dir que aquests productes no ho són tot. La literatura les relaciona tangencialment amb diverses malalties: la mort sobtada del lactant, l asma pediàtrica, l autisme, la malaltia inflamatòria del budell i el dany cerebral persistent (Jefferson, 1998). A més, alguns brots epidèmics suggereixen que la transmissió de certes malalties pot persistir en determinats entorns malgrat el desplegament apropiat de l estratègia de lluita contra la malaltia (Davis, 1987). El 1990 la Conferència mundial pels nens
del món va establir l objectiu de vacunar el 90 % dels nens del món contra el xarampió. Malgrat això, un milió d infants moren anualment víctimes d aquesta malaltia, una entitat infecciosa vacunable, dels quals el 50 % dels casos estan al continent africà. L eradicació d aquesta malaltia és teòricament possible perquè no se n coneix a hores d ara cap reservori animal i la vacunació és efectiva (Cutts i Steinglass, 1998). Una variant de l estratègia de la lluita contra aquesta entitat utilitzada a la regió de les Amèriques pot permetre l eradicació d aquesta malaltia, de la mateixa manera que es va fer amb la verola (Morb. Mortal. Wkly. Rep., 1997a). La lluita contra les infeccions i la resistència antibiòtica El cos humà adult conté de l ordre de 1014 cèl·lules, però només un 10 % d aquestes tenen procedència humana. La resta són bacteris (en major proporció colonitzant el budell gros), fongs, protozous, cucs i fins i tot paràsits que constitueixen la nostra flora autòctona i viuen amb nosaltres en aparent equilibri (Hart, 1998). La presa d un antibiòtic altera aquest equilibri. Un cop filtrat pel ronyó, el fetge o la pell, aquest producte pot acabar excretat en la seva forma activa i sortir a l exterior del cos alterant l entorn biològic més proper. Un recent estudi ha demostrat que els antibiòtics estan sobreutilitzats i malutilitzats en medicina, veterinària, ramaderia, aqüicultura i agricultura. Un ús més racional i restrictiu dels antibiòtics, una major educació dels usuaris a tots els nivells afectats, el desenvolupament de sistemes de vigilància de resistències i l eliminació d alguns antibiòtics que generen interferències entre aquells sectors, són possibles sortides per a un futur més plàcid (Hart, 1998). Tècnicament es confia que s aniran trobant més
262 R. ABÓS I HERRÀNDIZ
fórmules antibiòtiques que vencin les infeccions, encara que un cop dins l organisme els bacteris, per exemple, han demostrat a bastament que poden ultrapassar les barreres antibiòtiques de manera vertical (de generació en generació microbiana), de manera horitzontal (entre espècies i gèneres diversos), i un cop eliminats a l exterior del cos no reconeixen fronteres internacionals. Els tractaments futurs de les infeccions Si bé és cert que queda molt per conèixer en el camp de la lluita contra les infeccions, hi ha diverses possibilitats futures per al seu tractament. Totes elles tenen dos aspectes en comú: els cal un bon desenvolupament de recerca bàsica i una bona dosi d aplicabilitat. Al segle XIX es va descobrir que el sèrum immunitzat era útil per al tractament de les malalties infeccioses. Aquesta estratègia va ser abandonada als anys quaranta a causa de la toxicitat del sèrum total heteròleg i de l aparició de l antibioticoteràpia. El desenvolupament de la tecnologia d anticossos monoclonals a finals del segle XX ha fet reobrir el debat de l ús d anticossos com a teràpia antiinfecciosa. Els principals avantatges dels anticossos són la seva versatilitat, la baixa toxicitat, l especificitat de patogen, l increment de la funció immunitària i una favorable farmacocinètica. En contra, tenen el seu elevat cost d obtenció, una utilitat limitada en cas d infeccions mixtes i la necessitat d una molt acurada diagnosi microbiològica (Casadevall, 1996). Una altra possible i futura estratègia de recerca en vacunes es coneix col·loquialment com les vacunes tipus DNA. Consisteixen en la introducció en els teixits d un DNA plasmídic portador d un antigen que sensibilitza les cèl·lules receptores i crea resposta immunitària. Els principals avantatges d aquest tipus de vacunes són la seva facilitat d utilit-
zació, l ús de tecnologia genèrica, la simplicitat i l estabilitat biològica i química. En contra, tenen el seu incipient desenvolupament tècnic (Whalen, 1996). Des de fa temps s està desenvolupant un programa per investigar l activitat terapèutica de productes naturals que consisteix en la recollida de plantes de regions tropicals i subtropicals, sota els principis del tractat de la biodiversitat. Aquest mecanisme organitzatiu està emparentat amb el sector privat (Mays i Mazan, 1996). Genètica La recerca genètica està immersa en un profund canvi. El Projecte del Genoma Humà està produint una explosió d informació (Savill, 1997; Khoury i Dorman, 1998) que encara no és digerible i, per tant, tampoc convertida en aprofitament pel coneixement humà. És possible que estiguem a les portes de trobar mecanismes fisiopatològics en moltes malalties que patim (Savill, 1997) perquè gairebé cada dia es decobreixen variacions de gens que afecten, entre altres, les malalties infeccioses (Khoury i Dorman, 1998). El coneixement de la constitució del genoma dels diferents microorganismes, patògens o no (Kunst et al., 1997), i dels mecanismes generadors de virulència bacteriana (Mecsas i Strauss, 1996), són sortides molt importants per conèixer el com de la propagació de les malalties. No cal dir que tot plegat suposa una gran inversió d esforços tècnics i de recursos humans i econòmics (Kunst et al., 1997). ON TENIM POSAT EL FUTUR? 1) Cal millorar les condicions de vida dels grups menys afavorits fins ara i especialment cal fer màxima la taxa global d infants totalment vacunats.
LES INFECCIONS DEL FUTUR 263
2) El futur de la recerca en infeccions ha de tenir quatre característiques. Ha de ser multicèntrica, transnacional, pluridisciplinària i ha d estar coordinada (Spitzer, 1996). 3) Cal que l estratègia per a una millor terapèutica s orienti, de manera unificada, en tres direccions: en la causalitat més que no pas en l efecte que produeixen les malalties (Savill, 1997), en l augment de l especificitat d acció dels fàrmacs i en educar les poblacions per a l ús racional dels fàrmacs. 4) Cal assegurar la no-proliferació i l eliminació de qualsevol tipus d arma biològica, química (o nuclear), sigui o no creada amb finalitats dissuasives. 5) El desenvolupament de la tecnologia i de la normativa ètica han d avançar en paral·lel (Savill, 1997). AGRAÏMENTS L autor del treball vol fer públic l agraïment a les següents persones (citades per ordre alfabètic), per haver llegit, revisat, comentat i esmenat la darrera versió d aquest capítol: Dra. Elisa Berdalet i Andrés, Dr. Jaume Canela i Soler, Dra. Marta Estrada i Miyares, Dra. Cèlia Marrasé i Peña, Dr. Jaume-Enric Ollé i Goig i el Sr. Josep-Vincenç Sampietro i Latre.
BIBLIOGRAFIA ACORN, C. J.; C. C. MILLAR; S. K. HOFFMAN (1995). «Optometry & Vision». Sci., núm. 72, vol. 10, pàg. 763-769. APRIL, K.; R. KOSTER; M. G. KOCK (1997). «Welweite HIVAusbreitung-Aspekte und Dynamik einer Tardivepidemie». Schweiz. Med. Wschr., núm. 127, vol. 45, pàg. 1853-1861. B. WORLD HEALTH ORGAN. (1995). «Integrated management of the sick child». B. World Health Organ., núm. 73, vol. 6, pàg. 735-740. BENEDICTOW, O. J. (1987). «Morbidity in historical plague epidemics». Popul. Stud. núm. 41, pàg. 401-431. CAIRNS, J. J.; J. R. BIDWELL (1996). «The modification of
human society by natural systems: discontinuities caused by the exploitation of endemic species and the introduction of exotics». Environ. Health Persp., núm. 104, vol. 11, pàg. 1142-1145. CASADEVALL, A. (1996). «Antibody-based therapies for emerging infectious diseases». Emerg. Infect. Dis., núm. 2, vol. 3, pàg. 200-208. CAVALIERI, L. F.; H. KOCAK (1995). «Chaos: a potential problem in the biological control of insect pests». Math. Biosci., núm. 127, vol. 1, pàg. 1-17. CLELAND, J. (1996). «Population growth in the 21st century: cause for crisis or celebration?». Trop. Med. & Int. health, núm. 1, vol. 1, pàg. 15-26. COSIVI, O.; J. M. GRANGE; C. J. DABORN; M. C. RAVIGLIONE; T. FUJIKURA; D. COUSIN; R. A. ROBINSON; H. F. HUCHZERMEYER; I. DE KANTOR; F. X. MESLIN (1998). «Zoonotic tuberculosis due to Mycobacterium bovis in developing countries». Emerg. Infect. Dis., núm. 4, vol. 1, pàg. 59-70. CREEP, R. O. (1998). «Whither the global population problems». Biochem. Pharmacol., núm 55, vol. 4, pàg. 383-386. CUTTS, F. T.; R. STEINGLASS (1998). «Should measles be erradicated?» Brit. Med. J., núm. 316, vol. 7, pàg. 765-767. DAVIS, R. M.; E. D. WHITMAN; W. A. ORENSTEIN; S. R. PREBLUD; L. E. MARKOWITZ; A. R. HINMAN (1987). «A persistent outbreak of measles despite appropiate prevention and control measures». Am. J. Epidemiol., núm. 126, vol. 3, pàg. 438-449. DONOWITZ, G. R.; G. L. MANDELL (1997). «Neumonia aguda». A: MANDELL, G. L., J. E. BENNETT, R. DOLIN. Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana, pàg. 682-702. EPSTEIN, P. R. (1995). «Emerging diseases and ecosystem instability: new threats to public health». Am. J. Public Health, núm. 85, vol. 2, pàg. 168-172. FELDMANN, H.; W. SLENCZKA; H. D. KLENK (1996). «Emerging and reemerging of filoviruses». Arch. Virol. núm. 11, (suplement), pàg. 77-100. FIDLER, D. P. (1996). «Globalization, international law, and emerging infectious diseases». Emerg. Infect. Dis., núm 2, vol. 2, pàg. 77-84. FISHMAN, J. A.; R. H. RUBIN (1998). «Infection in organtransplant recipients». New Engl. J. Med., núm. 338, vol. 24, pàg. 1741-1751. FOSTER, E. M. (1997). Historical overview of key issues in food safety. Emerg. Infect. Dis., núm. 3, vol. 4, pàg. 481-482. FOWLER, M. G., S. L. MELNICK; B. J. MATHIESON (Efficacy trials branch, division of AIDS, National Institute of Allergy and Infectious Diseases, National Institutes of Health, Bethesda, Maryland, USA) (1997). «Women and HIV. Epidemiology and global overview». Obstet. Gyn. Clin. N. Am., núm. 24, vol. 4, pàg. 705-729.
264 R. ABÓS I HERRÀNDIZ GLYNN, M. K.; C. BOPP; W. DEWITT; P. DABNEY; M. MOKHTAR; F. J. ANGULO (1998). «Emergence of multidrugresistant Salmonella enterica serotype typhimurium DT104 infections in the United States». New Engl. J. Med., núm. 338, vol. 19, pàg. 1333-1338. GODLEE, F. (1997). «WHO reform and global health». Brit. Med. J., núm. 314, vol. 7073, pàg. 1359-1360. GWALTNEY, J. M. H. (1997). «Infecciones pleuropulmonares y bronquiales». A: MANDELL, G. L., J. E. BENNETT; R. DOLIN. Enfermedades infecciosas. Principios y prácticas. 4a edició. Editorial Panamericana, pàg. 1298-1308. HAASE, A. T. (1997). «Lentivirus: aspectos generales». A: MANDELL, G. L.; J. E. BENNETT; R. DOLIN, Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana, pàg. 1777-1783. HAMPSON, A. W. (1997). «Surveillance for pandemic influenza». J. Infect. Dis., núm. 176, vol. (suplement 1: S), pàg. 8-13. HANSEN, M. E.; D. D. MCINTIRE (1996). «HIV transmission during invasive radiology procedures: estimated based on computer modeling «Am. J. Roentgenol., núm. 166, vol. 2, pàg. 263-267. HART, C. A. (1998). «Antibiotic resistance: an increasing problem?». Brit. Med. J., núm. 316, pàg. 1255-1256. HIRSCHEL, B.; P. FRANCIOLI (1998). «Progress and problems in the fight against AIDS». New Engl. J. Med., núm. 338, vol. 13, pàg. 906-908. JEFFERSON, T. (1998). «Vaccination and its adverse effects: real or perceived». Brit. Med. J., núm. 317, pàg. 159-160. JOURAND, E. (1998). «Més d un milió de sudanesos esperen la mort per desnutrició». Avui, dimarts 21 de juliol de 1998, secció «Món», pàg. 9. KANE, M. (1995). «Global programme for control of hepatitis B infection». Vaccine, núm. 13, Suppl. 1, pàg. S47-49. KAUFMANN, A. F.; M. I. MELTZER; G. P. SCHMID (1997). «The economic impact of a bioterrorist attack: are prevention and postattack intervention program justifiable?». Emerg. Infect. Dis., núm. 3, vol. 2, pàg. 83-94. KHAN, J. O.; B. D. WALKER (1998). «Acute human inmunodeficiency virus type I infection». New Engl. J. Med., núm. 339, vol. 1, pàg. 33-39. KHOURY, M. J.; J. S. DORMAN (1998). «The human genome epidemiology network». Am. J. Epidemiol., núm. 148, vol. 1, pàg. 1-3. KROGSTAD, D. J. (1997). «Especies de plasmodio (Paludismo)». A: MANDELL, G. L.; J. E. BENNETT; R. DOLIN. Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana, pàg. 2710-2723. KUMP, L. R. (1996). «The physiology of the planet». Nature, núm. 381, vol. 6578, pàg. 111-112. KUNST, F.; N. OGASAWARA; I. MOSZER; A. M. ALBERTINI; G. ALLONI; V. AZEVEDO; M. G. BERTER; P. BESSIERES; A.
BOLOTIN; S. BORCHERT; R. BORRISS; L. BOURSIER; A. BRANS; M. BRAUN; S. C. BRIGNELL; S. BRON; S. BROUILLET; C. V. BRUSCHI; B. CALDWELL; V.CAPUANO; N. M. CARTE; S. K. CHOI; J. J. CODANI; I. F. CONNERTON; A. DANCHIN et al. (1997). «The complete genome sequence of the gram positive bacterium Bacillus subtilis». Nature, núm. 390, vol. 6657, pàg. 249-256. LEIPE, D. D. (1996). «Biodiversity, genomes, and DNA sequence databases». Curr. Opin. Gen. & Dev., núm. 6, vol. 6, pàg. 686-691. LEMON, S. M.; E. A. BROWN, (1997). «Virus de la hepatitis C». A: MANDELL, G. L.; J. E. BENNETT; R. DOLIN, Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana, pàg. 1653-1666. LINDSAY, S. W.; M. H. BIRLEY (1996). «Climate change and malaria transmission». Ann. Trop. Med. & Parasit., núm. 90, vol. 6, pàg. 573-588. LORETTI, A.; Y. TEGEGN (1996). «Disasters in Africa: old and new hazards and growing vulnerability». World Health Stat. Q., núm. 59, vol. 3-4, pàg. 179184. LOVELOCK, J. E. (1995). «New statements on the Gaia theory». Microbiologia, núm. 11, vol. 3, pàg. 295-304. MANDELL, G. L.; J. E. BENNETT; R. DOLIN (1997). Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana, pàg. XXIII XXXI. MARTIN, P. M.; C. COMBES (1996). «Emerging infectious disease and the depopulation of French Polynesia in the 19th century». Emerg. Infect. Dis., núm. 2, vol. 4, pàg. 359-361. MAYS, T. D.; K. D. MAZAN (1996). «Legal issues in sharing the benefits of biodiversity prospecting». J. Ethno. Pharmacol., núm. 51, vol. 1-3, pàg. 93-102. MCSWEEGAN, E. (1998). «Infectious diseases and mental illness: is there a link?». Emerg. Infect. Dis., núm. 4, vol. 1, pàg. 123-124. MECSAS, J. J.; E. J. STRAUSS (1996). «Molecular mechanisms of bacterial virulence: type III secretion and pathogenicity islands». Emerg. Infect. Dis., núm. 2, vol. 4, pàg. 270-288. MESLIN, F. X. (1997a). «Global aspects of emerging and potential zoonoses: a WHO perspective». Emerg. Infect. Disease, núm. 3, vol. 2, pàg. 223-228. (1997b). «Zoonoses emergentes et reemegents. Menaces locales et planetaires». Med. Trop., núm. 57, vol. 3 (suplement), pàg. 7-9. MILES, S. A. (1997). «HIV infection and AIDS: new biology, therapeutic advances, and clinical implications». J. Acq. Immun. Def. Synd. & Hum. Retr. (introd. ), núm. 16, (suplement 1: S1-2). MONATH, T. P. (1997). «Flavivirus (fiebre amarilla, dengue, fiebre dengue hemorrágico, encefalitis japonesa. Encefalitis de St. Louis, encefalitis transmitida por garrapatas». A: MANDELL, G. L., J. E. BENNETT; R. DOLIN; Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana, pàg. 1643-1652.
LES INFECCIONS DEL FUTUR 265 MORB. MORTAL. WKLY. REP. (1998). «Public Health Task Force recommendations for the use of antiretroviral drugs in pregnant women with HIV-1 for maternal health and for reducing perinatal HIV-1 transmission in the United States». Centers for Disease Control and Prevention. Morb. Mortal. Wkly. Rep., núm. 47, (gener) vol. RR-2, pàg. 1-30. MORB. MORTAL. WKLY. REP. (1997a). «Progress toward global measles control and elimination». Centers for Disease Control and Prevention. Morb. Mortal. Wkly. Rep., núm. 46, (setembre) vol. 38, pàg. 893-897. MORB. MORTAL. WKLY. REP. (1997b). «Guidelines for prevention of nosocomial pneumonia». Centers for Disease Control and Prevention. Morb. Mortal. Wkly. Rep., núm. 46, (gener) vol. RR-1, pàg. 1-79. MOUCHET, J.; GIACOMINI, T.; JULVEZ, J. (1995). «La diffusion anthropique des arthropodes vecteurs de maladie dans le monde». Santé, núm. 5, vol. 5, pàg. 293-298. MULHALL, B. P. (1996). «Sex and travel: studies of sexual behaviour, disease and health promotion in international travellers: a global review». Int. J. STD & AIDS, núm. 7, vol. 7, pàg. 455-465. MURRAY C. J. L.; A. J. LOPEZ, (World Health Organization). (1996). The Global Burden of Disease: a comprehensive assessment of mortality and disability from diseases, injuries and risk factors in 1990 and projected to 2020. Harvard School of Public Health; World Health Organization i World Bank: Harvard University Press, pàg. 1-41. MURRAY, C. J.; A. D. LOPEZ (1997). «Alternative projections of mortality and disability by cause 19902020: Global Burden of Disease Study». Lancet, núm. 349, vol. 9064, pàg. 1498-1504. NEW ENGL. J. MED. (editorial). (1998). «Treatment of chronic hepatitis B infection». New Engl. J. Med., núm. 339, vol. 2, pàg. 114-115. OLSON, P. E.; W. D. BONE; R. C. LA BARRE; C. R. MARTIN; G. C. UTZ; L. K. MILLER; L. GRESHAM (1995). «Coccidiodomycosis in California: regional outbreak, global diagnostic challenge». Mil. Med., núm. 160, vol 6, pàg. 304-308. ORRISS, G. D. (1997). «Animal diseases of public health importance». Emerg. Infect. Dis., núm. 3, vol. 4, pàg. 497-502. PABLOS, A.; M. C. RAVIGLIUONE; A. LASZLO; N. BINKIN; H. L. RIEDER; F. BUSTREO; D. L. COHN; S. B. CATHERINA; L. VAN WEEZENBEEK; S. JAE; P. CHAULET, (1998). «Global surveillance for antituberculosis-drug resistance». New Engl. J. Med., núm. 338, vol. 23, pàg. 1641-1649. PEARCE, N. (1996). «Traditional epidemiology, modern epidemiology and public health». Am. J. Public Health, núm. 86, vol. 5, pàg. 678-682. PERKINS, B. A.; J. M. FLOOD; R. DANILA; R. C. HOLMAN; A. L. REINGOLD; L. A. KLUG; M. VIRATA; P. R. CIESLAK; S. R. ZAKI; R. W. PINNER; R. F. KHABBAZ; THE UNEX-
PLAINED DEATHS WORKING GROUP. (1996). «Unexplained deaths due to possibly infectious causes in the United States: defining the problem and designing surveillance and laboratory approaches». Emerg. Infect. Dis., núm. 2, vol. 1, pàg. 47-53. PETERS, C. J. (1997). «Fiebres hemorrágicas por virus Marburg y Ebola». A: G. L. MANDELL; J. E. BENNETT; R. DOLIN. Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana, pàg. 1731-1734. PIOT, P.; M. H. MERSON (1997). «Síndrome de Immunodeficiència Adquirida (Sida)». A: G. L. MANDELL; J. E. BENNETT; R. DOLIN. Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana, pàg. 1298-1308. PNUD (Programa de las Naciones Unidas para el Desarrollo). (1997). «Informe sobre desarrollo humano». Programa de las Naciones Unidas para el Desarrollo, pàg. 193. QUINN, T. C. (1995). «The epidemiology of the acquired immunodeficiency syndrome in the 1990s». Emerg. Med. Cli. N. Am., núm. 13, vol. 1, pàg. 1-25. RADOVANOVICH, Z. «On the origin of mass casualty in Kosovo, Yugoslavia, in 1990». Eur. J. Epidemiol., núm. 12, vol. 1, pàg. 101-113. REINGOLD, A. L. (1998). «Outbreak investigations: a perspective». Emerg. Infect. Dis., núm. 4, vol. 1, pàg. 21-27. ROBERTS, D. R.; L. L. LAUGHLIN; P. HSHEIH; L. J. LEGTERS (1997). «DDT, global strategies, and a malaria control crisis in south America». Emerg. Infect. Dis., núm. 3, vol. 3, pàg. 295-302. ROBINSON, W. S. (1997). «Hepadnaviridae: virus de la hepatitis B y virus de la hepatitis C». A: MANDELL, G. L., J. E. BENNETT; R. DOLIN. Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana. Pàg. 1576-1613. RUSSELL, P. K. (1997). «Biologic terrorisme: responding to the threat». Emerg. Infect. Dis., núm. 3, vol. 2, pàg. 203-204. SAVILL, J. (1997). «Editorial». Brit. Med. J., núm. 314, vol. 7073, pàg. 43-45. SCHUMIS, G. A.; F. ZICKER; F. PINHERO; D. BRANDLING-BENNET (1998). «Risk for transfusion-transmitted infectious diseases in Central and South America». Emerg. Infect. Dis., núm. 4, vol. 1, pàg. 5-11. SEVENTH CONSULTATIVE COMMITTEE ON PRIMARY HEALTH CARE SYSTEMS FOR THE 21ST CENTURY. (1997). «Health care systems for the 21st century». Brit. Med. J., núm. 314, pàg. 1407-1409. SNIDER, D. E.; K. G. CASTRO (1998). «The global threat of drug-resistant tuberculosis». New Engl. J. Med., núm. 338, vol. 2, pàg. 1689-1690. SPITZER, W. O. (1996). «The future of epidemiology». J. Clin. Epidemiol., núm. 49, vol. 7, pàg. 705-709. STENTON, S. C. (1998). «Simian virus 40 and human malignancy». Brit. Med. J., núm. 316, pàg. 877.
266 R. ABÓS I HERRÀNDIZ STRATTON, E.; M. N. RICKETTS; P. R. GULLY (1997). «The epidemiology of Creutzfeld-Jakob disease in Canada: a review of mortlity data». Emerg. Infect. Dis. núm. 3, vol. 1, pàg. 64-64. TAUXE, R. V. (1997). «Emerging foodborne disease: an evolving public health challenge». Emerg. Infect. Dis., núm. 3, vol. 4, pàg. 425-434. TODD, E. (1997). «Epidemiology of foodborne disease: a worldwide review». World Health Stat. Q., núm. 50, vol. 1-2, pàg. 30-50. TYLER, K. l. (1997). «Enfermedades del Sistema Nervioso Central producidos por priones (enfermedades neurodegenerativas transmisibles)». A: G. L. MANDELL; J. E. BENNETT; R. DOLIN. Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana, pàg. 977-984. TYLER, K. L.; B. N. FIELDS (1997). «Introducción a los virus y las enfermedades virales». A: MANDELL, G. L.; J. E. BENNETT; R. DOLIN. Enfermedades infecciosas. Principios y prácticas. 4a ed. Editorial Panamericana. Pàg. 1470-1482. WALSON, P. D. (1997). «Paediatric clinical Pharmacology and therapeutic». A: SPEIGHT,T. M.; N. H. G. HOLFORD. Avery s drug treatment. 4th edition. Adis international, pàg. 127-171. WARREN, J. C.; A. L. MASON; G. B. SHATTUCK; H. OSGOOD; F. WOODBURY (1879). «Parallel passages on the fun-
gous theory of epidemics». A: WARREN, J. C.; A. L. MASON; G. B. SHATTUCK; H. OSGOOD; F. WOODBURY. The Boston Medical and Surgical Journal, núm. XVI, pàg. 138-140. WHALEN, R. G. (1996). «DNA vaccines for emerging infectious diseases». Emerg. Infect. Dis., núm. 2, vol. 3, pàg. 168-175. WHITING, J. F.; S. J. ROSSI; D. W. HANTO (1997). «Infectious complications after OKT3 induction in liver transplantation». Liv. Transp. & Sur., núm. 3, vol. 6, pàg. 563-570. WILLIAMS, R. J.; N. J. COX; H. L. REGNERY; D. L. NOAH; A. S. KHAN; J. M. MILLER; G. B. COPLE; J. S. ICE; J. A. WRIGHT (1997). «Meeting the challenge of emerging pathogens: the role of the United States Air Force in global influenza surveillance». Mil. Med., núm. 162, vol. 2, pàg. 82-86. WILSON, M. E. (1995). «Travel and the emergence of infectious diseases». Emerg. Infect. Dis., núm. 1, vol. 2, pàg. 39-46. YACH, D.; D. BETTCHER (1998). «The globalization of public health: I, threats and opportunities». Am J. Public Health, núm. 88, vol. 5, pàg. 735-738. ZAKI, A. M. (1997). «Isolation of a flavivirus related to the tick-borne encephalitis complex from human cases in Saudi Arabia». Trans. Royal Soc. Trop. Med. & Hyg., núm. 91, vol. 2, pàg. 179-181.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 267-278
LA COMPRENSIÓ DE LA BIODIVERSITAT: VERS EL RENAIXEMENT DE L ECOLOGIA HUMANA JOSEP-ANTONI GARÍ School of Geography. University of Oxford. Gran Bretanya. Adreça per a la correspondència: School of Geography. University of Oxford. Oxford OX1 3TB, Gran Bretanya. Telèfon: 44-1865-271919. Fax: 44-1865-271929. Adreça electrònica: josep.gari@geography.oxford.ac.uk
INTRODUCCIÓ El terme biodiversitat, abreviació de diversitat biològica, va sorgir cap al 1985 i ha assolit preeminència en la ciència, la política i la societat civil a la dècada de 1990, especialment arran de la Convenció sobre Diversitat Biològica acordada a la Conferència de les Nacions Unides de 1992 a Rio de Janeiro. Biodiversitat és, sens dubte, un dels temes i termes més populars d aquest fi de segle i mil·leni. Proposem un recorregut dilatat i innovador a través del fenomen científic i social de la biodiversitat que ens revelarà el necessari renaixement de l ecologia humana. Pretenem evitar i en tot cas desafiar les aproximacions convencionals a la biodiversitat, massa planeres i, repetides i, molt possiblement, ja avorrides per als lectors. Desitgem explorar vessants de la biodiversitat menys ateses o valorades que ens
ofereixin una visió més global de la temàtica. Com a tasca principal volem il·lustrar la dimensió humana de la biodiversitat. És així que proposem una comprensió de la biodiversitat oberta, dinàmica i original, que es nodreix de la nostra recent investigació científica a l Amazònia i als Andes. SIGNIFICAT DE LA BIODIVERSITAT Els ecòlegs han emprat el terme diversitat durant força temps per referir-se, essencialment, a la diversitat o multiplicitat d espècies. El terme biodiversitat, però, sorgeix més recentment i encara pateix certa ambigüitat de significat. La qüestió clau és, doncs, discernir la relació, coincidència o divergència entre ambdós termes, etimològicament lligats. Nosaltres proposem i mostrem que biodiversitat és un nou concepte amb un significat original. Tot i que hi ha, evidentment,
268 J. A. GARÍ
una arrel comuna, podem argumentar una distinció clara entre els conceptes de diversitat clàssica i biodiversitat (Pielou, 1995). En particular, proposem una comprensió de la biodiversitat basada en nivells successivament integrats, que en si mateixos il·lustren l especificitat i originalitat del fenomen de la biodiversitat. Creiem que, tal vegada, aquesta comprensió de la biodiversitat contribueixi a una futura teoria de la biodiversitat. La biodiversitat com a trilogia biològica En un primer nivell, biodiversitat és la variabilitat global de la vida a la Terra, consistent en els components fonamentals de gens, espècies i ecosistemes. Aquesta trilogia de la biodiversitat ha esdevingut la definició hegemònica, gairebé ja clàssica. Està recollida, per exemple, a la mateixa Convenció sobre Diversitat Biològica de les Nacions Unides (UNO, 1992: article 2). Biodiversitat com a diversitat genètica, d espècies i d ecosistemes és la comprensió de biodiversitat més acollida, tant en àmbits científics com socials. Tot i això, és tal el pes històric i científic del concepte clàssic de diversitat, que la identificació entre biodiversitat i diversitat d espècies persisteix, en detriment de la biodiversitat genètica i d ecosistemes. El nombre d espècies es considera la millor i més il·lustrativa aproximació a la biodiversitat. Cal tan sols aproximar-se a qualsevol escrit sobre biodiversitat per observar referències, i massa vegades estimacions aleatòries, sobre el nombre d espècies existents o extingides en un lloc determinat o en el planeta Terra. És cert que el concepte d espècie és molt útil, està ben establert dins la biologia i, per tant, proporciona una bona aproximació a la biodiversitat (Wilson, 1992: pàg. 33-46). Però la preeminència del concepte d espècie en la cosmovisió de la biodiversitat limita molt la seva comprensió profunda. De fet, es
tracta d una mena d artefacte resultant de l aparentment sòlid desenvolupament de la taxonomia i de la tendència reduccionista dins les ciències al llarg del segle XX. El paper de la diversitat intraespècie, o diversitat genètica, no mereix pas negligència. Per exemple, la diversitat de poblacions, sia poblacions definides com a entitats ecològiques o genètiques, és un component tan decisiu en la biodiversitat com la diversitat d espècies (Ehrlich i Daily, 1993). A més, la variabilitat genètica de plantes cultivades pot ser molt notable, tot esdevenint un component decisiu en l evolució i expansió d aquestes espècies i, per tant, en la configuració de la biodiversitat. En general, des del punt de vista de la biologia evolutiva, és la riquesa genètica de la biosfera la base i alhora el producte més genuí de l evolució. D altra banda, la diversitat d ecosistemes i hàbitats és un component essencial dins la biodiversitat planetària. L aproximació rutinària als ecosistemes com a representants de grans biomes mundials empobreix la realitat ecosistèmica del planeta. Cada ecosistema acull una diversitat de subecosistemes i hàbitats única. En conclusió, reivindicar una biodiversitat que englobi la totalitat orgànica de la vida sense marginar la variabilitat genètica ni la riquesa d ecosistemes és prou justificat. La biodiversitat com a procés coevolutiu Un segon nivell de comprensió de la biodiversitat fa referència als processos biològics i ecològics que es produeixen als ecosistemes i a la biosfera, tot generant, estructurant, interrelacionant i dinamitzant el flux de la vida que s esdevé entre gens, espècies i ecosistemes. Aquesta dimensió de la biodiversitat recull la vessant dinàmica i evolutiva de la vida al planeta Terra. Supera, doncs, el nivell de comprensió primer, que
LA COMPRENSIÓ DE LA BIODIVERSITAT: VERS EL RENAIXEMENT DE L'ECOLOGIA HUMANA 269
és més aviat estàtic i estructural ja que està centrat en entitats com gens, poblacions, espècies, hàbitats i ecosistemes. Així doncs, la biodiversitat no és tan sols una variabilitat de gens, espècies i paisatges ecosistèmics, sinó que és un flux, procés i coevolució entre els components de la vida. Els reconeguts científics Richard Leakey i Roger Lewin, des de vessants de la biologia ben diferents, coincideixen en què la vida és dinàmica i evolutiva, i és en aquest marc que la biodiversitat està lligada i és inevitable al canvi inherent de la vida i a les condicions dinàmiques de l ambient (Leakey i Lewin, 1995). Els incomptables processos i interaccions que s esdevenen en els ecosistemes, entre les espècies, entre les poblacions i en les relacions entre els medis biòtic i abiòtic, per exemple, també conformen i alhora constitueixen la biodiversitat planetària. Com a exemple senzill que il·lustri la validesa d aquest nivell de comprensió fixemnos en els parcs zoològics convencionals. Encara que en ells trobem dotzenes d espècies diferents aplegades en una àrea relativament petita, no els podem pas considerar llocs de gran biodiversitat. I no tan sols perquè hi manqui una biodiversitat intraespècies i ecosistèmica, sinó fonamentalment perquè no hi ha cap mena de processualitat entre les espècies que els constitueixen. Hi ha organismes vius, però no hi ha el flux de vida que reivindiquem per definir la biodiversitat. Aquest flux de vida que anomenem biodiversitat no és tan sols dinàmic, sinó també específicament coevolutiu; és a dir, es caracteritza per l evolució conjunta i dialèctica dels components de la biodiversitat, des dels genomes fins a la biosfera. Conceptes clàssicament oposats com els de gen, ambient i cultura es troben de fet en dinàmica interacció i coevolució per composar la simfonia de la biodiversitat.
La biodiversitat com a pràctiques ecològiques humanes El darrer nivell de comprensió de la biodiversitat que proposem integra la particular contribució de l espècie humana en la configuració de la biodiversitat de molts ecosistemes i regions. Encara que llargament ignorada, la contribució humana a la biodiversitat ja va ser suggerida pel naturalista Charles Darwin tot just a l inici de la seva obra L origen de les espècies. Charles Darwin inicia el primer capítol d aquesta obra clàssica de la biologia amb aquestes paraules sobre la variabilitat de les espècies domesticades: «Quan observem els individus de les mateixes varietats o subvarietats de les nostres plantes cultivades i dels nostres animals domèstics des de fa més temps, un dels primers punts que ens crida l atenció és que difereixen generalment l un de l altre molt més que no pas els individus de qualsevol espècie o varietat en estat natural. Quan reflexionem sobre la vasta diversitat de les plantes cultivades i dels animals domèstics (...) ens veiem portats a concloure que aquesta major variabilitat és simplement deguda al fet que les nostres produccions domèstiques s han criat sota condicions de vida no tan uniformes com i en certa manera diferents de aquelles a què han estat exposades les espècies-mare sota la naturalesa.» (Darwin, 1859). Aquestes reflexions de Charles Darwin recullen dos fets essencials entorn del fenomen de la biodiversitat. En primer lloc, la biodiversitat lligada a les activitats humanes (animals i plantes domesticades) és molt notable i fins i tot proporcionalment més elevada que en condicions naturals no humanitzades. I, en segon lloc, aquesta biodiversitat ha sorgit de les mateixes condicions
270 J. A. GARÍ
de les pràctiques ecològiques humanes, o del que Darwin anomena les «produccions domèstiques». Hi ha per tant una producció humana de biodiversitat que, a més, no s esgota en les espècies domèstiques, sinó que abasta processos ecològics més amplis. En sintonia amb Darwin reivindiquem els humans com a productors de biodiversitat. Homo sapiens, una espècie tradicionalment oblidada en les ciències ecològiques, no és tan sols una espècie més que cal tenir en compte, sinó una espècie que amb la seva evolució cultural ha aportat una dimensió singular a la biodiversitat. L ecòleg català Ramon Margalef ens recorda que l evolució cultural és evolució (Margalef, 1994), i per tant contribueix a la dinàmica ecològica de la biosfera. D aquesta manera, les pràctiques humanes sobre els ecosistemes, les espècies i les varietats d espècies són part del fenomen de la biodiversitat en tant que interaccionen i coevolucionen amb els ecosistemes, espècies i gens. Especialment, el que es qualifica com a coneixements i pràctiques ecològiques tradicionals, pròpies de molts pobles indígenes i comunitats agrícoles i ramaderes arreu del món, té un pes considerable en la coevolució de la biodiversitat. Cal remarcar que no qualsevol pràctica humana per se és part integrant de la biodiversitat, sinó tan sols aquelles que es troben en coevolució amb la resta de components de la biodiversitat, o almenys aquelles que aporten condicions no uniformes, com més amunt indicava Charles Darwin. És una relació de coevolució el que determina el caràcter de biodiversitat dels coneixements i pràctiques ecològiques humanes. Biodiversitat i ecologia humana Com a conclusió, i tractant d unificar les tres dimensions de la biodiversitat mencionades, gosem definir biodiversitat com el
flux de vida que emergeix en la coevolució de la variabilitat de formes de vida, dels processos ecològics i evolutius que s esdevenen, i de les pràctiques ecològiques humanes que hi intervenen. La comprensió de la biodiversitat proposada suposa una perspectiva d ecologia humana sobre la biodiversitat. La dimensió antropològica de la biodiversitat està lligada a les dues altres dimensions referides. A continuació exposem dues investigacions recents pròpies que fonamenten aquesta comprensió de la biodiversitat. La primera d elles se centra en l Amazònia, en particular en les dinàmiques ecològiques dels pobles indígenes de la regió de Pastaza. La segona és una anàlisi de la biodiversitat de la quínua (Chenopodium quinoa), cultiu característic de moltes comunitats camperoles dels Andes. Es tracta, en certa manera, de casos crucials de la biodiversitat perquè il·lustren la complexitat i riquesa del fenomen de la biodiversitat tal com l hem plantejat. Tots els casos recullen la dimensió humana de la biodiversitat, perquè aquest és, tal vegada, l aspecte més controvertit de la comprensió de la biodiversitat que proposem. BIODIVERSITAT A L AMAZÒNIA Els pobles indígenes de Pastaza Pastaza és la província central de l Amazònia de l Equador. El nom prové del riu que flueix des del cor dels Andes equatorians direcció sud-oest vers el riu MarañónAmazones al Perú. Pastaza té uns 30.000 km2 d extensió. Les fronteres d aquesta regió són el riu Cononaco al nord, la Serralada dels Andes a l oest, el riu Pastaza al sud i la plana Amazònica peruana a l est; aproximadament, 1°-3° Sud i 76°-78° Oest. Cinc pobles indígenes viuen a Pastaza:
LA COMPRENSIÓ DE LA BIODIVERSITAT: VERS EL RENAIXEMENT DE L'ECOLOGIA HUMANA 271
huaorani, quítxua amazònic, shiwiar, shuar i atxuar. Quítxua amazònic és el poble més nombrós a Pastaza, amb unes 15.000 persones (EcoCiencia et al., 1996: pàg. 63). La llengua, la cultura i la identitat del poble quítxua amazònic són el resultat d un procés d etnogènesi a la regió de Pastaza on han intervingut migracions i integracions d altres pobles indígenes amazònics com els gaie, sàpar, canintxe, andoa i atxuar, així com les pressions de la colonització des del segle XVII (OPIP, 1992; Guzmán, 1997). La llengua quítxua, originària del poble quítxua dels Andes, ha estat adoptada i estesa a gran part de Pastaza com a resultat del mencionat procés d etnogènesi. En general, Pastaza és una regió històricament amb gran diversitat cultural i dinamisme ètnic, la qual cosa fa que parlar de pobles indígenes de Pastaza resulti molt adient fins i tot actualment. L any 1981, els pobles indígenes de Pastaza crearen l Organització dels Pobles Indígenes de Pastaza (OPIP), el principal organisme polític indígena a la regió. Actualment en són membres destacats els pobles quítxua amazònic i shiwiar, els més nombrosos i els que ocupen la major part del territori indígena de Pastaza. En ells se centra la nostra investigació sobre biodiversitat. Pràctiques ecològiques dels pobles indígenes de Pastaza Els pobles indígenes de Pastaza disposen d una classificació del territori de les comunitats sobre el qual articulen les bases de la gestió dels recursos naturals. Els quatre patrons bàsics d ús del territori són llacta, purina, sacha ( selva ) i yacu ( aigües ). Els dos primers, que tenen relació amb llocs d assentament, és on es troben els horts (chacras) i jardins familiars. Els indígenes practiquen una agricultura lligada a la biodiversitat. Seleccionen la lo-
calització dels horts en funció de les característiques del sòl, les quals determinen el tipus d agricultura que es desenvoluparà, les espècies que es cultivaran i la intensitat agrícola que s aplicarà. Els horts tenen una àrea mitjana d una hectàrea, que és una dimensió ecològica adient per a la fàcil reestructuració posterior de l ecosistema utilitzat. Un nou hort s estableix talant (ruya cuchuna) i cremant (rupachina) l àrea seleccionada. La tala deixa en peu, però, espècies d interès alimentari, medicinal i ecològic, així com arbres que són hàbitat específic d algunes espècies. Els arbres no talats constitueixen un esquelet fonamental per a la successió ecològica que ocorrerà a l acabament del període agrícola principal. Als horts, i als jardins que envolten les cases, on també es practica agricultura, la biodiversitat d espècies i de varietats conreades és sorprenent. A la nostra investigació hem identificat almenys quaranta-cinc espècies de plantes que poden ser cultivades per les comunitats indígenes de Pastaza als horts i jardins (taula 1). En un moment donat sol haver-hi al voltant d una vintena d espècies cultivades, encara que al llarg dels processos agrícoles i les necessitats familiars el nombre d espècies emprades i combinades s amplia molt notablement. Entre les espècies conreades destaquen la iuca (Manihot esculenta), diverses espècies de plàtan (Musa sp.), la papaxina (Colocasia esculenta), la papamandi (Xanthosoma sp.), el cacauet (Arachis hypogaea), el sapallu o carbassera (Cucurbita sp.), la mongetera (Phaseolus vulgaris), la papaia (Carica papaya) i el blat de moro (Zea mays), entre d altres. D altra banda, la diversitat genètica d algunes de les espècies cultivades, generalment d aquelles nutricionalment i culturalment més importants, és igualment àmplia. A la comunitat de Sarayacu, els indígenes han identificat més de cinquanta
272 J. A. GARÍ
Nom quítxua
Nom català
Nom científic
Ús principal
Achogcha Ajirinri Anunas Ayahuasca Cafe Canua ruya Chini Chiri caspi Chivilla Chunda Cumal Guayaba Hierba luisa Huachanzo Huanduc Huayusa Huiru Huituc Inchig Japiyu/Avio Julun Laranca Lumu Manduru Pacay Palanda Papa Papachina Papa mandi Paparagua Papaya Pasu Pilchi Pitun Purutu Quila/Cacau Ramus muyu Runduma Sara Shihua Uchu Uvilla/Uva Verbena Zapallu
(Axogtxa) Gingebre Xirimoia Aiahuasca Cafè Canoa Ortiga Chiricaspi Pinya (Xonta) Moniato Guaiaba (Marialluïsa) (Cacauet silvestre) (Floripondi) Guaiusa Canya de sucre (Huituc) Cacauet (Caimito) Passionera Tarongina Iuca (Axiot) (Guaba) Plàtan (Patata shuar) (Papaxina) (Papamandi) (Fruit del pa) Papaia (Pasu) Carabassa (Pitun) Mongetera Cacau (Ramus) (Piripiri) Blat de moro (Ungurahua) Pebrotera (Uvilla) Berbena Carbassera
Cyclanthera sp. Zingiber officinale Annona cherimola Banisteriopsis caapi Coffea arabica Cedrela odorata Urera caracasana Brunfelsia sp. Ananas comosus Bactris gasipaes Ipomoea batatas Psidium guajava Cymbopogon citratus Caryodendron orinocense Brugmansia sp. Ilex guayusa Saccharum officinarum Genipa americana Arachis hypogaea Pouteria caimito Passiflora sp. Solanum quitoense Manihot esculenta Bixa orellana Inga edulis Musa sp. Dioscorea trifida Colocasia esculenta Xanthosoma sp. Artocarpus altilis Carica papaya Gustavia macaranensis Crescentia cujete Grias neuberthii Phaseolus vulgaris Theobroma sp. Astrocaryum murumuru Cyperus sp. Zea mays Oenocarpus bataua Capsicum annuum Pourouma tomentosa Verbena litoralis Cucurbita sp.
Alimentació Medicinal Alimentació Medicinal/Ritual Alimentació Construcció Medicinal Medicinal Alimentació Alimentació Alimentació Alimentació Medicinal Alimentació Medicinal Alimentació/Medicinal Alimentació Medicinal/Ritual Alimentació Alimentació Alimentació Alimentació Alimentació Ritual Alimentació Alimentació Alimentació Alimentació Alimentació Alimentació Alimentació/Medicinal Alimentació Artesania Alimentació/Medicinal Alimentació Alimentació Alimentació/Artesania Medicinal Alimentació Alimentació Alimentació/Ritual Alimentació Medicinal Alimentació
Fonts. Investigació de camp realitzada per l autor el 1998 a comunitats indígenes de Pastaza, Amazònia equatoriana. A la recerca han contribuït informes indígenes (Proyecto Samay, 1998; Sarayacu, 1998 i OPIP, 1992) i inventaris etnobotànics amazònics (Lebrun i Paymal, 1997; Ríos i Caballero, 1997 i Lescure et al., 1988). Comentaris. Aquest estudi etnobotànic se centra en els pobles quítxua amazònic i shiwiar. Quan les comunitats indígenes semblen utilitzar diferents espècies d un tipus vegetal determinat, solament consta la categoria de gènere. La denominació quítxua es basa, en alguns casos, en una transcripció fonètica lliure. TAULA 1. Biodiversitat agrícola dels pobles indígenes de Pastaza: principals espècies cultivades als horts i jardins familiars.
LA COMPRENSIÓ DE LA BIODIVERSITAT: VERS EL RENAIXEMENT DE L'ECOLOGIA HUMANA 273
varietats diferents de iuca (Manihot esculenta) (Sarayacu, 1998), i generalment en cultiven unes vint varietats (OPIP, 1992). Les pràctiques ecològiques indígenes continuen després dels dos o tres anys en què l hort ha estat en plena activitat productiva. Quan el sòl comença a esgotar-se, els indígenes hi planten arbres fruiters, fins a vint espècies diferents (Paul Toara, comunicació personal, 1998). Aquesta pràctica té funcions ecològiques ben determinades. D una banda, els fruiters atreuen ocells i altres animals, que són font de caça per als indígenes així com un notable estímul per a la biodiversitat local. A més, els fruiters, juntament amb els arbres que no es van talar, estructuren la successió ecològica de l ecosistema. D aquesta manera, els indígenes participen directament en els processos ecològics i de successió, tot determinant la futura composició ecològica del bosc tropical en base als arbres fruiters plantats en els horts que es van abandonant. És per això que podem parlar de boscos antropogènics a l Amazònia, en els quals la composició i característiques ecosistèmiques i de biodiversitat vénen determinades per les pràctiques ecològiques indígenes prèvies. Un darrer exemple de la decisiva contribució dels pobles indígenes de Pastaza a la biodiversitat dels seus ecosistemes és la pràctica comuna d intercanvi de noves varietats agrícoles, especialment d esqueixos de iuca (Manihot esculenta), entre famílies i comunitats. La iuca es cultiva a partir d esqueixos de les tiges. Els indígenes intercanvien esqueixos de noves varietats que han descobert o manipulat. Aquest intercanvi assoleix dimensions espacials molt notables. A la darrera assemblea dels pobles indígenes de Pastaza, celebrada a la comunitat de Boberas (Montalvo) el març de 1998, es van reunir representants i membres de la majoria de comunitats indígenes. L inter-
canvi d esqueixos de iuca entre membres de comunitats diferents va suposar una distribució de noves varietats arreu de la província de Pastaza i, donats els contactes entre diferents pobles indígenes en les àrees frontereres i a través dels rius, la manipulació i distribució de biodiversitat resultant és notable. Altres exemples de biodiversitat a l Amazònia L Amazònia no és pas un ecosistema forestal més o menys homogeni en els seus sis milions de kilòmetres quadrats. Hem de parlar d una pluralitat d ecosistemes amazònics com a primera aproximació a la biodiversitat de l Amazònia. A més, a l Amazònia ens trobem amb una biodiversitat immensa que, més enllà de la diversitat d espècies proclamada arreu, comprèn una considerable diversitat cultural. L Amazònia és generalment percebuda com una vasta regió de biodiversitat prístina. Però processos ecològics humans sobre la biodiversitat, com els descrits més amunt i com molts d altres, són habituals arreu dels ecosistemes de l Amazònia. El volum número 7 de la revista Advances in Economic Botany, editat per Darrell A. Posey i William Balée el 1989, es va dedicar íntegrament a les estratègies indígenes de gestió de recursos i ecosistemes a l Amazònia (Posey i Balée, 1989). El volum il·lustrava àmpliament com els pobles indígenes gestionen, manipulen i transformen els recursos, els ecosistemes i la biodiversitat a l Amazònia. Científicament va quedant demostrat que no es pot parlar tan rotundament d una biodiversitat prístina oposada a la pobresa ecològica de les àrees habitades pels éssers humans. Per exemple, el poble indígena kayapó, al Brasil, manté una activa participació en la successió ecològica i en la composició i dinàmica de biodiversi-
274 J. A. GARÍ
tat de les sabanes arbustives de l Amazònia, establint i mantenint illes vegetals altament diversificades (Anderson i Posey, 1989). En la mateixa línia, William Balée (1989) parla d una cultura dels boscos amazònics i considera que més del 10 % dels boscos de la terra ferma de l Amazònia del Brasil són antropogènics; és a dir, plantats per les comunitats humanes. Entre ells, ens destaca els boscos de babassu (Orbignya phalerata), de bambú (Guadua glomerata) i de diferents famílies de lianes (Balée, 1989). En definitiva, el factor humà en el fenomen de la biodiversitat és decisiu, fins i tot en un entorn habitualment imaginat pristi, verge i escassament humà com l amazònic. Respecte de la biodiversitat agrícola resulten ben interessants els estudis sobre el poble amuesha de l Amazònia peruana (Salick et al., 1997; Jan Salick, comunicació personal, 1998). La biodiversitat agrícola inclou el cultiu potencial d unes cent vint-i-cinc espècies vegetals als horts i d unes setanta-cinc espècies als jardins familiars. Quant al cultiu principal de l Amazònia, la iuca (Manihot esculenta), el poble Amuesha conrea unes sis varietats per hort de mitjana. Els xamans, individus amb rols socials característics dins les comunitats, mantenen en els seus horts una biodiversitat de iuca molt notable: es van arribar a identificar fins a cinquanta-tres varietats de iuca en un sol hort d un xaman. Els xamans dels Amuesha adopten com a funció pròpia mantenir varietats antigues que potser ja no es cultiven entre els altres membres de la comunitat; així mateix conreen noves varietats que recullen de qualsevol altre lloc o que ells mateixos obtenen manipulant l espècie. D aquesta manera, les comunitats indígenes disposen d autèntics bancs genètics in vivo i in situ, així com d una autèntica vocació investigadora sobre biodiversitat agrícola.
BIODIVERSITAT DE LA QUÍNUA (CHENOPODIUM QUINOA) La quínua, Chenopodium quinoa, és un cultiu característic dels Andes. És una planta anual, pertanyent al grup de les quenopodiàcies i que produeix una llavor molt rica en proteïnes. Fou un cultiu fonamental per als inques i actualment és un cultiu important en la majoria dels països andins i especialment en les seves comunitats indígenes andines. La quínua té una biodiversitat genètica molt notable que fa que aquesta espècie tingui varietats adaptades a condicions ecològicament difícils com elevada altitud, sòls de pobre fertilitat, sequera i elevada salinitat. La biodiversitat genètica de la quínua queda ben definida simplement atenent al fet que actualment s en cultiven als Andes unes quaranta-cinc varietats (Tapia, 1997). Aquestes varietats es classifiquen sota cinc ecotipus: Vall, Altiplà, Iungas, Salars i Nivell del Mar. L ecotipus Vall es cultiva a la regió nord i a les baixes elevacions de la regió sud dels Andes. L ecotipus Altiplà és característic de l altiplà entorn del Llac Titicaca, a uns 4.000 metres d altitud. L ecotipus Iungas es presenta als Andes orientals de Bolívia, vers la regió amazònica. L ecotipus Salars es cultiva a les regions salines del sud de Bolívia, a uns 4.000 metres d alçada. Finalment, l ecotipus Nivell del Mar es presenta al llarg de la costa central i sud de Xile, prop del nivell del mar (Tapia et al., 1980; citat a Wilson, 1988, i a Galwey, 1989). En conseqüència, la biodiversitat de la quínua és elevada i està orientada a una adaptació a condicions agrícoles extremes. Això és especialment extraordinari en el cas de les varietats de l ecotipus Salars, que es conreen en els salars de l altiplà sud de Bolívia, a uns 4.000 metres d altitud, amb precipitacions inferiors als 200 mm anuals i amb condicions elevades de salinitat al sòl; es
LA COMPRENSIÓ DE LA BIODIVERSITAT: VERS EL RENAIXEMENT DE L'ECOLOGIA HUMANA 275
tracta d un lloc àrid on cap altre cultiu pot créixer. En aquesta fascinant biodiversitat i adaptabilitat agrícola de la quínua han intervingut, de manera conjunta, l evolució biològica i l evolució cultural de les comunitats humanes dels Andes (Garí, 1997). L evolució biològica ha mantingut processos generadors de biodiversitat com variabilitat genètica, selecció natural i adaptació. Els coneixements i les pràctiques ecològiques humanes han alimentat, accelerat i dirigit els processos de modificació genètica, selecció i evolució. Les comunitats indígenes andines han estat agents determinants en l evolució genètica de la quínua i, per tant, en la seva biodiversitat. Sabem que el fenomen evolutiu fonamental és un canvi en les freqüències de les configuracions de gens i cromosomes en una població (Wilson, 1992: pàg. 69). Això és el que les pràctiques tradicionals andines han assolit. Els agricultors andins han manipulat, hibridat i evolucionat la quínua, han utilitzat híbrids silvestres i domèstics, i han mantingut permeable la frontera genètica i evolutiva entre varietats cultivades i varietats silvestres. De fet, no es troba una distinció biològicament significativa entre les poblacions silvestres i les cultivades, i més aviat hi ha similituds entre determinades varietats cultivades i silvestres (Wilson, 1988). Això indica que el flux genètic entre varietats silvestres i cultivades segueix obert i dinàmic, tot refusant qualsevol pretesa distinció entre natura silvestre i natura domesticada. Hibridació, manipulació, selecció i intercanvi han permès una gran biodiversitat genètica a la planta de la quínua, generant varietats adaptades a condicions ecològiques extremes i molt diverses. La biodiversitat i la complexa adaptabilitat de la quínua indiquen la rellevància dels coneixements i pràctiques tradicionals dels camperols andins. La biodiversitat de la quínua i la biodi-
versitat ecològica d algunes àrees andines relacionades amb la quínua i no es poden explicar sense considerar la coevolució entre els coneixements, pràctiques i innovacions tradicionals humanes, d una banda, i els processos ecològics i evolutius, de l altra. Els components humà i ecològicoevolutiu són indistingibles, així que tan sols un flux únic de vida i evolució en resulta: la biodiversitat. ECOLOGIA HUMANA I ECOLOGIA POLÍTICA La comprensió de la biodiversitat proposada a través dels casos de l Amazònia i els Andes obre noves reflexions en l ecologia. En primer lloc, la biodiversitat no pot quedar reduïda a una diversitat d espècies, que és actualment la comprensió hegemònica de biodiversitat. La biodiversitat genètica és cabdal en molts processos evolutius i agrícoles, mentre que la biodiversitat ecosistèmica determina la dinàmica de les espècies i les poblacions. D altra banda, la biodiversitat no és un conjunt d entitats estàtiques, sinó que també és procés i evolució. Sobre aquesta dimensió dinàmica ens trobem amb la contribució de l espècie humana a la biodiversitat de molts ecosistemes i regions, que és clau i no pas negligible. Coneixements, pràctiques i innovacions humanes que han coevolucionat amb components i processos ecològics contribueixen i formen part de la biodiversitat. Aquesta dimensió de la biodiversitat proposada comporta, i en tot cas requereix, un renaixement de l ecologia humana. Cal valorar la integració decisiva de moltes societats humanes al flux de biodiversitat, de la mateixa manera que cal identificar els sistemes socials que empobreixen la biodiversitat i debiliten els ecosistemes. En definitiva, descobrim que la biodiversitat no és tan sols una realitat prístina
276 J. A. GARÍ
i deshumanitzada, sinó també una producció humana, molt especialment en els ecosistemes agrícoles i de pastura, que ocupen prop del 40 % de la superfície terrestre del planeta (WRI, 1996: pàg. 216). Aquesta comprensió de la biodiversitat no suposa tan sols un renaixement de l ecologia humana. En les condicions sociopolítiques mundials d avui en dia, l ecologia humana esdevé tanmateix ecologia política en el cas de la biodiversitat. Vegem-ne dos exemples. D una banda, i especialment en casos com el de la quínua, la seguretat alimentària i ecològica de moltes comunitats i societats humanes depèn directament del flux de biodiversitat local i de la integració humana en aquest flux. Els processos de biodiversitat possibiliten la vida humana, de la mateixa manera que moltes cultures humanes com les estudiades acceleren i dirigeixen els processos de biodiversitat. El trencament d aquesta dinàmica té conseqüències polítiques perquè comporta l empobriment social, econòmic i ecològic d aquestes comunitats humanes, així com la pèrdua de biodiversitat tan preocupant arreu. D altra banda, un repàs a les institucions i grups humans interessats i que participen en el tema de la biodiversitat suggereix la inherent dimensió política de la biodiversitat. Al voltant de la biodiversitat tenim els jardins botànics, els herbaris, els pobles indígenes, els agricultors, la indústria agrícola, els conservacionistes, el turisme, els centres d investigació biològica, la indústria farmacèutica i biotecnològica, els sistemes de propietat intel·lectual, els governs, les comunitats locals, les organitzacions no governamentals, els centres de llavors i bancs de germoplasma, els científics en diversos camps de la biologia (com la botànica, l ecologia i la genètica), els bioprospectors i els organismes internacionals, entre d altres. Aquests grups i institucions humans són nombrosos, diversos i freqüent-
ment entren en conflicte per motiu de la biodiversitat. Cadascun d ells aporta una visió i una acció particulars i en general divergents sobre la biodiversitat. La permanència dels processos ecològics descrits a l Amazònia i als Andes requereix d una determinada articulació dels processos de desenvolupament humà, de les polítiques locals i globals aplicades, i de la capacitat política de les societat humanes involucrades en els fluxos de biodiversitat. És per això que, actualment, l evolució de la biodiversitat i dels ecosistemes depèn de l evolució cultural i política de l Homo sapiens a molt diverses escales. Com a exemples tenim les lluites dels pobles indígenes de Pastaza per desenvolupar-se en base a les seves pròpies pràctiques ecològiques i culturals (Leonardo Viteri, comunicació personal, 1998), els conflictes internacionals entorn del control i propietat sobre la biodiversitat (Garí, 1997), i molts moviments ecologistes en els països del Sud que reivindiquen les seves pròpies comprensions i pràctiques sobre biodiversitat (Guha i Martínez-Alier, 1997). D aquesta manera, l ecologia humana que reivindiquem té tanmateix una vessant d ecologia política a explorar. CONCLUSIÓ En aquest article hem proposat comprende la biodiversitat com el flux de vida que emergeix en la coevolució de la variabilitat de formes de vida (gens, espècies i ecosistemes), dels processos ecològics i evolutius que s esdevenen, i de les pràctiques ecològiques humanes que hi intervenen. Hem il·lustrat i defensat aquesta hipòtesi de la biodiversitat a partir de l estudi dels processos ecològics a l Amazònia indígena i de l anàlisi del flux de biodiversitat genètica en la planta de la quínua (Chenopodium quinoa) als Andes.
LA COMPRENSIÓ DE LA BIODIVERSITAT: VERS EL RENAIXEMENT DE L'ECOLOGIA HUMANA 277
L ecologia no s esgota en les clàssiques i divergents disciplines de l ecologia de comunitats i l ecologia d ecosistemes. Els recents estudis sobre els processos de la biodiversitat apunten cap a un decisiu renaixement de l ecologia humana. L Homo sapiens ha de tornar a l ecologia i, a més, redescobrir-se i fomentar-se com a espècie clau en el flux de biodiversitat de molts ecosistemes. En línia amb l ecòleg Eugene P. Odum, l ecologia és un pont entre la ciència i la societat (Odum, 1997). La comprensió de la biodiversitat que hem desenvolupat implica que la biodiversitat pot esdevenir un pont que integri les diverses ecologies, on disciplines tradicionalment ignorades i aïllades esdevenen rellevants i integrades. Entre elles destaquen l ecologia humana, l etnoecologia i, potser també, l ecologia política. Així doncs, la ciència de l ecologia afronta un gran repte: entendre la biodiversitat del planeta Terra tot reconeixent i integrant l espècie humana, una espècie massa ignorada que, a cavall dels segon i tercer mil·lenis, està trencant la seva coevolució amb la resta de processos de la vida i esdevé una amenaça per a la biodiversitat i per a si mateixa. L ecologia humana pot aportar llum a aquesta problemàtica ecològica i social. En definitiva, la biodiversitat, el més genuí fenomen de la vida, s agita entre continuar l excitant coevolució amb la humanitat o esdevenir la seva darrera víctima. AGRAÏMENTS Volem reconèixer les comunicacions personals mencionades de Jan Salick, Presidenta de la Societat Internacional de Botànica Econòmica, i de Paul Toara, tècnic del Projecte Nunguli de l OPIP. Desitgem mostrar el nostre agraïment a l Organització dels Pobles Indígenes de Pastaza (OPIP), a
Leonardo Viteri, dirigent indígena de l OPIP i director de l Institut Amazònic de Ciència i Tecnologia Amazanga, i a totes les comunitats indígenes de l Amazònia que ens van acollir generosament durant la investigació de camp portada a terme l any 1998. Aquesta investigació va ser iniciada amb el suport d una beca de La Caixa i l Institut Britànic a Barcelona i continuada gràcies a una beca Marie Curie Research Fellowship de la Comissió Europea. BIBLIOGRAFIA ANDERSON, A. B.; D. A. POSEY (1989). «Management of a tropical scrub savanna by the Gorotire Kayapó of Brasil». Advances in Economic Botany, núm. 7, pàg. 159-173. BALÉE, W. (1989). «The culture of Amazonian forests». Advances in Economic Botany, núm. 7, pàg. 1-21. DARWIN, C. (1859). On the Origin of Species. Versió catalana: L origen de les espècies, Traducció de S. Albertí i C. Albertí, Barcelona: Edicions 62 i Diputació de Barcelona, 1982, pàg. 37. ECOCIENCIA; CENTRO FÁTIMA; JATUN SACHA; OMAERE (1996). Manejo de Recursos en el Bosque Tropical: Lecciones Aprendidas. Quito: EcoCiencia, pàg. 63. EHRLICH, P. R.; G. C. DAILY (1993). «Population extinction and saving biodiversity». Ambio, vol. 22, núm. 2-3, pàg. 64-68. GALWEY, N. W. (1989). «Exploited crops: Quinoa». Biologist, núm. 36, pàg. 267-274. GARÍ, J. A. (1997). «The role of democracy in the biodiversity issue: The case of quinoa». CEDLA Papers, Àmsterdam: CEDLA (Centre for Latin American Studies). GUHA, R.; J. MARTÍNEZ-ALIER (1997). Varieties of Environmentalism: Essays North and South. Londres: Earthscan. GUZMÁN, M. A. (1997). Para que la yuca beba nuestra sangre. Quito: Abya-Yala, pàg. 26-33. LEAKEY, R.; R. LEWIN (1995). The Sixth Extinction: Biodiversity and Its Survival. Londres: Phoenix. LEBRUN, L.; N. PAYMAL (1997). «El Parque Pedagógico Etnobotánico Omaere». A: RIOS, M.; H.B. PEDERSEN (ed.), Uso y Manejo de Recursos Vegetales: Memorias del II Simposio Ecuatoriano de Etnobotánica y Botánica Económica; Quito: Abya-Yala. LESCURE, J. P.; H. BALSLEV; R. ALARCÓN (1988). Plantas Útiles de la Amazonía Ecuatoriana. Quito: ORSTON-INCRAE-PRONAREG, Citat a ESTRELLA, E. (1995);
278 J. A. GARÍ «Biodiversidad y salud en las poblaciones indígenas de la Amazonía»; Tratado de Cooperación Amazónica, FAO, UE, PNUD et al., pp. 237-271. MARGALEF, R. (1994). «Dificultats inherents a la predicció ecològica». Treballs de la Societat Catalana de Biologia, núm. 45, pàg. 147-155. ODUM, E. P. (1997). Ecology: A Bridge between Science and Society. Sunderland: Sinauer Associates. OPIP (Organització dels Pobles Indígenes de Pastaza) (1992). Plan Amazanga: Formas de Manejo de los Recursos Naturales en los Territorios Indígenas de Pastaza, Ecuador. Puyo: OPIP. PIELOU, E. C. (1995). «Biodiversity versus old-style diversity: Measuring biodiversity for conservation.» A: BOYLE, T. J. B.; B. BOONTAWEE, B. (ed.). Measuring and Monitoring Biodiversity in Tropical and Temperate Forests. Bogor: Center for International Forestry Research. POSEY, D. A.; W. BALÉE (ed.) (1989). Resource Management in Amazonia: Indigenous and Folk Strategies. Advances in Economic Botany. Nova York: The New York Botanical Garden, volum 7. PROYECTO SAMAY (1998). Talleres de Autodiagnóstico Comunitario. Puyo: OPIP i Comunidec. RIOS, M.; J. CABALLERO (1997). «Las plantas en la alimentación de la comunidad Ahuano, Amazonía ecuatoriana». RIOS, M., H. B. PEDERSEN (ed.); Uso y Mane-
jo de Recursos Vegetales: Memorias del II Simposio Ecuatoriano de Etnobotánica y Botánica Económica. Quito: Abya-Yala. SARAYACU (1998). Sarayacu: Ñucanchic Causai Ñanbita Catishuchic (Caminos de Identidad). Quito: Consejo de Tayjasaruta de Sarayacu; Imprenta Nuestra Amazonía, pàg. 89-90. TAPIA, M. E. (1997). Cultivos Andinos Subexplotados y su Aporte a la Alimentación. 2a ed. Santiago de Xile: FAO. TAPIA, M. E.; S. A. MÚJICA; A. CANAHUA (1980). «Origen, distribución geográfica y sistemas de producción en quinua.» Primera Reunión sobre Genética y Fitomejoramiento de la Quinua. Puno: Universidad Nacional Técnica del Altiplano, IBTA, Instituto Interamericano de Ciencias Agrícolas i Centro de Investigaciones Internacionales para el Desarrollo. UNO (United Nations Organisation) (1992). Convention on Biological Diversity. Rio de Janeiro: United Nations Conference on Environment and Development,. WILSON, E. O. (1992). The Diversity of Life. Londres; Nova York: Penguin, pàg. 33-46, 69. WILSON, H. D. (1988). «Quinua biosystematics». Economic Botany, núm. 42, pàg. 461-494. WRI (World Resources Institute) (1996). World Resources 1996-97. Oxford: Oxford University Press, pàg. 216.
La biologia a l alba d un nou mil·lenni (J. Bertranpetit, ed.) Treballs de la SCB. Vol. 50 (2000) 279-288
EL LABERINT ECOLÒGIC SALVADOR PUEYO PUNTÍ Departament d Ecologia. Universitat de Barcelona. Adreça per a la correspondència: Departament d Ecologia, Facultat de Biologia, UB. Av. Diagonal 645, 08028 Barcelona. Tel. 93 402 15 06. Fax. 93 411 14 38. E-mail: pueyo@bio.ub.es
INTRODUCCIÓ Treure l entrellat del llegendari Laberint del reialme de Creta no era només un repte complicat, era una necessitat immediata: el risc de topades amb el Minotaure no es podia pas obviar. El canvi global ha fet tornar igual d inajornable trobar alguna sortida a un dels laberints intel·lectuals més formidables, el que es troba al davant qualsevol que intenta fer-se una mínima idea de com funciona la Biosfera. S ha dit que qui viu els grans episodis històrics és qui menys s adona de la seva importància. Costa de fer-se càrrec que estem en uns anys excepcionals, però el fet és que ho són i que les decisions que prenguem ara pesaran sobre moltes generacions. Estem immersos en l experiment insòlit d una economia global única, que s articula ràpidament alhora que creix i es desfà de regulacions. L oligarquia econòmica augmenta el seu poder, però encara s eixampla més el rol d allò que escapa al control humà
l autoorganització dels processos econòmics, que s il·lustra clarament per la impredictibilitat de la borsa; els aparells que fan un processament exosomàtic d informació. Les finances, cada cop més virtuals, estan posant l activitat humana al servei d un gran videojoc. Tot això no succeeix en un món abstracte com el mercat ideal de la teoria econòmica, sinó en un planeta finit amb roques, aire, aigua i formes de vida. Si diem que l economia humana ha esdevingut un fenomen biosfèric de primera magnitud no són paraules buides. S estima que actualment marca el destí del 40 % de la producció primària neta de les terres emergides (Vitousek, 1986) i del 25 % de les aigües que hi precipiten (Postel et al., 1996), que és responsable del 50 % de la fixació de nitrogen (Vitousek et al., 1997), que ha augmentat la concentració de CO2 en un 30 % (WHO i UNEP, 1996), que ha acabat amb el 50% de les selves tropicals (Myers, 1995a), que ha multiplicat la taxa d extincions per un factor entre 1.000 i 10.000 (Pimm, 1995)...
280 S. PUEYO
Les empremtes són ben visibles i van més enllà del clàssic duet exhauriment de recursos acumulació de deixalles. La dinàmica de les capes fluïdes canvia; els ecosistemes perden complexitat: des de l estructura del sòl fins a la riquesa genètica, un munt d informació lentament acumulada s està esborrant amb el trasbals general. La vida quotidiana de les persones no resta al marge de les transformacions ecològiques. De fet el nostre Minotaure amenaça fins i tot el més bàsic, l obtenció d aliments, però costa que els senyals arribin a les regions opulentes del món, on es concentra la presa de decisions. El medi ambient s ha incorporat al vocabulari polític i mediàtic, però a la pràctica el sistema econòmic mundial s està construint en la més absoluta ceguesa ambiental. Una mena de ceguesa que no es deu primàriament a una deficiència dels ulls la ciència ecològica sinó a la negligència en el seu ús: l actitud general d indiferència, la teoria econòmica impermeable a la realitat ecològica, el sistema econòmic sense mecanismes de reacció als senyals ambientals. Però, com a conseqüència (i en part causa) d aquest desinterès, el cert és que els ulls no estan tan desenvolupats com seria desitjable. En aquest instant clau, no és tan sols interessant aprofundir en la ciència dels ecosistemes, és urgent. CAL UNA TEORIA ECOLÒGICA Si ens preocupés el futur del planeta i volguéssim fer quelcom de seriós sobre aquesta qüestió, el primer que ens faria falta seria una comprensió a fons de la Biosfera. Però aleshores descobriríem que extreure-la de la, altrament extensa, literatura ecològica, no és pas immediat. Ni tan sols la ciència amb més fama d integradora s escapa de la ultraespecialització (com no s escapa de la pressa per publicar cada petita passa en les recerques) i sense haver acabat de trobar abans un marc
coherent on ubicar les aportacions puntuals. L ecologia gaudeix d una gran riquesa de plantejaments i metodologies, des de qui fa estudis naturalístics a l estil més clàssic fins a qui cerca la veritat rere la pantalla del seu ordinador, però és una diversitat que fàcilment esdevé disgregació. Rere dels treballs de cada escola s insinuen conceptes globalitzadors, que idealment confluirien i sostindrien uns esquemes bàsics compartits, però a la pràctica no estan prou definits i divergeixen. El fil d Ariadna està fet un manyoc. (Com a introducció a alguns dels conceptes teòrics que es discuteixen en ecologia, vegeu Flos i Gutiérrez, 1995, Müller, 1997). Es podria pensar que l acumulació de problemes ambientals exigeix uns estudis orientats a aplicacions concretes, que no es perdin en teoritzacions. Però un plantejament així seria massa miop. Certament hi ha molts problemes a resoldre com sigui, que no poden esperar a disposar d una base teòrica bona, però a la llarga aquesta base resultarà imprescindible. Els estudis encaminats a aplicacions puntuals són els únics que es poden vendre amb una certa facilitat, ja que rera les fonts de finançament hi ha un interès en la cosmètica ambiental, no pas en les qüestions de fons. Però els grans problemes demanen grans solucions. Cal repensar la societat des dels seus fonaments i impregnar-la de realisme ecològic, i per a això el primer que fa falta és aclarir quins són els principis essencials que regeixen el funcionament de la Biosfera. De fet l ecologia ha començat a imbuir la mentalitat de la gent, però les limitacions teòriques d aquesta ciència han fet que el lloc que correspondria als conceptes ecològics estigui en part ocupat per conceptes pseudoecològics o bé que provenen de l ecologia però han perdut des de fa temps valor científic. Un exemple clar, pertanyent a la darrera categoria, és el d equilibri ecològic (Westoby, 1997). El concepte obsolet d equilibri ecolò-
EL LABERINT ECOLÒGIC 281
gic té relació amb una regularitat que des del punt de vista de l autor no n és pas, d obsoleta, i a més té una gran transcendència pràctica. Aquesta regularitat consisteix en el fet que una intervenció arbitrària sobre un ecosistema (és a dir, que no vagi guiada per un coneixement profund) amb la màxima probabilitat tindrà un efecte destructiu, havent definit adequadament el terme destructiu. De forma no tan explícita, aquesta regularitat és reconeguda per la societat i l explica pel perill de trencar l equilibri ecològic. Per a l autor la regularitat no s explica correctament d aquesta manera, però sí a partir de certs principis de base física que regeixen l autoorganització de la Biosfera (Pueyo, 1999); és important que s acabi d aclarir aquest punt perquè altrament perdríem un element bàsic de seny ambiental. Emparentada amb el concepte d equilibri ecològic trobem la noció d una relació positiva entre diversitat i estabilitat. Després d un parell de dècades en què s han estat desacreditant les velles intuïcions que la fonamentaven (p. ex. May, 1973), en uns pocs anys hem vist recollits a la revista Nature un seguit d experiments que semblen revelar que sí que hi ha aquesta relació positiva (Tilman et al., 1996; McGrady-Steed et al., 1997; Naeem et al., 1997). Però el cas és que tenim qualsevol cosa menys idees clares sobre el tema. Es pot témer que si arribem a tenir-les serà en un estadi ja massa avançat de l experiment que estem realitzant a escala planetària. Si pensem en la importància de l ecologia en termes econòmics ens tornarem a trobar amb la dicotomia teoria general aplicacions puntuals. El mercat demana aplicacions puntuals, i per tant des del punt de vista convencional són les que tenen importància econòmica. Si parléssim de segons quina ciència potser ho podríem deixar així, però resulta que la teoria ecològica pot fer trontollar els fonaments de la pròpia econo-
mia convencional, de manera que la darrera no acaba de ser el marc adient per valorar la primera. L economia ortodoxa es presenta com a una ciència autònoma, independent de la resta de ciències. El corrent minoritari anomenat economia ecològica (p. ex. Martínez Alier, 1994) intenta superar aquesta autonomia, en entendre que el sistema econòmic no és més que un subsistema de la Biosfera. Per a l economia ecològica tenen importància conceptes ecològics bàsics però poc clars com ara el de capacitat de càrrega (Arrow et al., 1995). Les formulacions més de fons donen un gran relleu a les constriccions termodinàmiques (Georgescu-Roegen, 1971, Binswanger, 1993), però topen amb la dificultat que la recerca de regularitats de base termodinàmica en la mateixa ecologia fa temps que està quasi abandonada. Si no es tira endavant amb més empenta l economia ecològica i la teoria ecològica , és presumiblement perquè les qüestions que es planteja són rellevants des del punt de vista dels interessos globals però no pas dels particulars, per als quals l aproximació del mercat sense límits és més que suficient. En un moment tan àlgid per al neoliberalisme les coses encara poden empitjorar. La insistència en l autofinançament de la investigació no ofereix perspectives gaire bones per a la recerca fonamental. En aquestes circumstàncies adverses, les persones que hem optat per dedicar-nos a l ecologia hem de tenir present la responsabilitat multigeneracional que tenim al damunt. DE COM LA NATURA ES BURLA DE LA CIÈNCIA Hi ha molta feina per fer per millorar l ecologia i dotar-la d una bona base teòrica i cal fer-ho ja. Però per a això s ha de comen-
282 S. PUEYO
çar per reconèixer que el seu objecte d estudi no ens ho posa gens fàcil. La tasca de qualsevol branca de la ciència és absorbir informació sobre el món. En una primera fase de l activitat científica, la informació es recull en estat brut, es fa una simple descripció de certs fragments de la realitat. A continuació cal compactar tot aquest conjunt de descripcions acumulades, destil·lant la veritable informació de tot allò que n és redundant. Per exemple, un registre de cent anys de moviment aparent del Sol es pot transformar en una senzilla fórmula que ocupa molt menys espai però que permet calcular la posició del Sol en qualsevol moment dels cent anys observats, de manera que no s ha perdut gens d informació. L aposta de la ciència és que, un cop extreta una informació molt bàsica d un conjunt de fragments de realitat, aquesta romandrà vàlida en afegir-hi nous fragments seleccionats amb els mateixos criteris. Això significa que fa una predicció temptativa de com seran aquests nous fragments. La ciència pretén preveure a quina hora sortirà el Sol demà; si ho aconsegueix aquesta nova dada no haurà afegit gens d informació a la nostra fórmula, s haurà mantingut invariant. Si no ho aconsegueix, caldrà rebutjar l antiga visió compacta de la realitat i buscar-ne una de nova. Un criteri molt estès tria justament aquesta possibilitat de fracàs com a definitòria de ciència. Segons el principi de falsabilitat de Popper, una teoria científica es caracteritza pel fet que ha de ser concebible que en un moment donat una observació permeti arribar a la conclusió que es tracta d una teoria incorrecta. Com a exemple de teoria no científica se cita a vegades l asseveració feta al segle passat pel reverend Phillip Gosse (Salmon et al., 1992), segons la qual Déu va crear el món fa 6.000 anys, encara no, i hi va col·locar directament els sediments estratificats amb fòssils i tot. Aquesta teoria no es pot rebutjar per molts fòssils que observem,
i pel mateix motiu no permet preveure res sobre com seran els fòssils a cada estrat. No és una teoria científica. La física és la ciència per excel·lència. L aplicació del criteri de falsabilitat hi és molt clara perquè, per a una predicció que surti essencialment d aplicar les lleis de la física, un fracàs és un fracàs, sigui on sigui i sigui quan sigui. La seva potència rau justament en què selecciona allò que se suposa invariant i universal, vàlid en tot lloc i en tot moment. Però no tot és així, no vivim en el món platònic de les idees. Com a pobres mortals sabem que el gruix del que ens envolta és efímer. Els éssers vius naixem i morim, com ho fan les espècies, els ecosistemes i la pròpia Biosfera, com ho fan les espelmes i els estels. Fins allò que sembla més ferm acaba per esvair-se. En la dansa de la vida tot es fa i es desfà, com els núvols. Hi ha poques veritats eternes, el que avui és d una manera demà pot ser d una altra, la falsabilitat trontolla. En el Departament d Ecologia de la Universitat de Barcelona hem topat més d un cop amb aquesta realitat. Una tesi sobre les macròfites submergides de l estany de Baciver (Gacia, 1992) es va presentar just després que l estany fos represat i totes les macròfites desapareguessin; dues tesis sobre dues rieres de la conca del Ter (Martí, 1995, Guasch, 1995) es van presentar quan en una d elles havien acabat d arrasar els arbres de ribera, tot deixant-la en unes condicions ben diferents... Bona part del contingut d aquestes tesis ja no és contrastable (pel mateix motiu, és insubstituïble). Sense necessitat de les maltempsades antropogèniques, tan freqüents avui en dia, sabem que la pròpia dinàmica dels ecosistemes genera sorpreses, que podem anar a un llac i no trobar mai més l espècie de copèpode que havia dominat durant anys, però no per això pensarem que els estudis previs eren inadequats. La falsabilitat trontolla, i
EL LABERINT ECOLÒGIC 283
amb la falsabilitat la capacitat de predicció i la pròpia naturalesa científica de l ecologia. La informació ecològica acostuma a tenir data de caducitat. El que salva l ecologia com a ciència és que algunes dates de caducitat són molt llunyanes. Hi ha coses que canvien en dècimes de segon i d altres que canvien en centenars de milions d anys. Les escales temporals a les quals es renoven els diferents components de la informació que conté la Biosfera són les que permeten distingir-ne els aspectes abordables científicament d aquells que, com a molt, permeten una recopilació històrica. La frontera entre ambdues categories és molt difusa, té a veure amb l escala temporal de la vida humana. Una proporció substancial dels articles a revistes com Ecological Monographs o Ecology corresponen a estudi de casos i per tant estan a la frontera d allò pròpiament científic. D altra banda, encara que la recopilació històrica no sigui ciència és una passa necessària per fer ciència. A partir del conjunt d estudis de casos pertanyents a una certa categoria es poden extreure regularitats generals per a aquella categoria, patrons recurrents per a uns certs tipus d ecosistemes, que presumiblement s han reiterat durant períodes de temps molt llargs, a escales geològiques, i poden encara reiterar-se si els deixem. Per tant són falsables i donen capacitat predictiva. A més, els estudis de casos nodreixen un coneixement intuïtiu de la Natura que pot anar molt pel davant de la ciència i orientar-la. LA RECERCA INDUCTIVA DE REGULARITATS Si bé els estudis de casos, d ecosistemes concrets, estan a la frontera de la ciència, la
inducció de regularitats a partir de la integració d aquests estudis sí que és genuïnament científica i dóna capacitat predictiva; és fonamental per abordar els reptes planetaris. Però per dur-la endavant cal superar algunes dificultats pràctiques: 1. No hi ha una bona fluïdesa en la circulació de les dades brutes de cada cas, que permeti sotmetre-les a tractaments conjunts. A més d entorpir els treballs d integració, la poca accessibilitat té altres pegues: els estudis inicials que s hagin realitzat perden falsabilitat també pel fet que les dades no puguin rebre fàcilment tractaments alternatius per part de terceres persones, i no només per la caducitat inherent als fenòmens estudiats; alhora es perd un valuós recurs per a la gestió de les àrees estudiades. És clar que no es tracta senzillament de sol·licitar un lliure accés a les dades. El fet és que no es valora acadèmicament la seva obtenció sinó tan sols la publicació dels articles que surten d elaborar-les, de manera que per a qui les aconsegueix és força més difícil d assegurar el reconeixement de la seva feina si no se les reserva per ser qui les treballi (Blumenthal et al., 1997, estudien algunes qüestions relacionades). Fa falta algun mecanisme que ho resolgui; per exemple, les institucions podrien valorar en els currículums una mesura d impacte del treball de camp i de laboratori que es basés en el nombre d articles que s han servit de les dades obtingudes en aquest treball, independentment de l autoria dels articles. A més de facilitar la circulació de dades potser també se n estimularia l obtenció, i es podrien recuperar certs tipus d estudis descriptius que s estan perdent, com ara els inventaris taxonòmicament profunds (Cotterill i Dongerfield, 1997). S ha d esmentar que en algun àmbit concret sí que s ha assolit un bon sistema de compartir dades, com és el cas de
284 S. PUEYO
la comunitat dendrocronològica nord-americana. Però també que les legislacions sobre propietat intel·lectual que s estan discutint als Estats Units i la Unió Europea poden posar més difícils les coses (Gardner i Rosembaum, 1998). 2. Per trobar regularitats amb valor científic fa falta plantejar qüestions correctament formulades. En teoria ecològica s ha caigut reiteradament en la discussió de conceptes que no s han definit adequadament i que, per tant, no es poden estudiar amb objectivitat a partir de les dades. Peters (1991) fa una recopilació exhaustiva d aquesta mena de mancances, però passa injustificadament a l extrem de negar l interès dels conceptes generals i voler convertir l ecologia en un agregat informe de relacions empíriques. 3. L utillatge estadístic sovint està per sota del que fóra desitjable, tant en els estudis d integració com en els estudis de casos. L habitual es servir-se acríticament de receptes estadístiques elementals que no són adequades per a les complexitats de l ecologia. Per exemple, els propis estudis que Peters (1991) presenta com a exemplars es limiten a regressions convencionals. Els procediments estadístics usuals assumeixen que les distribucions són gaussianes o fàcilment normalitzables i que les relacions entre variables són lineals o fàcilment linealitzables. Però aquestes assumpcions no acostumen a correspondre a la realitat. La resolució d aquest problema pot passar per: i) Posar a prova les assumpcions de cada test abans d aplicar-lo; ii) generalitzar l ús de l estadística no paramètrica; iii) apreciar l interès que té per si mateix l estudi de les distribucions estadístiques allunyades de la gaussianitat que hom troba en ecologia (com ara les distribucions potencials); iv) desenvolupar tests estadístics més específics per a cada mena de problema.
ELS ECOSISTEMES COM A SISTEMES FÍSICS Els ecosistemes estan subjectes a les lleis de la física. Per tant, una part de la informació que contenen és veritablement invariant. La qüestió és si aquesta informació consisteix en unes quantes trivialitats que incorpora qualsevol model mecanicista o si també es troba rere de regularitats menys elementals, les quals només s aprecien en estudiar els ecosistemes com un tot, des d una perspectiva holística. Si fos així, la manera en què està construïda la nostra Biosfera no seria el simple producte d un procés històric particular, sinó que tindria uns trets en comú amb qualsevol biosfera que hi pogués haver a qualsevol altre planeta. Plantejaments així foren difosos entorn dels anys seixanta i setanta per autors com Margalef (1963, 1968, 1980) i els germans Odum (Odum i Pinkerton, 1955, Odum, 1969). L aportació de Margalef (1971) en el debat sobre Cap on va la biologia moderna? de l any 1970 n està força impregnada. Si aquesta línia d investigació hagués tirat endavant, potser hauria dotat l ecologia d uns pilars físics que li haurien aportat una solidesa i una coherència avui difícils d imaginar. L ecologia té necessàriament a veure amb la física dels sistemes autoorganitzats (vegeu p. ex. Nicolis i Prigogine, 1977), dels sistemes que esdevenen complexos per si sols, com el fluid que dóna lloc a un patró de cel·les hexagonals en escalfar-lo des de baix. A la fi, la Biosfera és el sistema físic autoorganitzat més complex que coneixem, el sistema autoorganitzat per excel·lència. Si bé aquesta apreciació pot tenir interès per a totes les branques de la biologia, perquè totes estudien algun aspecte de la Biosfera, en té especialment per a l ecologia, perquè, a diferència de tantes altres disciplines, estu-
EL LABERINT ECOLÒGIC 285
dia processos biològics que no responen a la simple execució d un programa (genètic) preestablert. La recerca de regularitats ecològiques des de la física ha de seguir una estratègia complementària a la que hem plantejat abans. Mentre abans parlàvem de la inducció de regularitats a partir de l anàlisi integrada de les dades de molts estudis diferents, les regularitats imposades per la física s han de poder establir de forma molt més sòlida per deducció a partir de les pròpies lleis de la física, sense més. Les regularitats generals que així es trobin haurien de posar la carcassa on encaixar les regularitats que provinguin del desenvolupament històric de la nostra Biosfera i que es vagin entreveient per inducció. Entre unes i altres s establiria el marc conceptual on col·locar tot el coneixement ecològic. Les primeres passes donades en la física dels ecosistemes per Margalef (1963, 1968) i els germans Odum (Odum i Pinkerton, 1955, Odum, 1969) se centraven en regularitats que de fet s observaven per inducció, i a més en alguns casos no estaven prou ben definides per assentar-les amb claredat sobre dades empíriques. La connexió amb lleis físiques, en concret termodinàmiques, era encara especulativa. Però posaven les idees essencials per a un desenvolupament més a fons. Ara que l ecologia teòrica és essencialment mecanicista, la tradició iniciada per Margalef i els Odum sobreviu de manera marginal, per exemple a les pàgines d Ecological Modelling, però s hi observa sovint una manca de rigor en el maneig dels conceptes físics que du a errors molt elementals. Des del punt de vista de l autor és essencial recuperar aquesta línia de manera seriosa i per això és el tema al qual es dedica més intensament. Els primers resultats estan sotmesos per a la seva publicació (Pueyo, 1999).
L ECOLOGIA TEÒRICA ACTUAL L orientació de l ecologia teòrica actualment dominant és força diferent. És majoritàriament un estudi de casos, com l ecologia de camp, però en aquest cas els casos no són ecosistemes reals sinó models que s analitzen a la llum de la teoria de sistemes dinàmics. Es tracta de models que podem anomenar mecanicistes, que representen engranatges simples i molt concrets inspirats en elements propis de la biologia de poblacions, com la reproducció, la mort o les capacitats de càrrega limitades. S estudien bàsicament per mitjà de simulacions d ordinador. El seu principal mèrit és mostrar que mecanismes senzills i creïbles poden donar lloc a dinàmiques no gens trivials, que en fer estudis de camp podríem topar perfectament amb fenòmens com l anomenat caos determinista (p. ex. Hastings et al., 1993), en comptes de cicles periòdics, estats estacionaris (com els que serien propis de l equilibri ecològic) o simplement soroll. Aquesta ecologia teòrica ha fet una neteja d apriorismes i ha suggerit possibilitats abans insospitades, però de moment no ha anat gaire més enllà. Certament, els conceptes presos de la teoria de sistemes dinàmics obren una gran quantitat de possibilitats a l hora de buscar què hi ha darrera de les dades ecològiques. A més d extreure n relacions clàssiques, com ara la covariació entre diferents variables d interès immediat, podem mirar d obtenir mesures que abans no s havien ni plantejat però ara tenen molt sentit, amb noms esotèrics com dimensió de correlació o exponent de Lyapunov (p. ex. Bascompte, 1995). És a dir, ofereixen un gran potencial a l hora de construir coneixement ecològic per la via de la inducció. Però aquestes possibilitats estan molt lluny de realitzar-se malgrat els vint-i-sis
286 S. PUEYO
anys que han passat des dels articles de May (1974) que iniciaren l etapa actual de la investigació en aquesta línia. En el cas del caos determinista, els treballs que semblen evidenciar-lo en ecosistemes reals sempre acusen una gran incertesa, i tot i així són prou excepcionals per trobar fàcilment sortida en les revistes de més impacte (Tilman i Wedin, 1991, Hanski et al., 1993, Constantino et al., 1997). Les arrels del problema no són gaire diferents de les que ja s han esmentat per als estudis inductius en general, amb l agreujant que en aquest cas les relacions que pretenem descobrir són més imbricades. Les dades ecològiques són inherentment difícils d obtenir en prou abundància i circulen amb dificultat, i les principals eines de les quals es disposa per tractar-les són inadequades. Aquestes eines sovint són aestadístiques, consisteixen en obtenir unes estimacions a partir de l aplicació de les definicions dels paràmetres però sense acompanyar-les d intervals de confiança, nivells de significació, etc., ja que de fet s han desenvolupat per aplicar-les a sistemes físics senzills en els quals el nombre de dades es pot fer prou gran perquè tot això sigui innecessari; res a veure amb l ecologia. És clar que s estan desenvolupant algunes eines amb la intenció de cobrir aquest buit (Sugihara i May, 1990; Pueyo, 1997). Però de moment, l ecologia teòrica així entesa està en expansió sense esperar el contrapunt empíric, conformant-se amb els estudis de casos virtuals, que poden anar molt més de pressa que els estudis de casos reals. El resultat és la generació d una gran literatura composta de possibilitats potencials a l espera de trobar alguna contrapartida en el món real. Mancada de filtres empírics, bona part de l ecologia teòrica es manté de fet en un estadi d ecologia hipotètica.
L ECOLOGIA DEL CANVI GLOBAL Malgrat la importància d enfortir la teoria ecològica per afrontar els problemes ambientals globals, no es pot esperar a encarars hi fins que estigui més desenvolupada, cal fer el que es pugui ja amb les eines actuals. Cal copsar tan bé com se sàpiga el que està passant i el què s hi pot fer. Això s està acomplint més en uns temes que en altres, generant-se contrastos sorprenents. Es pot citar com a casos paradigmàtics el canvi climàtic i la degradació dels sòls. Els estudis sobre el canvi climàtic i com s hi imbriquen els ecosistemes estan rebent una atenció i un finançament apreciable. Però s han de fer dos matisos. En primer lloc, apreciable vull dir per als estàndards ecològics, però sens dubte el finançament seria molt millor si aquests coneixements fessin falta per a alguna pel·lícula de Hollywood en comptes de jugar-nos-hi tan sols el futur del planeta. En segon lloc, dóna la impressió que l eficàcia en l ús dels fons és baixa perquè en moltes ocasions el canvi climàtic és més un pretext per aconseguir subvencions que no pas la preocupació real dels equips d investigació agraciats. Lluny dels matisos que es poden buscar en el cas del canvi climàtic, l interès en la qüestió de la degradació dels sòls sembla senzillament inexistent. De manera excepcional, la revista Science va publicar el 1995 un article que feia una revisió sobre el tema (Pimentel et al., 1995a). L article va desencadenar una breu discussió epistolar (Crosson, 1995; Pimentel et al. 1995b) en la qual es posaven de manifest desacords en qüestions com ara si la proporció de sòl agrícola mundial sotmès a erosió de moderada a greu és del 25 % o és del 80 %! (recomanació: torneu a llegir els tants per cent per assimilar l ordre de magnitud en què ens movem i respireu a fons). És vergonyós que en l era espacial no només no puguem assegu-
EL LABERINT ECOLÒGIC 287
rar el futur de l alimentació (ni el present a bona part del món, per motius distributius) sinó que ni tan sols ens prenguem la molèstia d obtenir la mínima informació bàsica sobre el tema. D altra banda, es poden estar desencadenant molts problemes ambientals que a hores d ara ni tan sols coneixem. Myers (1995b) fa notar la necessitat d estimular els estudis exploratoris, acadèmicament més arriscats que els que es dediquen a temes ja més o menys coneguts. COM A CONCLUSIÓ El Minotaure dels problemes ambientals globals es va engrandint per moments, i si el coneixement ecològic ha de ser el fil d Ariadna que ens indiqui què hem de fer caldria que ens anéssim preocupant seriosament de desentortolligar-lo. AGRAÏMENTS Tot i que em dec oblidar algú, vull agrair comentaris que m han estat útils de David Alonso, Oriol Bosch, Jordi Flos, Emilia Gutiérrez, Olga Invers, Marta Manzanera, Josep Anton Morguí, Marc Plans, Pere Renom, Miquel Àngel Rodríguez-Arias, Francesc Sabater i Laia C. Viñolas. REFERÈNCIES ARROW, K.; B. BOLIN; R. COSTANZA; P. DASGUPTA; C. FOLKE; C. S. HOLLING; B. O. JANSSON; S. LEVIN; K. G. MALER; C. PERRINGS; D. PIMENTEL (1995). «Economic growth, carrying capacity and the environment». Science, núm. 268, pàg. 520-521. BASCOMPTE, J. (1995). «Buscant l ordre ocult dels sistemes biològics». A: FLOS, J. Ordre i caos en ecologia. Barcelona: Publicacions Universitat de Barcelona, pàg. 131-170. BINSWANGER, M. (1993). «From microscopic to macros-
copic theories: entropic aspects of ecological and economic processes». Ecol. Econ., núm. 8, pàg. 209234. BLUMENTHAL, D.; E. G. CAMPBELL; M. S. ANDERSON; N. CAUSINO; K. S. LOUIS (1997). «Withholding research results in academic life-science Evidence from a national survey of faculty». JAMA, núm. 277, pàg. 1224-1228. CONSTANTINO, R. F.; R. A. DESHARNAIS; J. M. CUSHING; B. DENNIS (1997). «Chaotic dynamics in an insect population». Science, núm. 275, pàg. 389-391. COTTERILL, F. P. D.; J. M. DONGERFIELD (1997). «The state of biological knowledge». TREE, núm. 12, pàg. 206. CROSSON, P. (1995). «Soil erosion estimates and costs». Science, núm. 40, pàg. 461-464. FLOS, J.; E. GUTIÉRREZ (1995). «Caos en ecologia: alguna cosa més que un nou argot?». A: Flos, J. Ordre i caos en ecologia. Barcelona: Publicacions Universitat de Barcelona, pàg. 185-236. GACIA, E. (1992). «Ecologia dels macròfits submergits dels estanys del Pirineu: estructura i dinàmica de les poblacions de l estany Baciver (Vall d Aran)». Tesi doctoral, Universitat de Barcelona. GARDNER, W.; J. ROSEMBAUM (1998). «Database protection and access to information». Science, núm. 281, pàg. 786-787. GEORGESCU-ROEGEN, N. (1971). «The entropy law and the economic process». Cambridge: Harvard Univ. Press. GUASCH, H. (1995). «Producció primària dels biofilms epilítics en rius de règim mediterrani». Tesi doctoral, Universitat de Barcelona. HANSKI, I.; P. TURCHIN; E. KORPIMÄKI; H. HENTTONEN (1993). «Population oscillations of boreal rodents: regulation by mustelid predators leads to chaos». Nature, núm. 364, pàg. 232-235. HASTINGS, A.; C.L. HOM; S. ELLNER; P. TURCHIN; H.C.J. GODFRAY (1993). «Chaos in Ecology: Is Mother Nature a Strange Attractor?». Annu. Rev. Ecol. Syst., núm. 24, pàg. 1-33. MARGALEF, R. (1963). «On certain unifying principles in ecology». Am. Nat., núm. 97, pàg. 357-374. MARGALEF, R. (1968). «Perspectives in ecological theory». The University of Chicago. MARGALEF, R. (1971). «Les lleis d organització de la Biosfera, les necessitats i l esdevenidor de l home dins d ella». A: MARGALEF, R. Cap on va la Biologia moderna? Barcelona: Societat Catalana de Biologia, pàg. 77-93. MARGALEF, R. (1980). La Biosfera entre la termodinámica y el juego. Barcelona: Omega. MARTÍ, E. (1995). «Dinàmica dels nutrients en dos rius mediterranis de característiques fisiogràfiques diferents». Tesi doctoral, Universitat de Barcelona. MARTÍNEZ ALIER, J. (1994). De la economía ecológica al ecologismo popular. Barcelona: Icaria i FUHEM.
288 S. PUEYO MAY, R. M. (1973). Stability and complexity in model ecosystems. Princenton Univ. Press. MAY, R. M. (1974). «Biological Populations with Nonoverlapping Generations: Stable Points, Stable Cycles and Chaos». Science, núm. 186, pàg. 645-647. MCGRADY-STEED, J.; P. M. HARRIS; P. J. MORIN (1997). «Biodiversity regulates ecosystem predictability». Nature, núm. 390, pàg. 162-165. MÜLLER, F. (1997). «State-of-the-art in ecosystem theory». Ecol. Model., núm. 100, pàg. 135-161. MYERS, N. (1995a). «The world s forests: need for a policy appraisal». Science, núm. 268, pàg. 823-824. MYERS, N. (1995b). «Environmental unknowns». Science, núm. 269, pàg. 358-360. NAEEM, S.; S. LI (1997). «Biodiversity enhances ecosystem reliability». Nature, núm. 390, pàg. 507-509. NICOLIS, G.; I. Prigogine (1977). Self-organization in nonequilibrium systems. From dissipative structures to order through fluctuations. Nova York: John Wiley & Sons. ODUM, E. P. (1969). «The strategy of ecosystem development». Science, núm. 164, pàg. 262 270. ODUM, H. T.; R. C. PINKERTON (1955). «Time s speed regulator: the optimum efficiency output in physical and biological sciences». Am. Sci., núm. 43, pàg. 331-343. PETERS, R. H. (1991). A critique for ecology. Cambridge Univ. Press. PIMENTEL, D.; C. HARVEY; P. RESOSUDARMO; K. SINCLAIR; D. KURZ; M. MCNAIR; S. CRIST; L. SHPRITZ; L. FITTON; R. SAFFOURI; R. BLAIR (1995a). «Environmental and economic costs of soil erosion and conservation benefits». Science, núm. 267, pàg. 1117-1123. PIMENTEL, D.; C. HARVEY; P. RESOSUDARMO; K. SINCLAIR; D. KURZ; M. MCNAIR; S. CRIST; L. SHPRITZ; L. FITTON; R. SAFFOURI; R. BLAIR (1995b). «Reply». Science, núm. 269, pàg. 464-465.
PIMM, S.L.; G.J. RUSSELL; J.L. GITTLEMAN; T.M. BROOKS (1995). «The future of biodiversity». Science, núm. 269, pàg. 347-350. POSTEL, S.L.; G.C. DAILY; P.R. EHRLICH (1996). «Human appropiation of renewable fresh water». Science, núm. 271, pàg. 785-788. PUEYO, S. (1997). «The study of chaotic dynamics by means of very short time series». Physica D, núm. 106, pàg. 57-65. PUEYO, S. (1999). «Biological irreversibility». Sotmès. SALMON, M. H.; J. EARMAN; C. GLYMOUR; J. G. LENNOX; P. MACHAMER; J. E. MCGUIRE; J. D. NORTON; W. C. SALMON; K. F. SCHAFFNER (1992). Introduction to the philosophy of science. Englewood Cliffs: Prentice Hall. SUGIHARA, G.; R. M. MAY (1990). «Nonlinear forecasting as a way of distinguishing chaos from measurement error in time series». Nature, núm. 344, pàg. 734-741. TILMAN, D.; D. WEDIN (1991). «Oscillations and chaos in the dynamics of a perennial grass». Nature, núm. 353, pàg. 653-655. TILMAN, D.; D. WEDIN; J. KNOPS (1996). «Productivity and sustainability influenced by biodiversity in grassland ecosystems». Nature, núm. 379, pàg. 718-720. VITOUSEK, P.M.; P.R. EHRLICH; A.H. EHRLICH; P.A. MATSON (1986). «Human appropiation of the products of photosynthesis». BioScience, núm. 36, pàg. 368373. VITOUSEK, P.M.; H.A. MOONEY; J. LUBCHENCO; J.M. MELILLO (1997). «Human domination of Earth s ecosystems». Science, núm. 277, pàg. 494-499. WESTOBY, M. (1997). «What does ecology mean?». TREE, núm. 12, pàg. 166. WMO; UNEP (1996). «Climate Change 1995. The science of climate change».
SOCIETAT CATALANA DE BIOLOGIA
CONSELL DIRECTIU PER AL CURS 1997-1998 President: Vicepresident 1r: Vicepresident 2n: Secretària general: Vicesecretària: Tresorer: Vocal 1r, lexicografia: Vocal 2a, recerca: Vocal 3r, sessions: Vocal 4t, relacions exteriors: Vocal 5è, publicacions: Vocal 6è, estudiants: Delegat al IEC:
Ramon Bartrons i Bach Jaume Bertranpetit i Busquets Lluís Cornudella i Mir Cristina Junyent i Rodríguez Anna Maria Gómez i Foix Antoni Fernández-Tiburcio Mercè Piqueras i Carrasco Pilar Aluja i París Montserrat Vendrell i Rius Xavier Pastor i Duran Francesca Vidal i Domínguez Cristian Miguel Cañestro Carles Bas i Peired
NOMBRE DE SOCIS: 1.580
SECCIONS ESPECIALITZADES: La Societat Catalana de Biologia conté les seccions especialitzades següents: Secció d Antropologia Biològica Secció de Biofísica Secció de Biologia del Desenvolupament Secció de Biologia Molecular Secció de Biologia de la Reproducció Secció d Ecologia Secció d Endocrinologia Experimental
Secció d Enzimologia i Regulació Metabòlica Secció de Fisiologia Vegetal Secció d Hepatologia Bàsica i Experimental Secció d Immunologia Experimental Secció de Microbiologia Secció de Neurobiologia Experimental Secció d Oncologia Experimental Secció d Estudiants Secció de la SCB a Lleida Secció de la SCB a les Comarques de Tarragona Secció de la SCB a València
Treballs de la SCB. Vol. 50 (2000) 291-304
RESUM DE LES SESSIONS CIENTÍFIQUES
1 d octubre de 1997 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona La unión de proteinas de la heterocromatina depende del ciclo celular J. SUSO PLATERO, Haward Hughes Medical Institute, Fred Hutchinson Cancer Research Center, Seattle, EUA 6 d octubre de 1997 Aula de graus, Facultat de Biologia, UB, Barcelona Anfibios y planarias: modelos para descifrar las bases moleculares de la regeneración ALEJANDRO SÁNCHEZ ALVARADO, Dept. Embriology, Carnegie Institution, Baltimore, EUA 8 d octubre de 1997 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona El factor de crecimiento para fibroblastos: estudios estructurales e ingeniería de proteínas con vistas a posibles aplicaciones clínicas GUILLERMO GIMÉNEZ, CIB, CSIC, Madrid 9 d octubre de 1997 Aula del Servei de Ginecologia, HCP, UB, Barcelona Patologia tiroïdal relacionada amb el receptor de TSH ROSER CASAMITJANA, Servei d Hormonologia, HCP, UB 15 d octubre de 1997 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Interacción de la histona H5 con el nucleosoma FERMÍN GOYTISOLO, Dept. Biochemistry, Cambridge University, Regne Unit
22 d octubre de 1997 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona DNA-modified electrodes: new tools in DNA analysis, molecular recognition and detection of DNA damage EMIL PALECEK, Inst. de Biofísica. Academia de Ciències de la República Txeca, Brno, Txèquia 27 d octubre de 1997 Sala d actes, HCP, UB, Barcelona Mecanismes d acció del TGFb JOAN MASSAGUÉ, Memorial Sloan-Kettering Cancer Center, Howard Hughes Medical Institute, Nova York, EUA 29 d octubre de 1997 Sala de reunions del DCMB, Facultat de Medicina, UdL, Lleida L estimulació per agonistes dels receptors NMDA de les motoneurones en desenvolupament provoca, alternativament, efectes excitotòxics o bé neurotròfics JERÒNIA LLADÓ, DCMB, Facultat de Medicina, UdL 3 de novembre de 1997 Sala d actes, HCP, UB, Barcelona Paper de la calmodulina en la regulació de l activitat MAP quinasa MARTA BOSCH, Dept. de Biologia Cel·lular, Fac. de Medicina, UB 7 de novembre de 1997 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Integrinas y morfogénesis en Drosophila MARÍA DOLORES MARTÍN-BERMUDO, Wellcome/CrC Institute, Regne Unit
292 SESSIONS CIENTÍFIQUES
17 de novembre de 1997 Sala d actes, HCP, UB, Barcelona Molecular mechanisms of glucocorticoid action in asthma PETER J. BARNES, National Heart and Lung Institute, Londres, Regne Unit 18 de novembre de 1997 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona El genoma de l anfiox: cruïlla evolutiva o cul-desac? JORDI GARCÍA-FERNÁNDEZ, Dept. de Genètica, Fac. de Biologia, UB 21 de novembre de 1997 Sala de reunions del DCMB, Facultat de Medicina, UdL, Lleida Papel de la p42 y p44 MAP-quinasas en la proliferación y diferenciación inducidas por IGF-1 e insulina en adipocitos marrones ALMUDENA PORRAS, Facultad de Farmacia, UCM, Madrid 24 de novembre de 1997 Sala d actes, HCP, UB, Barcelona Nivells circulants de metal·loproteïnases i els seus inhibidors en la fibrosi hepàtica alcohòlica AMÈRICA GIMÉNEZ, Unitat d Hepatologia, Fundació Clínic, Barcelona 3 de desembre de 1997 Sala d Actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Biliverdin reductases A and B; are these enzymes involved in tetrapyrrole signalling? TIM MANTLE, Trinity College, Dublín, Irlanda 3 de desembre de 1997 Sala de reunions del DCMB, Facultat de Medicina, UdL, Lleida Metilació del DNA: un mecanisme de memòria de la cèl·lula bacteriana JOSEP CASADESÚS, Fac. de Biología, Universidad de Sevilla
19 de desembre de 1997 Aula de graus, Facultat de Biologia, UB, Barcelona El Niño-Southern oscillation: noves teleconnexions extratropicals. Mecanismes per a una resposta a latituds mitjanes XAVIER RODÓ, Dept. d Ecologia, Fac. de Biologia, UB 22 de desembre de 1997 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Isolation and characterization of ESD4, a gene that delays flowering in Arabidopsis thaliana GIOVANNI MURTAS, John Innes Centre, Norwich, Regne Unit 23 de desembre de 1997 Aula III, Facultat de Farmàcia, UB, Barcelona Bases moleculars de l acció de les poliamines en el desenvolupament vegetal ROSA FARRÀS, Max-Planck Institute, Colònia, Alemanya 14 de gener de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Funció del receptor de llum fitocrom B en el control fotoperiòdic de la tuberització: Implicació de les hormones gibberel·lines en el procés d inducció SALOMÉ PRATS, CID-CSIC, Barcelona 15 de gener de 1998 Aula del Servei de Ginecologia, HCP, UB, Barcelona Receptors d andrògens: el seu paper en la síndrome de Morris, el càncer de pròstata i la malaltia de Kennedy JOSEP ORIOLA, Servei d Hormonologia, HCP 16 de gener de 1998 Sala d actes, Institut de Ciències del Mar, Barcelona Simbiosis y evolución
SESSIONS CIENTÍFIQUES 293
LYNN MARGULIS, University of Massachusetts-Amherst, EUA 23 de gener de 1998 Sala Albertí, monestir de Sant Feliu de Guíxols (Baix Empordà) Biomecànica de la columna vertebral Estudi del raquis CONCEPCIÓ AVIÑÓ, Servei de Rehabilitació, Hospital de Palamós Control postural del raquis MONTSERRAT ALCAÑIZ, Hospital de Palamós Ortesis i ajudes físiques per a la columna vertebral EMI SALLÉS, Hospital de Palamós 28 de gener de 1998 Sala de reunions del DCMB, Facultat de Medicina, UdL, Lleida Estudi de la plasticitat de les unions neuromusculars regulada per determinants neuronals intrínsecs OLGA TARABAL, Facultat de Medicina, UdL 2 de febrer de 1998 Aula de graus, Facultat de Biologia, UB, Barcelona Anàlisi i interpretació de la variació genètica de STR en poblacions humanes ANNA PÉREZ, Unitat d Antropologia, Fac. Biologia, UB Microsatelite allelic homoplasy due to variable flanking sequences BRIGITTE CROUAU-ROY, Universitat Paul Sabatier, Toulouse, França 6 de febrer de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Modelo transgénico tumoral por sobreexpresión de N-ras y su utilización en terapia
RAMON MANGUES, Laboratori d Investigació Gastrointestinal, Institut de Recerca de l Hospital de Sant Pau 12 de febrer de 1998 Aula del Servei de Ginecologia, HCP, UB, Barcelona Receptor de vitamina D i osteoporosi M. JESÚS MARTÍNEZ, Servei d Hormonologia, HCP 13 de febrer de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Regulación del crecimiento y de la muerte celular programada durante el desarrollo del oído interno: IGF-I versus NGF ISABEL VALERA, IIB-CSIC, Madrid 13 de febrer de 1998 Aula de reologia, Dept. Mecànica de Fluids, ETSEI, UPC, Barcelona Fluids amb memòria i models estructurals tixotròpics RICARD TORRES, Dept. de Mecànica de Fluids, UPC 17 de febrer de 1998 Sala de reunions del DCMB, Facultat de Medicina, UdL, Lleida Inhibición de la síntesis de proteínas durante el envejecimiento: papel de los radicales libres ANTONIO AYALA, Facultad de Farmacia, Universidad de Sevilla 19 de febrer de 1998 Aula Magna, Facultat de Medicina i Ciències de la Salut, URV, Tarragona Origen i evolució de la vida i dels ecosistemes RICARD GUERRERO, Dept. de Microbiologia, UB Amb aquesta conferència, s inicien les activitats d aquesta secció.
294 SESSIONS CIENTÍFIQUES
20 de febrer de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona De Warburg a Racker, con pasajes de ida y vuelta. Estudios in vivo sobre la utilización de glucosa en oocitos de anfibio TITO URETA, Universidad de Chile, Santiago, Xile 27 de febrer de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Glucose-6-phosphatase and cell calcium homeostasis ANGELO BENEDETTI, Inst. de Patologia General, Univ. di Siena, Itàlia Febrer-març de 1998 Sala de juntes, Facultat de Medicina, UB, Barcelona Neurociències clíniques: una visió interdisciplinària de les malalties del sistema nerviós 2n Cicle de Conferències de l Associació d Estudiants de Neurociències de la UAB 4 de març de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona p532: Desde un oncogén a un factor intercambiador de nucleótidos de guanina involucrado en tráfico intracelular JOSÉ LUIS ROSA, Dept. Ciències Fisiològiques, UB 5 de març de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Regulation of storage protein genes in lepidopteran insects KRISHNA KUMARAN, Marquette University, Milwaukee, Wisconsin, EUA
5 de març de 1998 Aula del Dept. d Ecologia, Facultat de Biologia, UB, Barcelona Dinàmica de boscos tropical AGUSTÍN LOBO, Institut Jaume Almera, CSIC, Barcelona 6 de març de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Identificació computacional de gens en seqüències de DNA RODERIC GUIGÓ, IMIM, Barcelona 6 de març de 1998 Sala de reunions del DCMB, Facultat de Medicina, UdL, Lleida El ciclo celular secretor y su importancia en la regulación de la función endocrina MARÍA DEL MAR MALAGÓN, Dpto. de Biología Celular, Universidad de Córdoba. Cuantificación en tiempo real de la expresión del gen de prolactina en células adenohipofisarias individuales vivas JUSTO P. CASTAÑO, Dpto. de Biología Celular, Universidad de Córdoba. 9 de març de 1998 Aula Magna, Facultat de Medicina i Ciències de la Salut, URV, Tarragona La diversitat del genoma humà i la història de les poblacions JAUME BERTRANPETIT, Dept. d Antropologia, UB 11 de març de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Molecular approaches to study lignification JACQUELINE GRIMA-PETTENATI, Université Paul Sabatier, Tolosa de Llenguadoc, França
SESSIONS CIENTÍFIQUES 295
11 de març de 1998 Aulari del Campus de Bellvitge, UB, l Hospitalet de Llobregat Neurotransmissió inhibidora en la musculatura circular del budell MARCEL JIMÉNEZ, Dept. Biologia Cel·lular i Fisiologia, Fac. de Veterinària, UAB, Bellaterra
25 de març de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Regulació coordinada de trànscrits que inclouen seqüències repetitives de la família Alu. Tenen algún paper els Alu? ESTANIS NAVARRO, IMIM, Barcelona.
12 de març de 1998 Sala A, ACMCB, Barcelona Conferència sobre mecanismes fisiopatològics de les malalties autoinmunitàries endocrines RICARD PUJOL BORRELL, Hospital Germans Trias i Pujol, Badalona
26 de març de 1998 Sala d actes, Casal del Metge, Barcelona Conferència sobre inhibidors del cicle cél·lular en oncologia CARLOS CORDÓN CARDO, Memorial Sloan Kettering Cancer Center, Nova York
13 de març de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Inactivació de les vies de TGF-beta en càncer de pàncrees GABRIEL CAPELLA, Lab. d Investigació Gastrointestinal, HSP, Barcelona
27 de març de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Alteracions de la transducció del senyal i dels reguladors del cicle cel·lular als linfomes ÀNGEL C. PELLICER, NYU, Nova York, EUA
18 de març de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona La ruta de retinoblastoma en plantas: implicaciones en el ciclo celular, crecimiento e infección por geminivirus CRISANTO GUTIÉRREZ, CBM-CSIC, Madrid 20 de març de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Heterologous transposon tagging strategies ANDY PEREIRA, CPRO-DLO, Wageningen, Holanda Trànsit de membranes en l endocitosi FERNANDO ANIENTO COMPANY, Dept. Bioquímica i Biologia Molecular, Fac. Farmàcia, UV
27 de març de 1998 Aula de reologia, Dept. Mecànica de Fluids, ETSEI, UPC, Barcelona Cinètica de degradació de medicaments JOSEP M. LÓPEZ BES, Dept. Fisicoquímica, Fac. de Farmàcia, UB PEDRO BAGO LÓPEZ, Laboratoris Garrigó 27 de març de 1998 Aula Magna, Facultat de Medicina i Ciències de la Salut, URV, Tarragona La pol·lució atmosfèrica i les vies respiratòries MERCÈ DURFORT, Biologia Cél·lular, Fac. de Biologia, UB 1 d abril de 1998 Sala de reunions del DCMB, Facultat de Medicina, UdL, Lleida Immunoreactivitat a c-jun i mort cel·lular programada VICTÒRIA AYALA, Fac. de Medicina, UdL
296 SESSIONS CIENTÍFIQUES
3 d abril de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Modulación de la gluconeogénesis hepática por insulina, glucosa y sulfonilureas en la rata Zucker (fa/fa) JUAN EMILIO FELIU, Depto. de Bioquímica y Biología Molecular, UAM. 16 d abril de 1998 Aula del Servei de Ginecologia, HCP, UB, Barcelona Resistència a l efecte pressor dels vasoconstrictors endògens en la cirrosi. Paper de l òxid nítric VLADIMIRO JIMÉNEZ, Servei d Hormonologia, HCP 17 d abril de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Resolución de estructuras de ácidos nucleicos en solución por NMR CARLOS GONZÁLEZ, Instituto de Estructura de la Materia, CSIC, Madrid 17 d abril de 1998 Sala de reunions del DCMB, Facultat de Medicina, UdL, Lleida The yeast CDK inhibitor Sic1 and the necessity to sharpen cell cycle transitions ETIENNE SCHWOB, Institute of Molecular Genetics, CNRS, Montpeller. França 22 d abril de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Comparative biology in prospect: reconstructing the past or implementing evolutionary models? PHILIPPE GRANDCOLAS, Laboratoire d Entomologie, Muséum National d Histoire Naturelle, París, França
24 d abril de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona. Intermediates and transition states in protein folding A. R. CLARKE, Dept. of Biochemistry, University of Bristol, Regne Unit 29 d abril de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Metabolitos y proteínas de defensa de plantas: efectos sobre el taladro del maíz PEDRO CASTAÑERA, CIB-CSIC, Madrid 6 de maig de 1998 Sala de reunions del DCMB, Facultat de Medicina, UdL, Lleida Activadores del plasminógeno en el proceso de la metástasis LOLA GARCIA, Fac. de Medicina, UdL 8 de maig de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona The keys to access chromatin: energy-dependent nucleosome remodeling PETER BECKER, European Molecular Biology Laboratoire, Heidelberg, Alemanya Retinoides y desarrollo cardiovascular: Análisis de modelos mutantes PILAR RUIZ-LOZANO, La Jolla, California, EUA 15 de maig de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Implicació del compartiment dels endosomes en el cicle de la caveolina a l hepatòcit CARLES ENRICH, Dept. de Biologia Cel·lular i Anatomia Patològica, UB The role of transposable elements in the structure and evolution of grass genomes
SESSIONS CIENTÍFIQUES 297
JEFFREY BENNETZEN, Purdue University, West Lafayette, Indiana, EUA 18 de maig de 1998 Aula de graus, Facultat de Biologia, UB, Barcelona Vida en la foscor: intimitat en les cavernes TOMÀS BARRANCO, Fac. de Biologia, UB 21 de maig de 1998 Aula Magna, Facultat de Química, URV, Tarragona Infeccions emergents i reemergents JOAN JOFRE, Dept. de Microbiologia, Fac. de Biologia, UB 22 de maig de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona JNK and p38 signaling in Drosophila STÉPHANE NOSELLI, Centre de Biologie du Développement, CNRS, Toulouse, França Mecanismos de inducción del gen vPA por factores de crecimiento y radiación ultravioleta PURA MUÑOZ, IRO, l Hospitalet de Llobregat 29 de maig de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Paper de la calmodulina en la fase G1 del cicle cel·lular NEUS AGELL, Dept. de Biologia Cel·lular i Anatomia Patològica, UB 3 de juny de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Motores y movimiento cromosómico en Drosophila PEDRO RIPOLL, CBM Severo Ochoa (CSICUAM), Madrid
4 de juny de 1998 Aula de graus, Facultat de Biologia, UB, Barcelona Differential gene expression in the planarian regeneration blastema PHILLIP ALLAN NEWMARK, Carnegie Institution of Washington, EUA 5 de juny de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Biosíntesi d isoprenoides en plantes: una via metabòlica per al segle XXI ALBERT BORONAT, Dept. de Bioquímica i Biologia Molecular, UB 10 de juny de 1998 Sala d actes, CID-CSIC. Jordi Girona, 18-26. Barcelona Análisis genético de la regulación del ciclo celular in vivo MARIANO BARBACID, Instituto Carlos III, Madrid 12 de juny de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Els discs imaginals de Drosophila: un model per aïllar gens que regulen la proliferació i la formació de patró MONTSERRAT COROMINES, Dept. de Genètica, UB 18 de juny de 1998 Aula de graus, Facultat de Biologia, UB, Barcelona Life-history evolution in a cyclic environment: some theory and the Ural owl JON BROMMER, Div. Population Biology, University of Helsinki 19 de juny de 1998 Aula del Departament de Bioquímica i Bio-
298 SESSIONS CIENTÍFIQUES
logia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona Papel de los inhibidores de ciclinas-cdks en el ciclo celular MANUEL SERRANO, Centro Nacional de Biotecnología, Madrid 26 de juny de 1998 Aula del Departament de Bioquímica i Biologia Molecular, 7a planta, Fac. de Química, UB. Martí i Franquès, 1. Barcelona El isoenzima bueno: ¿maniqueísmo científico o el camino hacia el fármaco perfecto? DAVID MAULEON, Laboratoris Menarini, Barcelona 30 de juny de 1998 Sala de reunions del DCMB, Facultat de Medicina, UdL, Lleida Bases moleculars de la cistinúria
VIRGINIA NUNES, IRO, l Hospitalet de Llobregat 9 de juliol de 1998 Sala de graus, Facultat de Ciències, UAB, Bellaterra Aldehyde Dehydrogenase: A journey from mitochondrial import to the active site as found from the three dimensional structure HENRY WEINER, Purdue University, West Lafayette, Indiana, EUA 9 de juliol de 1998 Aula de Fisiologia, Facultat de Farmàcia, UB, Barcelona Interaction of polyamines with cell components NELLO BAGNI, Dipartimento di Biologia Evoluzionistica Sperimentale, Università degli Studi di Bologna, Itàlia.
ALTRES ACTIVITATS Congressos i simposis 20 de març de 1998 Aula Magna, Facultat de Biologia, UB, Barcelona MINISIMPOSI: GENS DEL PATRÓ I DESENVOLUPAMENT Organitzat per la Secció de Biologia del Desenvolupament Coordinadors: JORDI GARCIA-FERNÀNDEZ, Dept. De Genètica, Fac. De Biologia, UB i SERGI GONZÀLEZ CRESPO, Dept. De Biologia Molecular i Cel·lular, CID, CSIC Del 8 al 12 de setembre de 1998 34TH ANNUAL MEETING OF THE EUROPEAN ASSOCIATION FOR THE STUDY OF DIABETES Palau de Congressos de Barcelona, Fira de
Montjuïc Organitza: Fundació DIABEM, Servei d Endocrinologia i Nutrició, HSCSP. Tel. 93 291 92 44 Cursos Del 26 al 30 de gener Aula 3, Facultat de Farmàcia, UB, Barcelona ASSAIGS BIOLÒGICS EN INVESTIGACIÓ DE PRODUCTES NATURALS Curs teoricopràctic. Organitza: Secció de Fisiologia Vegetal. Coordinador: CARLES CODINA, Unitat de Fisiologia Vegetal, Fac. Farmàcia, UB Desenvolupament i aplicacions d immunoassaigs PILAR MARCO, CID-CSIC, Barcelona
SESSIONS CIENTÍFIQUES 299
Realism and perspectives of immunomodulatory plant drug research RUDI P. LABADIE, Dept. Química Mèdica, Universitat d Utrecht, Holanda Química y actividad biológica de plantas alimenticias y medicinales chilenas GILLERMO SCHMEDA, Instituto de Química de Recursos Naturales, Universidad de Talca, Xile Metodologías para la evaluación de la actividad antioxidante ALFREDO ROSAS, Dept. de Química, Universidad Simón Bolívar, Caracas, Veneçuela Antiprotozoal natural products COLIN W. WRIGHT, Universitat de Bradford, West Yorkshire, Regne Unit Del 3 al 13 de febrer de 1998 Sala de graus, Facultat de Biologia, UB, Barcelona IX CURS SOBRE AVENÇOS EN L ESTUDI DEL METABOLISME (Curs de Doctorat) Coordinadors: RAMON BARTRONS, EMILI ITARTE, MANUEL PALACÍN, XAVIER TESTAR, ANTONI ZORZANO 25, 26 de febrer i 4, 5 de març de 1998 Sala de graus, Facultat de Biologia, UB, Barcelona CURS D ESPECIALITZACIÓ I POSTGRAU: CURS CIRIT-IEC SOBRE RECONSTRUCCIÓ DE L EVOLUCIÓ: FILOGÈNIES DEL DNA Professors: MONTSERRAT AGUADÉ, HANS BANDELT, FRANCESC CALAFELL, JOSEP FORTIANA JULIO ROZAS, NAOYUKI TAKAHATA Coordinadors: MONTSERRAT AGUADE, UB. JAUME BERTRANPETIT, UB
De març a juny de 1998 Aula d informàtica 5, Facultat de Biologia, UB, Barcelona II CURS BÀSIC DE PROGRAMACIÓ EN LLENGUATGE C Organitza: Secció d estudiants de la SCB Professor: GREGORIO LUQUE Del 25 al 28 de maig de 1998 Delta de l Ebre 8è CURS AVANÇAT D ECOLOGIA MICROBIANA (Curs d Especialització i Postgrau) Professors: ISABEL ESTEVE, UAB; NÚRIA GAJU, UAB; STEVE GOODWIN, UMASS, Amherst, EUA; MARY ROTHERMICK, UMASS, Amherst, EUA. Director del curs: RICARD GUERRERO, UB. Del 8 al 10 de juny de 1998 Institut de Ciències del Mar, CSIC, Barcelona CURS D AQÜICULTURA DE BIVALVES A MÈXIC Professor: CARLOS CÁCERES MARTÍNEZ, Estación Experimental de Acuicultura, Universidad Autónoma de Baja California Sur, Mèxic. Coordinadora: ROSA FLOS, Institut de Ciències del Mar Seminaris 6 de novembre de 1997 Sala d actes, Hospital Joan XXIII, Tarragona SEMINARI EN IMMUNOAL·LÈRGIA Organitza: Secció d Immunologia Experimental Genètica de l al·lèrgia CARLOS LAHOZ, Servicio de Inmunología, Fundación Jiménez Díaz, Madrid
300 SESSIONS CIENTÍFIQUES
Factors ambientals de l al·lèrgia PILAR GARCÍA ORTEGA, Unitat d Al·lèrgia, Hospital Joan XXIII, Tarragona 18 de novembre de 1997 Aula de formació, CINET, Edifici FCR, Barcelona MICROBIOLOGIA A INTERNET Coordinador: JORDI MAS-CASTELLÀ Avaluació de la informació disponible a Internet. MERCÈ PIQUERAS, SCB Internet: eines de laboratori per al microbiòleg JOSÉ M. NIETO, Dept. Microbiologia, UB La diversitat del món microbià per Internet JORDI MAS GORDI, Dept. Genètica i Microbiologia, UAB 2, 10 i 16 de desembre de 1997 Biblioteca Unitat de Fisiologia Mèdica, Facultat de Medicina, UAB, Bellaterra 12è CICLE DE SEMINARIS: ASPECTES GENERALS I D INVESTIGACIÓ BÀSICA EN CÀNCER DE MAMA Organitza: Grup Multidisciplinari per a l Estudi del Càncer de Mama
22 de desembre de 1997 Aula Magna, Facultat de Farmàcia, UB, Barcelona SEMINARIS SOBRE POLIAMINES I ALCALOIDES TROPÀNICS Organitza: Secció de Fisiologia Vegetal Polyamine transport in plants NELLO BAGNI, Dipartimento di Biologia Evoluzionistica Sperimentale, Università degli Studi di Bologna, Itàlia Regulation of tropane alkaloid biosynthesis in Hyoscamus muticus KIRSI-MARJA OKSMAN-CALDENTEY, Dept. Of Pharmacy, University of Helsinki, Finlàndia 27 de febrer de 1998 Dept. de Ciències Mèdiques Bàsiques, UdL, Lleida FRONTERAS EN NEUROGENÉTICA Organitzat per la Sociedad Española de Genética en col·laboració amb el Departament de Ciències Mèdiques Bàsiques de la Universitat de Lleida
Estratègies de la biologia molecular en el valor pronòstic i la quimioresistència del càncer MARIA MONZÓ, Servei d Oncologia Mèdica. Hospital Germans Trias i Pujol, Badalona
De març a juny de 1998 Biblioteca de Ciències, Campus Burjassot, UV, València LA INFLUÈNCIA DE MALTHUS EN L OBRA DE DARWIN Organitza: Secció de la SCB a València
Alteracions de molècules reguladores del cicle cel·lular en la progressió de tumors humans ELÍAS CAMPO, Servei Anatomia Patològica, HCP. Dept. de Biologia Cel·lular i Anatomia Patològica, UB
The new neodarwinian synthesis of microevolution and macroevolution DOUGLAS FUTUYMA, Dept. Of Ecology and Evolution. State University of New York, EUA
Absorció, transport i metabolisme de retinoides XAVIER PARÉS, Dept. de Bioquímica i Biologia Molecular, UAB, Bellaterra
Malthus i els models demoeconòmics actuals ROSER NICOLAU, Dept. d Història Econòmica, UAB
SESSIONS CIENTÍFIQUES 301
The human ecological niche and history. Ecological causes of societal troubles PAUL COLINVAUX, Smithsonian Tropical Research Institute, Panamà Malthus and evolution: two centuries of influence MICHAEL RUSE, Dept. of Philosophy. University of Guelph, Ontario, Canadà Darwin with and without Malthus ELLIOT SOBER, Dept. Of Philosophy, Univ. of Wisconsin, EUA 11 de maig de 1998 Sala d actes, Campus de Bellvitge, UB, l Hospitalet de Llobregat ESTIMULACIÓN DIFERENCIAL DE LAS GTPASAS RHO POR ONCOPROTEINAS DE LA FAMILIA VAV XOSE BUSTELO, Dept. of Pathology, SUNY, Stony Brook, EUA Seminari organitzat per la Xarxa de Tràfic Intracel·lular de Proteïnes i la Societat Catalana de Biologia 15 de maig de 1998 Auditori de Lletres, Facultat de Psicologia, UAB, Bellaterra 2a TROBADA NEUROCIENTÍFICA DE LA UAB Organitzat per: l Associació d Estudiants de Neurociències de la UAB 8 de juny de 1998 Facultat de Biologia, UB, Barcelona Asimetrías en las hebras del DNA ANTONIO MARÍN, Depto. de Genética, Universidad de Sevilla 18 i 19 de juny Aula de graus, Facultat de Biologia, UB, Barcelona SEMINARIS A LA FACULTAT DE BIOLOGIA DE LA UB
Coordina: EDUARDO SORIANO, Cel·lular, Fac. de Biologia, UB
Biologia
El problema de la regeneración de los circuitos del cerebelo CONSTANTINO SOTELO, Iserm U-106, Hospital de la Salpetriere, París, França Los circuitos neuronales de la corteza cerebral durante el desarrollo: análisis con FURA-2 RAFAEL YUSTE, Columbia University, Nova York, EUA 16 i 17 de juny de 1998 Palau Maricel de Sitges VI SEMINARI CONJUNT DE LES SECCIONS DE BIOLOGIA MOLECULAR I DE BIOLOGIA DEL DESENVOLUPAMENT Coordinadors: JORDI GÓMEZ, F. XAVIER GOMISRÜTH, IMMA PONTE, VIRGINIA STIEFEL 4 de juny de 1998 Aula de graus, Facultat de Biologia, UB, Barcelona CICLE CEL·LULAR, APOPTOSI I CÀNCER El resveratrol indueix apoptosi en cèl·lules tumorals NEUS CARBÓ, Dept. de Bioquímica i Biologia Molecular, UB Activació de les caspases en les cèl·lules de la leucemilimfàtica crònica de tipus B BEATRIZ BELLOSILLO, Unitat d Hematopatologia, HCP La inhibició de la calmodulina indueix l activació sostinguda d ERK2 i l expressió de p21 NEUS AGELL, Dept. de Biologia Cel·lular i Anatomia Patològica, UB Alteracions de la maquinària reguladora del cicle cel·lular en el càncer colorectal i pancreàtic
302 SESSIONS CIENTÍFIQUES
ORIOL BACHS, Dept. de Biologia Cel·lular i Anatomia Patològica, UB
Nutrició adequada al creixement ROSA MARIA RUSTULLET
Aspirina i antiinflamatoris no esteroïdals en la prevenció del càncer de còlon ESTHER CASTAÑO, Dept. de Ciències Fisiològiques II, Fac. d Odontologia, UB
Del 13 al 16 de juliol de 1998 Aula Magna de l Edifici Central de la UB, Barcelona LA RECERCA QUE FEM Jornades divulgatives sobre la recerca que es desenvolupa al Departament de Bioquímica i Biologia Molecular de la UB Organitzat per: Dept. de Bioquímica i Biologia Molecular, UB i Secció de Biologia Molecular de la SCB. Amb el suport de la FCR i de la SEBBM
Contribució de les citoquines a l organoespecificitat de les metàstasis ÀNGELS SIERRA, Dept. de Càncer i Metàstasis, IRO, l Hospitalet de Llobregat JORNADES 21 de novembre de 1997 Auditori Novartis, Barcelona XI JORNADA D ACTUALITZACIONS I AVENÇOS EN IMMUNOLOGIA Organitza: Societat Catalana d Immunologia 20 i 21 d abril de 1998 Sala Prat de la Riba, IEC JORNADES CIENTÍFIQUES IEC: RESPOSTES AL CLONATGE HUMÀ Moderadors: MERCÈ DURFORT, IEC i UB; MARIA CASADO, UB; JOSEP GONZÁLEZ-AGÀPITO, IEC i UB Coordinadors: JOSEP EGOZCUE, IEC i UAB; FRANÇOISE SHENFIELD, UCL, Regne Unit Organizat per la Secció de Ciències Biològiques del IEC 22 de maig de 1998 Sala 1r pis monestir de Sant Feliu de Guíxols (Baix Empordà) IX JORNADES DE BIOFÍSICA I REOLOGIA APLICADA: «BIOFÍSICA NUTRICIONAL» Organitza: Secció de Biofísica de la Societat Catalana de Biologia El magnesio en la alimentación ANA MARÍA LAJUSTICIA
Els nous gens de l obesitat FRANCESC VILLARROYA, Dept.de Bioquímica i Biologia Molecular, UB Alcohol y gestación DOLORES LÓPEZ, Dept.de Bioquímica i Biologia Molecular, UB Biotecnologia vegetal: Com seran les plantes del futur? ALBERT BORONAT, Dept.de Bioquímica i Biologia Molecular, UB Nuevas armas para la lucha contra el SIDA RAFAEL FRANCO, Dept.de Bioquímica i Biologia Molecular, UB Del 20 al 24 d agost de 1998 UCE, Prada de Conflent UNIVERSITAT CATALANA D ESTIU VII JORNADES DE BIOLOGIA Activitat organitzada per la UCE i la SCB Tema: DNA I SOCIETAT 1. Principis bàsics: estructura i funció del DNA 2. Malalties d origen genètic i teràpies genètiques 3. Gens i societat Coordinen: RAMON BARTRONS i JAUME BERTRANPETIT
SESSIONS CIENTÍFIQUES 303
SESSIONS EXTRAORDINÀRIES 12 de novembre de 1997 Aula Magna, Facultat de Biologia, UB, Barcelona LA SINAPSI: CENT ANYS Genèsi i evolució del concepte de sinapsi JOSEP ESQUERDA, DCMB, Fac. De Medicina, UdL Formación de la sinapsis: quimiotropismo y quimioafinidad, cien años después EDUARDO SORIANO, Dept. de Biologia Cel·lular, Animal i Vegetal, Fac. de Biologia, UB Les neurotoxines, substàncies mortíferes que ajuden a entendre la sinapsi JOAN BLASI, Dept. De Biologia Cel·lular i Anatomia Patològica, Fac. De Medicina, UB 20 de novembre de 1997 Aula Magna, Facultat de Biologia, UB, Barcelona ASPIRINA: FÀRMAC DEL SEGLE XXI Coordina: MERCÈ DURFORT, Secció de Ciències Biològiques, IEC Breu revisió històrica d un fàrmac molt familiar GLÒRIA PUEYO, Dept. Mèdic i de Comunicació, Bayer Aplicacions de l aspirina en la prevenció del càncer RAMON BARTRONS, Dept. Ciències Fisiològiques, Fac. de Medicina, UB 3 de desembre de 1997 Aula Magna, Facultat de Biologia, UB LES ILLES DEL MAL TEMPS (UNA EXPEDICIÓ A L ARXIPÈLAG DE FERÖE) JOAQUIM MONTURIOL, Professor emèrit, Fac. de Geologia, UB 16, 17 i 18 de desembre de 1997 Sala Prat de la Riba, IEC
LES XARXES ECOLÒGIQUES I LA CONSERVACIÓ DE LA DIVERSITAT BIOLÒGICA I PAISATGÍSTICA A CATALUNYA Sessió conjunta ICEA-ICHN-SCB-SCEJSCG-SCOT 20 de febrer de 1998 Saló de Cent, Ajuntament de Barcelona. Pl. Sant Jaume. Barcelona. PRESENTACIÓ DE LA FUNDACIÓ ALSINA I BOFILL I DEL LLIBRE D ACTES DEL QUINZÈ CMBLC La Fundació Alsina i Bofill serà l entitat encarregada de l organització dels CMBLC en el futur. El IEC, representat per la SCB, és patró de la Fundació. 26 de març de 1998 Sala Puig i Cadafalch, IEC GENS I LLENGÜES. DIVERSITAT GENÈTICA A EUROPA Acte organitzat per la Societat Catalana de Llengua i Literatura i la Societat Catalana de Biologia JAUME BERTRANPETIT, Laboratori d Antropologia, Fac. de Biologia, UB 3 d abril de 1998 Facultat de Biologia, UB, Barcelona PRESENTACIÓ DEL LLIBRE: LES CONFIDÈNCIES DEL COMTE DE BUFFON, DE MARTÍ DOMÍNGUEZ , UV Hi intervenen: MARTí DOMINGUEZ, JAUME BERTRANPETIT i MERCÈ PIQUERAS Del 17 al 24 d abril de 1998 Aula Magna, Facultat de Biologia, UB, Barcelona SANT JORDI A LA FACULTAT DE BIOLOGIA DE LA UB CENTENARI DEL DESCOBRIMENT DE L APARELL DE GOLGI Coordina: MERCÈ DURFORT, Dept. de Biologia
304 SESSIONS CIENTÍFIQUES
Cel·lular, Fac. de Biologia, UB ÁNGEL VELASCO, Depto. de Biología Celular, Universidad de Sevilla IGNACIO SANDOVAL, Centro de Biología Molecular Severo Ochoa, Universidad Autónoma de Madrid PRESENTACIÓ DEL DICCIONARI DE GEOLOGIA DIRIGIT PER ORIOL RIBA QUANG GANH. DEL TONKIN AL DELTA DEL MEKONG, VIETNAM A càrrec de JOAQUIM MONTURIOL BASES MOLECULARES DEL PROCESAMIENTO DE LOS RNA. EL CUERPO ACCESORIO DE CAJAL MIGUEL LAFARGA, Depto. de Biología Celular y Anatomía, Universidad de Cantabria 29 d abril de 1998 ASSEMBLEA GENERAL ORDINÀRIA Sala Prat de la Riba, IEC. Carme, 47. Barcelona 4 de juny de 1998 Observatori de la Comunicació Científica, UPF, Barcelona PRESENTACIÓ DEL LLIBRE VIATGE ALS ORÍGENS de JAUME BERTRANPETIT i CRISTINA JUNYENT Hi participen també: FÉLIX OVEJERO, Dept. de
Sociologia i Metologia de les Ciències Socials,UB; ADOLF TOBEÑA, Dept. de Psiquiatria, de Toxicologia i de Legislació Sanitària, UAB i JOSÉ MARIA MENDILUCE, eurodiputat 3 de juliol de 1998 Aula Magna, Facultat de Biologia, UB, Barcelona DEVELOPMENT OF THE CEREBRAL CORTEX AND CEREBELLUM: WHAT WE LEARN FROM MOUSE MUTANTS A tale of two genes: reelin and disabled TOM CURRAN, St. Jude Childrenis Research Hospital, Memphis, TN, EUA What reeler and scrambler chimeras can tell us about the developmental events that underlie neuronal migration DANIEL GOLDOWITZ, University of Memphis, TN, EUA Cell and molecular analysis of corticogenesis using the reeler and yotari mice KAZUNORI NAKAJIMA, Riken, Vako, Japó Coordinen: EDUARDO SORIANO, Fac. de Biologia, UB. Tel. 93 402 15 39; i MONTSERRAT VENDRELL, Parc Científic de Barcelona. Tel. 93 440 61 80 Organitzat per: Human Frontiers Science Project Organization amb el suport de la SCB
ÍNDEX D AUTORS
ABÓS I HERRÀNDIZ, R. . . . . . . . . . . . . . . . . . ARAGÓ, I. . . . . . . . . . . . . . . . . . . . . . . . . . . . . BAGUÑÀ, J. . . . . . . . . . . . . . . . . . . . . . . . . . . . BERTRANPETIT, J. . . . . . . . . . . . . . . . . . . . . . . BOSCH, A. . . . . . . . . . . . . . . . . . . . . . . . . . . . CALAFELL, F. . . . . . . . . . . . . . . . . . . . . . . . . . CASACUBERTA, J. M. . . . . . . . . . . . . . . . . . . . CHILLÓN, M. . . . . . . . . . . . . . . . . . . . . . . . . . ESCORIHUELA, R. M. . . . . . . . . . . . . . . . . . . GARCIA-FERNÀNDEZ, J. . . . . . . . . . . . . . . . . GARCIA-SANZ, J. A. . . . . . . . . . . . . . . . . . . . GARÍ, J. A. . . . . . . . . . . . . . . . . . . . . . . . . . . . GUIGÓ, R. . . . . . . . . . . . . . . . . . . . . . . . . . . .
249 61 23 7 41 235 119 141 203 213 173 267 97
LORENZO, D. DE . . . . . . . . . . . . . . . . . . . . . . 225 MARGALEF, R. . . . . . . . . . . . . . . . . . . . . . . . . 9, 47 MONTOLIU, L. . . . . . . . . . . . . . . . . . . . . . . . . 133 PARÉS, R. . . . . . . . . . . . . . . . . . . . . . . . . . . . . 15 PÉREZ-PAYÁ, E. . . . . . . . . . . . . . . . . . . . . . . . 107 PREVOSTI, A. . . . . . . . . . . . . . . . . . . . . . . . . . 35 PUEYO, S. . . . . . . . . . . . . . . . . . . . . . . . . . . . . 279 85 RIBAS I DE POUPLANA, L. . . . . . . . . . . . . . . . ROSA, J. L. . . . . . . . . . . . . . . . . . . . . . . . . . . . 151 SOLÉ, R. V. . . . . . . . . . . . . . . . . . . . . . . . . . . 69 VALERO, A. . . . . . . . . . . . . . . . . . . . . . . . . . . 181 VENTURA, F. . . . . . . . . . . . . . . . . . . . . . . . . . 151 VILARDELL, J. . . . . . . . . . . . . . . . . . . . . . . . . . 163
INFORMATION FOR CONTRIBUTORS TO TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA Treballs de la Societat Catalana de Biologia (Treballs de la SCB) publishes: a) review articles on topics of general interest especially commisioned by the Society; b) communications presented at regular or extraordinary sessions held by the Society and its constituent sections; c) contributions of invited lecturers or monographs; d) reports of scientific sessions held by the Society. Submission of manuscripts Manuscripts should be written in clear, concise Catalan. The use of any other language would require the consent of the Executive Committee. The Editorial Board will seek independent reviewers for evaluation, who will report whether a paper conforms to the general criteria for publication. Authors will be notified of the Editorial decissions. When it appears that a manuscript could be improved by revision, it will be returned to the authors with the referee s comments in writing. If a manuscript is rejected, only the original copy, together with all the figures, will be returned to authors. Submission of a paper implies that it reports unpublished work and is not under consideration for publication elsewhere. Papers should be submitted as word-processor files on a 3 1/2 disk or by e-mail to scb@iec.es, using a Microsoft Word program (Macintosh or PC). Figures, tables and illustrations should also be submitted in a hard copy. Use the name of the author as a file name. Indicate on the disk: author s name, address and operating system used. Manuscripts submitted on paper can be accepted only under exceptional circumstances. Illustrations should be of good quality and fitting within jounal size. Articles, including illustrations, cannot exceed 20 typed pages. Commissioned review articles or monographs are not subjected to the above restrictions although their authors should consult the Editorial Board of Treballs de la Societat Catalana de Biologia. Manuscripts and general editorial correspondence should be addressed to the Editor of Treballs de la Societat Catalana de Biologia, Carme, 47. E-08001 Barcelona. Spain. Organizations of manuscripts The manuscript should be headed by the full title, followed by complete names of all authors in capitals and location of the institutions at which the work was performed. Footnotes should be avoided. All pages should be numbererd consecutively starting with the title page. Summary The abstract and the title should be written in English and Catalan, and not exceed 200 words. Up to five key-
words in English should be given at the end of the abstract.
Tables and illustrations Black and white photographic prints should be of good quality and contrast; in the back there must be indicated the name of the author, the number of the figure and the top with an arrow. Authors must indicate the original figures for publication and the copies. Tables should include a descriptive title and be numbered consecutively with Roman characters.
References Manuscripts should include references arranged in alphabetical order according to the first author s name and should be referreed to in the text in chronological order by the author s names and the date of publication. If more than two authors are mentioned in a reference, the first name followed by «et al» should be used. References should be assembled in the following order; authors in small caps, year in parenthesis, title of article, name of journal, abbreviated and italic, volume number and inclusive page numbers. References to chapters and monographs should include the title of the work followed by the name of editor, the title book, city of publication and publisher. Inclusive pagination should be indicated at the end of the citation.
Note carefully the follogwing examples: CODINA, C.; F. VILADOMAT; J. BASTIDA; J. M. LLABRÉS (1989). «Potencial biotecnològic del cultiu de cèl·lules vegetals per a l obtenció de productes farmacèutics». Treb. Soc. Cat. Biol., núm. 40, pàg. 47-70. GLICK, T. F. (1989). «Biologia i context social: la nova historiografia del Darwinisme». Treb. Soc. Cat. Biol., núm. 40, pàg. 7-18. MELLADO, R. P. (1987). «Vectores utilizados para la manipulación y expresión de genes». A: Vicente, M.; Renart, J. Ingeniería genética. Madrid: CSIC, núm. 215, pàg. 2136. YUNIS, J. J.; O. PRAKASH (1982). «The origin of man: a chromosomal pictorial legacy». Science, núm. 215, pàg. 1525-1530.
Proofs Proofs of accepted articles will be sent to the first author, for correction. Proofs should be returned to the secretary SCB. Corrections other than printer s errors are not acceptable. After publication 20 reprints will be sent free of charge to the author.
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA
VOLUM 50, 2000
ÍNDEX
LA BIOLOGIA A L ALBA D UN NOU MIL·LENNI Presentació, J. BERTRANPETIT . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . El front de les recerques en biologia. Presentació del volum Cap on va la biologia moderna, 1971, R. MARGALEF . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . .
7 9
Primera part Una mirada retrospectiva de trenta anys des del context del món microbià, R. PARÉS . . . L imparable ascens científic i social de la biologia al darrer terç del segle XX, J. BAGUÑÀ . . Reflexions sobre la genètica, la teoria de l evolució i la genètica de poblacions, A. PREVOSTI . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . Organització de la biosfera i reflexions sobre el present i el futur de la nostra espècie i de la ciència ecològica, R. MARGALEF . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . Reflexions entorn d aspectes socials i de la salut, I. ARAGÓ . . . . . . . . . . . . . . . . . . . . . . . . . . .
15 23 35 47 61
Segona part Biologia teòrica, R. V. SOLÉ . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . Biologia estructural: trenta anys filant prim, L. RIBAS I DE POUPLANA . . . . . . . . . . . . . . . . . . La biologia computacional, R. GUIGÓ . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . Disseny de fàrmacs, E. PÉREZ-PAYÁ . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . Modificació genètica en plantes, plantes transgèniques i agricultura, J. M. CASACUBERTA . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . Modificació genètica d animals, L. MONTOLIU . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . La teràpia gènica, M. CHILLÓN I A. BOSCH . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . Biologia del càncer, J. L. ROSA I F. VENTURA . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . Genòmica funcional: l exemple del llevat, J. VILARDELL . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . La resposta immunitària, J. A. GARCIA-SANZ . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . De la desintegració del coneixement científic a l assassinat de la globalitat: cinc reflexions i un paradigma a l entorn de la neurociència, A. VALERO . . . . . . . . . . . . . . La comprensió de la conducta: aportacions de la genètica molecular, R. M. ESCORIHUELA . . La biologia del desenvolupament, J. GARCIA-FERNÀNDEZ . . . . . . . . . . . . . . . . . . . . . . . . . . . . . La comprensió dels mecanismes de l evolució, D. DE LORENZO . . . . . . . . . . . . . . . . . . . . . . . La diversitat genètica humana: de l espècie a l individu, F. CALAFELL . . . . . . . . . . . . . . . . . Les infeccions del futur, R. ABÓS I HERRÀNDIZ . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . La comprensió de la biodiversitat: vers el renaixement de l ecologia humana, J. A. GARÍ . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . El laberint ecològic, S. PUEYO . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . .
69 85 97 107
267 279
SOCIETAT CATALANA DE BIOLOGIA (CURS 1997-1998) . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . RESUM DE LES SESSIONS CIENTÍFIQUES . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . ALTRES ACTIVITATS . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . ÍNDEX D AUTORS DEL VOLUM 50 . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . . .
289 291 298 305
119 133 141 151 163 173 181 203 213 225 235 249
VOLUM 50, 2000 TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA 2000
LA BIOLOGIA A L ALBA D UN NOU MIL· LENNI JAUME BERTRANPETIT EDITOR
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 50, 2000
La visió de Fernando Krahn sobre les perspectives de la biologia actual és sorprenent i rica; és estimulant i intrigant; és oberta. Per això permet i convida de fer interpretacions imprevisibles. Potser el punt de partida podria ser una frase gairebé òbvia: la intel·ligència humana (com les altres intel·ligències) no ha sorgit per entendre el món, sinó per sobreviure. D una manera semblant a la il·lustració de Fernando Krahn, hi ha un significat implícit en aquesta frase: de quina manera l entorn ha configurat i configura la nostra pròpia percepció i concepció del món. La ment científica pretén un exercici compartible i homologable amb les altres ments: l observació objectiva i la deducció sota els postulats de la lògica formal. Però potser ja és hora, en l exploració dels límits del nostre coneixement, que interpretem sota un prisma biològic allò que ens fa entendre i interpretar. Podríem entendre la il·lustració en el sentit que els estímuls exteriors configuren l arquitectura del nostre sistema nerviós i, és clar, la seva manera de funcionar i la nostra de percebre. Als pessimistes que temen el determinisme biològic, els pot alegrar saber que el contingut d informació d un cervell humà és unes mil vegades superior al contingut d informació del conjunt del nostre genoma. Els estímuls exteriors, doncs, ens configuren en allò que creiem més íntim, el nostre cervell. I ens deixen la complexa pregunta de com preparen els gens el substrat per a una modulació que no té res de casual. Aquest sistema nerviós és fruit d un procés evolutiu del que la dèria de la pròpia comprensió no n ha estat el motor, sinó que n és un producte secundari. La nostra percepció del món no és objectiva, no està fonamentada en relacions senzilles entre l estímul, el seu efecte en els nostres sensors i l efecte final al sistema nerviós. L evolució, en el llarg camí del bricolatge, ha fet servir allò que ha pogut per assolir millores conjunturals, sempre cercant una utilitat que no caldria justificar en si mateixa, ja que pot tenir causalitats ocultes. El nostre cervell forja una ment eficaç per detectar l engany o per establir lligams socials, més que no pas per resoldre preats enigmes matemàtics. La física del segle XX va aprendre l íntima relació entre l observador i allò que s observa, i va mostrar que no són dues parts independents sinó intricadament connectades. A la biologia li resta encara entendre bona part de la nostra relació amb el món. Comencem a entendre la vida i anirem entenent la integració, molt complexa, de tota la vida i el món físic que l envolta. Llavors seran senzills fins i tot els enigmes de l esperit. JAUME BERTRANPETIT
VOLUM 50, 2000 TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA 2000
LA BIOLOGIA A L ALBA D UN NOU MIL· LENNI JAUME BERTRANPETIT EDITOR
TREBALLS DE LA SOCIETAT CATALANA DE BIOLOGIA VOLUM 50, 2000
La visió de Fernando Krahn sobre les perspectives de la biologia actual és sorprenent i rica; és estimulant i intrigant; és oberta. Per això permet i convida de fer interpretacions imprevisibles. Potser el punt de partida podria ser una frase gairebé òbvia: la intel·ligència humana (com les altres intel·ligències) no ha sorgit per entendre el món, sinó per sobreviure. D una manera semblant a la il·lustració de Fernando Krahn, hi ha un significat implícit en aquesta frase: de quina manera l entorn ha configurat i configura la nostra pròpia percepció i concepció del món. La ment científica pretén un exercici compartible i homologable amb les altres ments: l observació objectiva i la deducció sota els postulats de la lògica formal. Però potser ja és hora, en l exploració dels límits del nostre coneixement, que interpretem sota un prisma biològic allò que ens fa entendre i interpretar. Podríem entendre la il·lustració en el sentit que els estímuls exteriors configuren l arquitectura del nostre sistema nerviós i, és clar, la seva manera de funcionar i la nostra de percebre. Als pessimistes que temen el determinisme biològic, els pot alegrar saber que el contingut d informació d un cervell humà és unes mil vegades superior al contingut d informació del conjunt del nostre genoma. Els estímuls exteriors, doncs, ens configuren en allò que creiem més íntim, el nostre cervell. I ens deixen la complexa pregunta de com preparen els gens el substrat per a una modulació que no té res de casual. Aquest sistema nerviós és fruit d un procés evolutiu del que la dèria de la pròpia comprensió no n ha estat el motor, sinó que n és un producte secundari. La nostra percepció del món no és objectiva, no està fonamentada en relacions senzilles entre l estímul, el seu efecte en els nostres sensors i l efecte final al sistema nerviós. L evolució, en el llarg camí del bricolatge, ha fet servir allò que ha pogut per assolir millores conjunturals, sempre cercant una utilitat que no caldria justificar en si mateixa, ja que pot tenir causalitats ocultes. El nostre cervell forja una ment eficaç per detectar l engany o per establir lligams socials, més que no pas per resoldre preats enigmes matemàtics. La física del segle XX va aprendre l íntima relació entre l observador i allò que s observa, i va mostrar que no són dues parts independents sinó intricadament connectades. A la biologia li resta encara entendre bona part de la nostra relació amb el món. Comencem a entendre la vida i anirem entenent la integració, molt complexa, de tota la vida i el món físic que l envolta. Llavors seran senzills fins i tot els enigmes de l esperit. JAUME BERTRANPETIT