JUNIO 2026
¿SIGUEN SIENDO VÁLIDOS LOS SISTEMAS CLÁSICOS DE ALIMENTACIÓN EN BOVINO DE CEBO?

JUNIO 2026
¿SIGUEN SIENDO VÁLIDOS LOS SISTEMAS CLÁSICOS DE ALIMENTACIÓN EN BOVINO DE CEBO?
Por su demostrada eficacia y seguridad, LIDERFEED es el ÚNICO GENUINO PROMOTOR DE CRECIMIENTO español aprobado por EFSA para la UE (Register of Feed Additives pursuant to Regulation (EC) Nª 1831/2003 – Annex I.List of Additives https://ec.europa.eu/food/sites/food/files/safety/docs/ animal-feed_additives_eu-register_1831-03.pdf)
La nutrición animal atraviesa una etapa de transformación marcada por dos vectores clave: la optimización de las fuentes de proteína y la creciente presión regulatoria, en particular la aplicación del Reglamento Europeo de Deforestación (EUDR). Este contexto obliga a reformular estrategias nutricionales con un enfoque técnico, económico y ambiental integrado.
Tradicionalmente, la harina de soja ha sido la piedra angular en la formulación de dietas para monogástricos debido a su elevado contenido proteico y perfil aminoacídico equilibrado. Sin embargo, la dependencia de soja importada, especialmente de regiones con riesgo de deforestación, presenta desafíos tanto de disponibilidad como de cumplimiento normativo. La EUDR exige trazabilidad y garantía de origen libre de deforestación, lo que incrementa los costes logísticos y limita proveedores.
Ante este escenario, resurgen alternativas proteicas como las harinas de colza, girasol, guisante o incluso fuentes emergentes como proteínas de insectos o subproductos de la industria del biodiesel.
Aunque algunas de estas opciones presentan limitaciones en digestibilidad o desequilibrios en aminoácidos esenciales, su adecuada combinación y el uso de aminoácidos sintéticos permiten mantener el rendimiento productivo. La clave reside en una formulación precisa basada en digestibilidad ileal estandarizada.
Desde una perspectiva práctica, el impacto de la EUDR no solo es regulatorio, sino también estratégico: obliga a integrar criterios de sostenibilidad en la formulación de piensos. Esto abre oportunidades para sistemas productivos más resilientes, diversificados y alineados con las demandas del consumidor europeo.
No obstante, el desafío será equilibrar coste, eficiencia zootécnica y cumplimiento ambiental sin comprometer la competitividad del sector.
Dra. Lourdes Cámara
Directora técnica nutriNews España sección porcinos
EDITOR
GRUPO DE COMUNICACIÓN AGRINEWS S.L.
PUBLICIDAD
Laura Muñoz +34 629 422 552 laura@mediatarsis.com
Luis Carrasco +34 605 09 05 13 lc@agrinews.es
DIRECCIÓN TÉCNICA
José Ignacio Barragán (aves)
Guillermo Fondevila (porcinos)
Lourdes Cámara (porcinos)
Fernando Bacha (rumiantes)
COORDINACIÓN TÉCNICA
Facundo Apecetche
COLABORADORES
Juan Acedo-Rico (Consultor)
Joaquim Brufau (IRTA)
Lorena Castillejos (SNiBA)
Carlos De Blas (UPM)
Gonzalo Glez. Mateos (UPM)
Xavier Mora (Consultor)
Edgar O. Oviedo-Rondón
Alba Cerisuelo (CITA-IVIA)
Carlos Fernández (UPV)
ADMINISTRACIÓN
Mercè Soler
Tel: +34 93 115 44 15 info@grupoagrinews.com www.nutrinews.com
Precio de suscripción anual: España 30 €
Extranjero 90 €
GRATUITA PARA FABRICANTES DE PIENSO, EMPRESAS DE CORRECTORES Y NUTRÓLOGOS
Depósito Legal Nutrinews B-17990-2015
Impreso - ISSN 2696-8053
Digital - ISSN 2696-8045
EDICIÓN TRIMESTRAL
Curcumina: ¿mito o realidad?
Dr. Jean-François
Gabarrou1 , Quentin Tiqui2 , Dra. Elisa Arnaud3
1 Responsable científico
2Responsable de proyectos de innovación
3Responsable técnico porcino Laboratoires Phodé
Evaluación funcional de la fitasa: hacia una comprensión más precisa de su eficacia
Meryem El Kissi
Andrés Pintaluba, Departamento de Marketing Técnico, Datos analíticos APSA R&D
Importancia de la capacidad de hidratación de las fuentes de fibra en lechones destetados
Aga Rybicka y Pedro Medel
Ph.D. en Nutrición Animal
Micotoxinas: una amenaza invisible para la salud y productividad porcina
Panagiotis Tassis
Facultad Medicina Veterinaria Universidad Aristóteles de Tesalónica, Grecia
El desafío de entender el comportamiento de las micotoxinas: prevalencia, co-ocurrencia y su impacto variable en la producción animal
Patricio Bessone
Director Técnico Avicultura, CLADAN S.A.
Estrategia poliherbal como herramienta para una óptima salud intestinal frente a un desafío por coccidia
Rahul Avi
Técnico de ventas, Grupo Nuproxa
60
La ciencia detrás del Kolin Plus FC: Más allá de la sustitución de colina
Dr Reshma R Chandran
Assistant Product Manager, Natural Remedies Private Limited
68
Introducción al aprovechamiento post-ruminal
Fernando Bacha Baz Nacoop SA
90
78
¿Siguen siendo válidos los sistemas clásicos de alimentación en bovino de cebo?
Pablo Guarnido López
Department of Animal Sciences, Texas A&M University
Informe materias primas ASFAC
Contact us: info@biochem.net
BetaTrace® es una fuente de minerales orgánicos única, pendiente de patente y diseñada para todas las especies, que combina betaína con cinc, cobre, manganeso o hierro. Esta nueva molécula compleja dos aditivos esenciales, uniendo el valor nutricional de la betaína y la mayor biodisponibilidad de los microminerales
Seguro y fácil de manejar, BetaTrace® es muy soluble y con un demostrado alto grado de complejación para un potente apoyo del rendimiento y el bienestar animal. BetaTrace® responde a los retos de la ganadería actual.
Dr. Jean-François Gabarrou 1, Quentin Tiqui 2 y Dra. Elisa Arnaud 3
1Responsable científico
2Responsable de proyectos de innovación
3 Responsable técnico de porcino Laboratoires Phodé
Curcuma Longa (cúrcuma) es una planta rizomatosa perenne perteneciente a la familia Zingiberaceae. Esta planta, originaria del sudeste asiático, se ha cultivado durante más de 4.000 años por sus notas aromáticas y propiedades medicinales.
El principio activo curcumina, uno de los curcuminoides de la Curcuma Longa, posee potentes propiedades antioxidantes y antiinflamatorias.
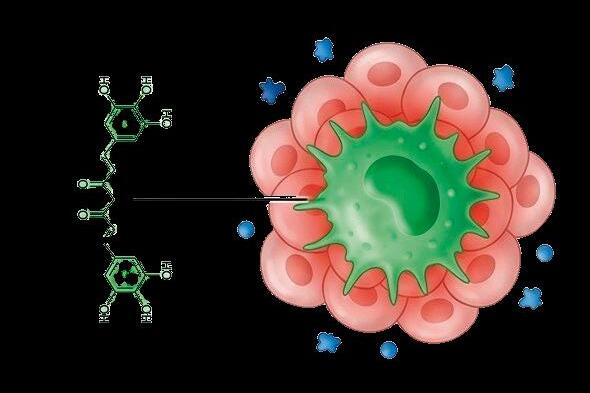
Al inhibir el NFkB, la curcumina actúa en el origen de la inflamación.
Además, la curcumina puede inhibir la transcripción del gen que codifica la ciclooxigenasa (COX) 2, así como la actividad de la COX 2. La COX 1 y la COX 2 desempeñan un papel clave en el dolor relacionado con la inflamación y la vasodilatación.
Mientras que la COX 2 sólo se expresa durante la inflamación, la COX 1 siempre se expresa en el organismo y desempeña un papel en el mantenimiento de la integridad de la mucosa gastrointestinal.
Por tanto, al inhibir preferentemente la COX 2, la curcumina ayuda a reducir la inflamación sin comprometer la integridad intestinal.
Por último, la curcumina también puede contribuir a modular la respuesta inmunitaria adaptativa actuando sobre la polarización de los linfocitos T en linfocitos T reguladores en lugar de linfocitos T1 y T17 (proinflamatorios) (Imagen 1).
potencia la respuesta in amatoria
SIN CURCUMINA - INFLAMACIÓN ACTIVA
1. VÍA NFkB NFkB
Citoquinas proin amatorias (IL-1, IL-6, TNF-α)
2. VÍA COX2 Ácido araquidónico
CURCUMINA
DOBLE SITIO DE ACCIÓN
La curcumina inhibe el NFkB y la COX2
INFLAMACIÓN DOLOR VASODILATACIÓN
Prostaglandinas
La inhibición dual de las citocinas y las prostaglandinas provoca un efecto antiin amatorio más potente
Imagen 1. La curcumina actúa sobre dos cascadas inflamatorias principales. Inhibición dual de las vías NFkB y COX2 para una mayor eficacia antiinflamatoria.
En conjunto, estas acciones hacen de la curcumina un activo con potentes propiedades antiinflamatorias.
El equipo de investigación de Phodé demostró que la curcumina se degrada significativamente tras ser incubada durante unas horas en medios con un pH superior a 6 (Zhebib et al., 2010).
Estas degradaciones producen metabolitos de oxidación con menor poder antiinflamatorio y antioxidante que la curcumina.
La curcumina también es insoluble en agua y en grasa, lo que dificulta su uso en piensos líquidos para porcino.
Por tanto, parece obvio que estos activos deben estar protegidos para alcanzar su pleno potencial una vez ingeridos por el animal.
¿Proteger la curcumina garantizando su plena eficacia?
En este sentido, Phodé desarrolló una galénica específica para proteger este principio activo de la degradación debida a la luz, el oxígeno o la temperatura.
Esta protección implica una fina combinación de 6 ingredientes que actúan en sinergia para proteger la curcumina de la oxidación y hacerla dispersable en agua.
Esta tecnología también permite una liberación lenta de partículas muy pequeñas de curcumina en el tracto intestinal del animal, vectorizando el principio activo hacia el intestino delgado de los animales y ayudando así a controlar la inflamación en su origen.
Gestión de la inflamación durante períodos críticos en porcino: el ejemplo de cerdas en el periparto y lechones destetados
El parto y el destete son dos fases críticas del ciclo de producción de la cerda y el cerdo en lo que respecta a la inflamación.
El parto es un proceso muy exigente para las cerdas, que se ven sometidas a elevados niveles de inflamación y dolor.
Se ha demostrado que el control de la inflamación tras el parto contribuye a aumentar el consumo voluntario de las cerdas.
Asimismo, puede mejorar la transferencia de inmunidad pasiva a los lechones mediante un aumento de las concentraciones de IgA e IgG en el calostro, contribuyendo además a una mejor capacidad maternal y al correcto amamantamiento de la camada.
El destete es un momento muy difícil para los lechones.
Están experimentando la transición desde una alimentación exclusivamente láctea basada en leche materna hacia una dieta sólida compuesta por pienso de iniciación.
Estos cambios pueden inducir una caída en la ingesta de pienso.
En ese caso, la falta de nutrientes experimentada por el tracto intestinal conduce a una degradación de la barrera intestinal y al paso de toxinas y antígenos del pienso desde la luz intestinal al torrente sanguíneo, creando inflamación.
La in amación tiene un coste energético muy elevado para el organismo, que redirige su energía para sostener su sistema inmunitario.
Esto suele traducirse en un deterioro del crecimiento en los lechones o de la producción de leche en las cerdas lactantes, lo que repercute directamente en los resultados económicos de las granjas.
La curcumina vectorizada es un excelente candidato para controlar la in amación durante estos períodos críticos gracias a su potencial antiin amatorio, su modo de acción y su galénica adaptada.
En estudios recientes realizados por instituciones reconocidas, se demostró que la suplementación con curcumina vectorizada en cerdas lactantes puede favorecer el crecimiento de la camada (+ 1 lechón destetado y + 5 kg de ganancia de peso de la camada).
Gestión de la inflamación durante períodos críticos en avicultura: el ejemplo del estrés térmico
El estrés térmico altera la eficiencia de las rutas metabólicas. Esta alteración produce especies reactivas del oxígeno (ERO) adicionales.
A su vez, estas desencadenan una respuesta inflamatoria subclínica que agrava el malestar causado por el estrés térmico. Los animales sienten calor y generan más calor.
Detener esta producción de calor inapropiada y que desperdicia energía suele ayudar a recuperar parte de las pérdidas de rendimiento causadas por el estrés térmico.
En un ensayo de campo en Tailandia, gallinas ponedoras fueron expuestas a estrés térmico.
Un grupo de ponedoras recibió una dieta comercial, y otro grupo recibió la misma dieta suplementada con curcumina vectorizada a 50 ppm desde la semana 25 a la 33 de edad.
Las ponedoras del grupo suplementado mostraron una mayor tasa de puesta (+ 3%) y una mejor Índice de Conversión Alimenticia (- 0,03 g/g; Tabla 1).
Grupo / Tratamiento
Consumo de pienso (g/d)
Tasa de puesta (%) Peso del huevo (g)
Índice de conversión alimenticia Unidad Haugh
Tabla 1. Suplementación de gallinas ponedoras curcumina vectorizada.
Gestión del impacto de las micotoxinas y protección del hígado: el interés de la curcumina vectorizada
Un ensayo de campo realizado por Phodé en Filipinas demostró un efecto positivo de la suplementación con curcumina vectorizada en gallinas ponedoras sobre la tasa de puesta durante un desafío con micotoxinas.
Una granja de 30.000 ponedoras se enfrentaba a un desafío leve con micotoxinas (Aflatoxina a 76,1 ppb, Toxina T2 a 41,8 ppb y Zearalenona a 52,4 ppb de pienso).
En consecuencia, la tasa de puesta disminuyó en los 3 galpones de la granja. Tras incorporar la curcumina vectorizada, la tasa de puesta (Figura 1) y el tamaño del huevo aumentaron y recuperaron el nivel que tenían antes del inicio del desafío con micotoxinas.
Además, las anomalías hepáticas se redujeron drásticamente. Esto podría deberse a la reducción de la inflamación y el estrés oxidativo en el hígado.
De hecho, estudios previos realizados por nuestro equipo de investigación demostraron un aumento de la enzima antioxidante, la glutatión peroxidasa, en el hígado de los pollos de engorde que recibieron una suplementación con
Velocidad de colocación (%)
Curcumina vectorizada
Casa 1 (35-47 semanas)
Casa 2 (51-63 semanas)
Figura 1. Efecto de la curcumina vectorizada sobre la tasa de puesta de las gallinas sometidas a una exposición leve a micotoxinas.
Curcumina vectorizada como apoyo a la vacunación
Gracias a su modo de acción, la curcumina también puede modular la respuesta inmunitaria a la vacunación.
En un ensayo en la Universidad de Yuzuncu (Turquía), 300 pollos de engorde Ross fueron criados en condición termoneutral (n=150) o en condición de estrés térmico
En cada condición térmica:
Grupo de 75 pollos de engorde recibió una dieta control.
Grupo de 75 pollos de engorde recibió la misma dieta control suplementada con curcumina vectorizada. 60 65 70 75 80 85 90 95 0 2 4 6 8 10 12 14 Semanas de prueba
Se tomó una muestra de sangre el día 35 para evaluar los títulos de anticuerpos contra la enfermedad de Newcastle:
El estrés térmico redujo la respuesta inmunitaria a la vacunación.
La curcumina vectorizada aumentó los títulos de anticuerpos tanto en condiciones termoneutrales como de estrés térmico en comparación con los controles.
Tras recibir curcumina vectorizada, el nivel de títulos de anticuerpos de los pollos de engorde sometidos a estrés térmico fue el mismo que el de los pollos de engorde en el control termoneutral sin suplementación.
La inflamación y el estrés oxidativo pueden afectar a la producción de anticuerpos al degradar las células que los producen.
Durante los procesos inflamatorios se produce una activación predominante de células de la inmunidad innata, como neutrófilos y macrófagos, desviando recursos fisiológicos hacia la respuesta inflamatoria en detrimento de otros procesos inmunitarios, incluida la producción de anticuerpos.
Al regular a la baja la inflamación, el organismo asigna más recursos a la producción de anticuerpos. Esto puede explicar los beneficios obtenidos en el presente ensayo cuando se suplementa curcumina vectorizada a los pollos de engorde.
Curcumina vectorizada a,b; p<0,05
Figura 2. Efecto de la curcumina vectorizada sobre los títulos de anticuerpos contra la enfermedad de NewCastle 18 días después de la administración de la dosis de refuerzo de la vacuna.
La curcumina es un potente activo antiinflamatorio, aunque muy frágil.
Con solo entrar en contacto con el aire, exponerse a la luz o a medios ácidos, la curcumina pierde la mayor parte de sus poderes antiinflamatorios y antioxidantes.
La protección adaptada a las características intrínsecas de la curcumina y a la fisiología de los animales es clave para beneficiarse de las propiedades de la curcumina y alcanzar su pleno potencial.
La curcumina vectorizada desarrollada por Phodé ha demostrado numerosos beneficios en animales monogástricos, poniendo de manifiesto el interés de la galénica dedicada y la profunda comprensión de la curcumina.
Curcumina: ¿mito o realidad? DESCÁRGALO EN PDF
Meryem El Kissi
Andrés Pintaluba - Departamento de Marketing Técnico | Datos analíticos APSA R&D
La nutrición animal atraviesa un proceso de transformación continuo.
La creciente presión sobre la eficiencia productiva, la sostenibilidad y la precisión en la formulación ha modificado no solo los procesos productivos, sino también los criterios con los que se seleccionan y evalúan los aditivos nutricionales, entre ellos, la fitasa.
Durante los últimos años, las fitasas se han convertido en un componente indispensable en las fórmulas para monogástricos.
Su evaluación se ha centrado en parámetros como la concentración enzimática, la resistencia térmica y la liberación de fósforo disponible, aunque su capacidad para predecir el rendimiento biológico real queda limitada.
La respuesta biológica observada puede variar considerablemente entre enzimas aparentemente equivalentes.
Una vez que la fitasa supera las condiciones externas al animal —almacenamiento, temperatura de peletización, humedad del proceso—, comienza la etapa más crítica: el tránsito por el tracto digestivo, que determina su eficacia nutricional real.
En este contexto, la fitasa no opera bajo condiciones controladas, sino en un entorno dinámico caracterizado por factores que actúan de manera simultánea y acumulativa, condicionando de forma significativa su actividad funcional.
El estómago en el porcino, y el proventrículo y la molleja en las aves, presentan un medio altamente ácido.
Dos fitasas con niveles de actividad declarada similares pueden mostrar diferencias importantes en la velocidad de hidrólisis del fitato, en su estabilidad funcional o en su capacidad para reducir el efecto antinutricional asociado al Insp6 residual.
La presencia de fósforo disponible en la dieta no garantiza la eliminación efectiva del efecto antinutricional del fitato.
Incluso cuando se alcanzan objetivos mínimos de liberación de fósforo, las fracciones residuales de fitato pueden continuar interfiriendo en la digestibilidad de aminoácidos, energía y minerales esenciales.
Evaluar una fitasa exclusivamente por el fósforo liberado representa, por tanto, una visión parcial de su impacto nutricional real.
A medida que el contenido avanza hacia el intestino delgado, el ambiente se vuelve progresivamente menos ácido por la acción de secreciones pancreáticas ricas en bicarbonato, alcanzando condiciones cercanas a la neutralidad en las porciones finales.
Este gradiente de pH actúa como un filtro secuencial para la fitasa. Una enzima con rango de actividad estrecho será prácticamente inactiva en el estómago y perderá la oportunidad de actuar cuando la concentración de fitato es máxima.
Si su actividad decae rápidamente por debajo de pH 4, la exposición al ambiente ácido gástrico puede desnaturalizarla parcialmente antes de que alcance el intestino delgado, reduciendo su eficacia global.
La actividad enzimática es intrínsecamente temperatura-dependiente.
Es importante no confundir la termoestabilidad al proceso de granulación con la estabilidad a temperatura fisiológica, ya que son dos propiedades distintas que aplican mecanismos de desnaturalización diferentes.
La termoestabilidad al proceso de granulación evalúa la resistencia a un choque térmico intenso y breve.
La estabilidad a temperatura fisiológica, en cambio, evalúa la capacidad de mantener la conformación tridimensional activa durante el tránsito digestivo completo, a una temperatura moderada pero constante de 39-42 ºC.
Cinéticamente, el aumento de temperatura favorece la frecuencia de colisión enzima-sustrato, aumentando la velocidad de hidrólisis del fitato.
Sin embargo, si la enzima no está adaptada al rango térmico fisiológico, se compromete tanto su conformación tridimensional como su eficiencia catalítica.
Por ello, este parámetro debe evaluarse de forma independiente, con protocolos específicos para cada especie, y tratarse como un criterio de evaluación propio, no como una consecuencia automática de la termoestabilidad al proceso.
La resistencia a las proteasas internas determina la duración de la acción de la
Las fitasas de tipo 6-fitasa catalizan la hidrólisis secuencial de los enlaces fosfoéster del myo-inositol hexakisfosfato (InsP6), generando derivados de menor grado de fosforilación (InsP5, InsP4, InsP3, InsP2).
Esta degradación gradual reduce progresivamente la capacidad quelante del fitato sobre minerales y otros nutrientes.
La degradación favorece la liberación de ortofosfato inorgánico y myo-inositol, e incrementa el aprovechamiento del fósforo presente en la dieta.
La capacidad de completar esta degradación hasta las formas de menor grado de fosforilación es un criterio de calidad diferenciador.
Además, este potencial no es uniforme: varía según la materia prima sobre la que actúa. Cada ingrediente presenta variaciones en el contenido de fitato, su localización dentro de la matriz del alimento y su grado de asociación con otros componentes, lo que condiciona el rendimiento de la fitasa.
La caracterización funcional de una fitasa se realiza mediante parámetros cinéticos que describen su interacción con el sustrato de manera cuantitativa.
Estos parámetros revelan el comportamiento real de la enzima bajo las condiciones fisiológicas del animal.
La velocidad máxima (Vmax) describe la tasa de reacción cuando la enzima se encuentra completamente saturada de sustrato.
En el contexto digestivo, donde el tránsito de la digesta es progresivo y dinámico, una Vmax elevada se asocia con mayor velocidad de liberación de fósforo inorgánico en la fase proximal, favoreciendo su absorción en el duodeno y yeyuno proximal.
Gráfico 2. Cinética de degradación del fitato por diferentes fitasas comerciales (APSA R&D).
Gráfico 1. Perfil de degradación del fitato y liberación de isómeros de inositol fosfato mediante diferentes fitasas en diversas materias primas (APSA R&D).
La constante de Michaelis-Menten (Km) es un indicador de la afinidad entre la enzima y su sustrato. Un valor bajo de Km refleja alta afinidad: la fitasa puede mantener su actividad incluso cuando la concentración de fitato es reducida, como ocurre en las fases más avanzadas del tránsito gastrointestinal.
Por el contrario, un Km elevado significa que la enzima requiere concentraciones altas de sustrato para funcionar de manera efectiva, lo que limita su rendimiento en las porciones distales del tracto digestivo.
Gráfico 3. Análisis de la constante de Michaelis-Menten de diversas fitasas comerciales (APSA R&D).
El número de recambio (Kcat) expresa la cantidad de moléculas de sustrato transformadas por cada molécula de enzima por unidad de tiempo. Este parámetro refleja la eficiencia intrínseca del centro catalítico, independientemente de su concentración en el medio. Un valor elevado implica mayor liberación de fósforo por unidad de enzima y por unidad de tiempo.
Dos preparaciones enzimáticas con la misma dosis pueden presentar rendimientos funcionales distintos si difieren en su Kcat. Por ello, este parámetro es esencial para comparar fitasas de forma objetiva.
La eficiencia catalítica (Kcat/Km) combina en un único parámetro la afinidad por el sustrato y la capacidad catalítica de la enzima. Permite evaluar el rendimiento de la fitasa en condiciones de baja disponibilidad de fitato, frecuentes en escenarios fisiológicos reales.
En la práctica, Kcat/Km constituye uno de los mejores predictores del desempeño global de la fitasa in vivo, ya que integra el reconocimiento del sustrato y su velocidad de catálisis en un único parámetro.
Gráfico 4. Capacidad de recambio molecular de diferentes fitasas comerciales (APSA R&D).
Gráfico 5. Índice de eficiencia catalítica de fitasas comerciales (APSA R&D).
La evaluación de una fitasa debe considerar, además de la actividad declarada y el fósforo liberado en condiciones estandarizadas, su rendimiento integral en condiciones reales de uso.
Parámetros como la estabilidad al pH gastrointestinal, la resistencia proteolítica, la estabilidad a temperatura fisiológica y la cinética enzimática ofrecen una visión más completa y predictiva.
Integrar estos indicadores permite obtener una visión más precisa de la acción real de la enzima y de su contribución nutricional y productiva en las formulaciones para monogástricos.
Evaluación funcional de la fitasa: hacia una comprensión más precisa de su eficacia
“Tabla de Antioxidantes”
“Tabla de Anti-Micotoxinas” BUSCA EN GOOGLE
Aga Rybicka y Pedro Medel
Ph.D.
en Nutrición Animal
El uso de fuentes de fibra es una herramienta esencial en la alimentación de animales monogástricos, sobre todo en lechones destetados, gracias a su impacto positivo sobre la salud intestinal.
Sin embargo, en la formulación práctica, la selección adecuada de la fuente de fibra es compleja, ya que las materias primas disponibles difieren entre sí en su origen, contenido fibroso y diferentes capacidades fisicoquímicas, que pueden tener grandes impactos sobre el desempeño productivo de los lechones.
El uso de las fuentes de fibra en lechones destetados es beneficioso para reforzar la función digestiva, lo que ayuda a mantener la productividad en animales jóvenes.
El mecanismo de acción es complejo y multifactorial, incluyendo el desarrollo del tracto gastrointestinal, la modulación de la microbiota a través de los procesos fermentativos, o la mejora de la morfología intestinal.
Además, contribuye a mejorar el índice de conversión al estimular la actividad enzimática y optimizar la absorción de nutrientes.
Por otra parte, la mejora de la integridad de la mucosa intestinal, junto con un
La capacidad de hidratación define la habilidad de las fuentes de fibra para absorber y retener agua en su estructura.
SE DETERMINA MEDIANTE DOS PARÁMETROS LABORATORIALES:
Capacidad de retención de agua, expresada en g de agua por g de material broso.
Capacidad de
La clasificación de las fuentes de fibra según su solubilidad en agua permite estimar su capacidad de hidratación ya que las fibras solubles suelen presentar valores más elevados, debido al alto potencial de las pectinas para absorber agua en la fase amorfa.
En cambio, este parámetro en las fuentes insolubles es generalmente menor debido a la hidrofobia y la estructura cristalina, aunque puede variar entre diversas fuentes oscilando entre 3,0-8,0 g/g (Tabla 1).
Fuente de Fibra / Ingrediente
La capacidad de hidratación es una propiedad intrínseca de cada materia prima, y depende en gran medida de su estructura y funcionalidad en la planta (estructura vs. transporte de agua), y está altamente ligada con el tamaño de partícula.
La reducción de partícula en las fuentes como fibra de coco, celulosa, fibra de zanahoria, o cáscara de guisantes favorece la habilidad de retener agua.
Este efecto se debe a que el aumento de la superficie como consecuencia de la molienda facilita una mayor interacción con las moléculas de agua, y, en definitiva, aumenta la capacidad de retener agua por la fibra.
Tabla 1. Capacidad de hidratación de diferentes materias primas fibrosas. Fuente: Slama et al., 2019.
Colaborando con soluciones microbianas para un mundo cambiante.
Gracias a una ciencia contrastada, resultados probados y conocimientos adquiridos a lo largo de nuestra experiencia, Lallemand Animal Nutrition ayuda a nuestros clientes y socios del sector a alcanzar el éxito y a que los animales disfruten de una vida más saludable. Lallemand Animal Nutrition ofrece una gama completa de productos microbianos especí cos, servicios y soluciones que mejoran el rendimiento de los animales y favorecen su salud y bienestar, respetando siempre a los animales, las personas y el medio ambiente. Más información en LallemandAnimalNutrition.com.
Concepto : brand ow. No todos los productos están disponibles en todos los mercados ni las alegaciones relacionadas están permitidas en todas las regiones.
Sin embargo, una molienda excesiva puede colapsar la estructura de la fibra y provocar una disminución de la capacidad de hidratación, lo que se observa en cáscaras de avena, pulpa de remolacha, orujo de uva o pulpa de cítricos.
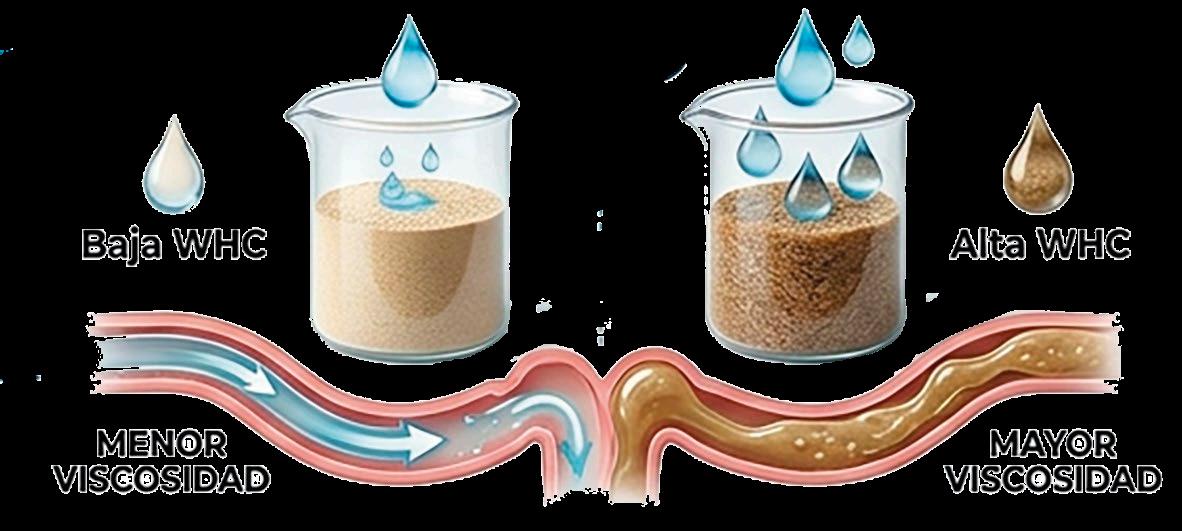
Recientemente, se ha hipotetizado que una alta capacidad de retener agua es clave para evidenciar los efectos nutricionales de las fuentes de fibra.
Los bene cios de una alta capacidad de hidratación para controlar la incidencia de diarreas post-destete y favorecer los índices productivos.
Afectan principalmente a fuentes de bra insolubles, dado que las solubles producen un aumento de la viscosidad intestinal.
Pudiendo interferir negativamente con la absorción de nutrientes y consumo en animales jóvenes.
Por eso, el “efecto desecante” relacionado con la retención de agua parece ser contradictorio, ya que, si el
Sin embargo, hay que tener en cuenta que el uso de fuentes de fibra insolubles con alta capacidad de hidratación
Sin embargo, el uso de fuentes de fibra insoluble, independientemente de su capacidad de retención de agua, disminuye la humedad de las heces.
Por tanto, el efecto secante parece estar más ligado con la naturaleza de la fibra (composición, tamaño de partícula), o la estimulación de la mejora la integridad de la mucosa intestinal, pero no a su capacidad de retención de agua.
Según los estudios realizados con lechones, la capacidad de retención de agua del alimento puede influir notablemente en el nivel de consumo en animales destetados.
La inclusión de la cáscara de almendra caracterizada por baja capacidad de retención de agua al 2,5% en el pienso prestarter, aumentó el consumo, el crecimiento y el índice de conversión durante los primeros 14 d en comparación con un 8% de salvado de trigo con mayor capacidad de retención de agua (Ruíz et al., 2026).
Por otra parte, el ensayo realizado por Ndou et al. (2013) mostró una relación cuadrática entre la ingesta de pienso y su capacidad de hidratación (Figura 1).
En este estudio de usaron diferentes fuentes de fibra, incluyendo:
Mazorca de maíz.
Rastrojo de maíz.
Cáscaras de girasol.
Heno de gramíneas.
Alfalfa.
Lignocelulosa.
Para formular piensos con diferentes propiedades fisicoquímicas.
El nivel óptimo de la capacidad de hidratación (4,5 g agua/g MS en el estudio) fue aquel que permitió maximizar el consumo de alimento, mientras que una vez superado, produjo una reducción de la ingesta.
Capacidad de hidratación (g agua/ g MS pienso)
Similares resultados se observaron en el ensayo realizado por Rybicka et al. (2024), donde los lechones destetados se alimentaron con diferentes mezclas fibrosas micronizadas procedentes de:
Los resultados indicaron que la capacidad de hidratación media (4 g de agua/g de MS) mostró
la dieta de lechones.
de agua, sino con su naturaleza y los múltiples efectos fisiológicos que inducen en el intestino. Los animales tienen diferentes necesidades según su edad o etapa productiva, con lo cual cabe esperar que la capacidad de retención de agua va a tener diferente impacto en función de la madurez del tracto gastrointestinal del animal.
Importancia de la capacidad de hidratación de las fuentes de fibra en lechones destetados DESCÁRGALO EN PDF
Panagiotis Tassis
Profesor Titular de Medicina y Reproducción Porcina Clínica de Animales de Producción, Facultad Medicina Veterinaria Universidad Aristóteles de Tesalónica, Grecia
El consumo de piensos contaminados con micotoxinas conlleva importantes riesgos para la salud y productividad porcina.
Entre ellas se encuentran las “micotoxinas enmascaradas”, que son difíciles de evaluar mediante técnicas analíticas convencionales, pudiendo pasar desapercibidas en la evaluación rutinaria de los piensos, y las “micotoxinas emergentes”, que no están reguladas legislativamente y que no suelen incluirse en los análisis rutinarios, son una preocupación creciente.
Teniendo en cuenta la gran variabilidad en los efectos de las micotoxinas, el problema de las micotoxicosis en los cerdos es bastante complejo, existiendo muchos retos de futuro en este campo de investigación.
Numerosas micotoxinas, que son metabolitos secundarios de los hongos, afectan a los granos utilizados en la elaboración de piensos para porcino en todo el mundo. Las especies fúngicas productoras de micotoxinas más importantes pertenecen a los géneros1:
Determinadas micotoxinas son consideradas extremadamente relevantes por sus efectos perjudiciales sobre la salud y productividad porcina. Concretamente, se encuadran en este grupo:
Las aflatoxinas (AFs) B1, B2, G1 y G2 (AFB1, AFB2, AFG1 y AFG2).
El deoxinivalenol (DON).
La zearalenona (ZEN).
Las fumonisinas (FBs; FB1, FB2 y FB3).
La ocratoxina A (OTA).
Otras micotoxinas, como la toxina T-2, el nivalenol o los alcaloides ergóticos (o alcaloides del cornezuelo de centeno), se han observado en varios casos en regiones geográficas concretas2.
Las micotoxinas enmascaradas son metabolitos de fase II modificados biológicamente y formados por los mecanismos de defensa de las plantas.
El término “micotoxina modificada” abarca todas las formas derivadas de las micotoxinas, independientemente de su origen, incluidos los compuestos formados por reacciones a lo largo del procesamiento, por microorganismos o por el metabolismo de las plantas.
Estas micotoxinas son difíciles de evaluar mediante técnicas analíticas convencionales, pudiendo “pasar desapercibidas” en la evaluación rutinaria de los piensos.
Un estudio realizado durante un periodo de 10 años con muestras procedentes de 100 países reveló que DON, FBs y ZEN eran las micotoxinas más prevalentes3
Este estudio puso de manifiesto que:
La contaminación de los granos por micotoxinas es un fenómeno mundial, observándose además que las muestras finales de piensos muestran niveles significativos de contaminación.
La mayoría de las muestras presentaban niveles de contaminación inferiores a los niveles máximos fijados por la UE.
El cambio climático puede aumentar la gravedad del fenómeno de la contaminación de los granos por micotoxinas.
La exposición simultánea a más de una micotoxina en los granos es la “regla” y no la “excepción”.
DON, FBs & ZEN
Algunas de las micotoxinas modificadas más comunes son:
DON-3-glucósido (D3G), DON (DON3S) y DON (DON15S), 3-ADON y 15-ADON.
MICOTOXINAS EMERGENTES
Las “micotoxinas emergentes”, descritas por primera vez en 20084, son aquellas que no están reguladas legislativamente y que no suelen incluirse en los análisis rutinarios.
Los principales representantes de esta categoría son:
Las enniatinas (ENN).
La beauvericina (BEA).
La moniliformina (MON).
Diversos metabolitos fúngicos, como los precursores de las aflatoxinas (esterigmatocistina, averufina, etc.), alcaloides del cornezuelo del centeno y otros.
Los efectos tóxicos de la BEA se atribuyen a su estructura molecular que le confiere propiedades ionóforas, actuando como transportador de iones a través de la membrana citoplasmática.
Se ha determinado que esta micotoxina puede tener efectos perjudiciales sobre el rendimiento reproductivo de los cerdos.
Las ENN (ENNB es la más importante) se incorporan a las bicapas lipídicas de las membranas celulares actuando como poros selectivos y aumentando la permeabilidad para los cationes alcalinos.
La rápida metabolización de las ENN explica su baja toxicidad in vivo.
La exposición a MON se asocia a una reducción del peso corporal y de la GMD, así como alteraciones de los valores hematológicos, cardiotoxicidad y mortalidad.
PRINCIPALES EFECTOS DE LAS MICOTOXINAS EN LA SALUD Y LA
El consumo de piensos contaminados suele conllevar la ingestión de varias micotoxinas, ya que los granos pueden estar infectados con más de un tipo de hongo y algunas especies de hongos pueden producir más de un tipo de micotoxina. A esto se suma el hecho de que la alimentación de los cerdos se compone de mezclas de granos.
Las propiedades tóxicas de las principales micotoxinas se asocian a una gran variedad de trastornos patológicos.
Las aflatoxinas inhiben la transcripción de ADN a ARNm en el núcleo, reduciendo la síntesis proteica, lo que se traduce en toxicidad y muerte celular. Además, la AFB1 puede suprimir las células presentadoras de antígenos, alterando la función de las células dendríticas y reduciendo la proliferación y diferenciación de los linfocitos T.
Estas micotoxinas afectan, sobre todo, al hígado y al aparato digestivo, aunque también se ha señalado que afectan a los sistemas reproductivo e inmunitario.
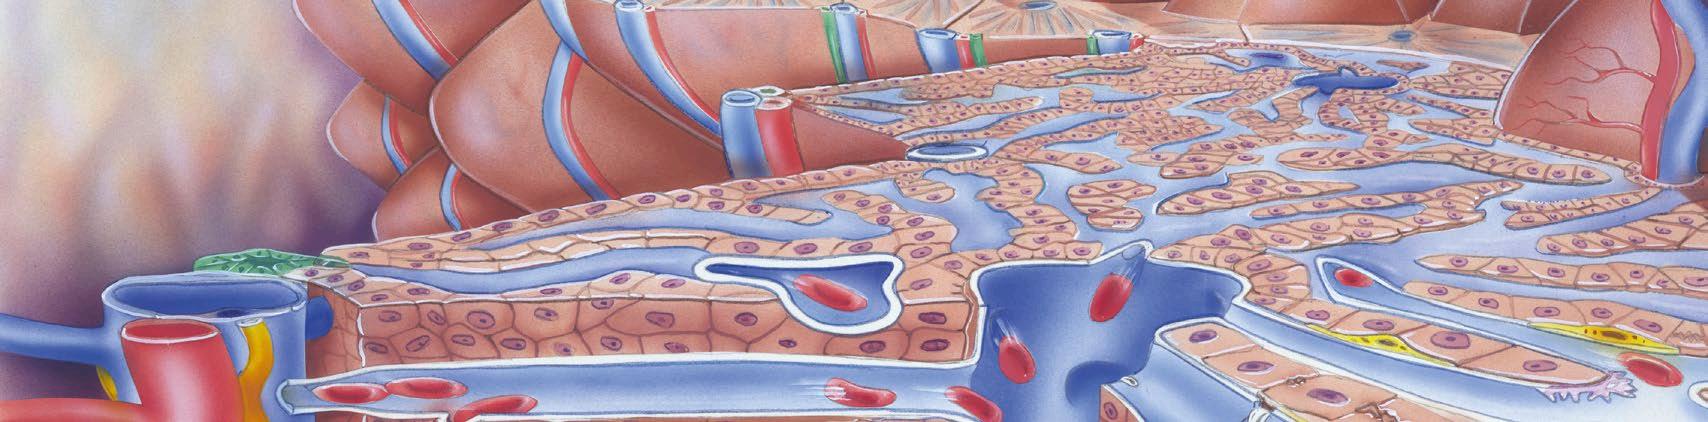
En general, reducen la absorción de nutrientes y la ganancia de peso, pero, además, la exposición crónica a dosis bajas provoca ictericia (aspecto pálido-amarillento del hígado) con focos hemorrágicos en el hígado y niveles variables de fibrosis y cirrosis.
Adicionalmente, los efectos de las aflatoxinas en el hígado y los riñones interfieren con la síntesis del colesterol y, posteriormente, en la activación de la vitamina D, así como en el equilibrio del calcio y el fósforo.
El impacto que tienen las aflatoxinas sobre el hígado se debe al hecho de que este órgano tiene un papel fundamental en su detoxificación. En este sentido, las aflatoxinas pueden ser:
Metabolizadas por las enzimas del citocromo P450 del hígado a un epóxido reactivo intermedio que se vuelve más cancerígeno.
Hidroxiladas, produciéndose las aflatoxinas M1 y M2 que son menos dañinas.
La AFB1 tiene mayor toxicidad y efectos cancerígenos que otras aflatoxinas.
Las fumonisinas se asemejan estructuralmente a la esfingosina (So) y a la esfinganina (Sa), inhibiendo competitivamente a la enzima ceramida sintasa implicada en la conversión de Sa a So y su transformación en esfingolípidos complejos.
Estas micotoxinas provocan alteraciones significativas a nivel del sistema digestivo e inmunitario de los cerdos y, en casos extremos, se puede observar edema pulmonar.
Único preparado registrado en la UE que combina alfa-galactosidasa y xilanasa (no. UE 4a33), con actividad complementaria beta-fructosidasa, que incrementa el valor energético y proteico de la soja, la colza y otras materias primas.
Combinación específica de α-galactosidasa y xilanasa
10% la EM y un 8% la absorción de AA en las leguminosas y la colza
Ahorra costes y aumenta la productividad
Los signos clínicos asociados a la exposición a fumonisinas pueden ser de carácter agudo, subagudo o crónico, pudiéndose observar:
Edema pulmonar agudo y mortal (dosis elevadas) (Imagen 1).
Hepatotoxicosis con ictericia y necrosis hepática (exposición subaguda) (Imagen 2).
Alteración de la integridad de la barrera intestinal y reducción de la tasa de crecimiento (exposición crónica).
Posibles alteraciones pulmonares crónicas e inmunosupresión (exposición crónica).
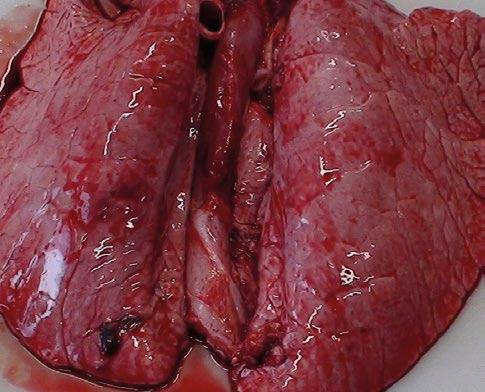
Imagen 1. Pulmón de cerdo afectado por la exposición a fumonisinas.
Los análisis laboratoriales suelen mostrar:
Lesiones histológicas de edema pulmonar interlobular masivo.
Apoptosis hepática y retención biliar.
Aumento de los niveles séricos de AST, GGT, bilirrubina y colesterol.
Fusión y atrofia de las vellosidades intestinales (Imagen 3), lo que reduce la capacidad de absorción de nutrientes.
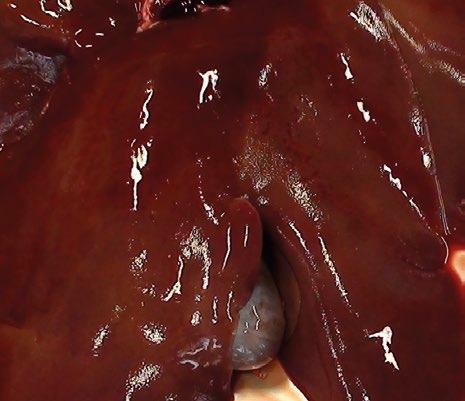
Imagen 2. Hígado de cerdo afectado por la exposición a fumonisinas.
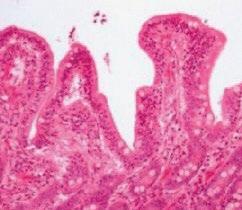
Imagen 3. Alteración de las vellosidades intestinales del íleon por exposición a fumonisinas.
La zearalenona es reconocida por su marcado tropismo hacia el sistema reproductor.
Atraviesa las membranas celulares (p. ej. células uterinas), uniéndose a los receptores citosólicos de E2 (estradiol 17b) y formando un complejo receptor ZEN-E2 (ZEN-E2R). Este complejo pasa al núcleo celular y se une a los receptores nucleares específicos de E2, lo que impide la formación del complejo hormonareceptor.
Como consecuencia, se produce la activación del gen responsable de la síntesis de ARNm (generalmente estimulada por E2), aumentando la actividad de la ARN polimerasa y de la síntesis de proteínas uterinas inducidas por estrógenos, lo que se traduce en efectos anabólicos y reproductores similares a los inducidos por estrógenos.
Los efectos estrogénicos se manifiestan en la forma de:
Pseudogestación.
Reducción de la fertilidad.
Síndrome de hiperestrogenismo.
Reducción del tamaño de las camadas.
Aumento del intervalo destete-celo (IDC).
La especie porcina es muy sensible a la ZEN y la toxina parental se metaboliza, principalmente, a α-zearalenol (α-ZEL) en esta especie, presentando este metabolito una mayor potencia estrogénica que la ZEN.
Las cerdas prepúberes parecen ser un grupo de edad muy sensible a los efectos de la toxina.
La ocratoxina A es una potente inhibidora de la síntesis proteica con propiedades nefrotóxicas, carcinogénicas, teratogénicas, inmunotóxicas y, posiblemente, neurotóxicas.
La ocratoxicosis aguda se caracteriza por la afectación renal (nefropatía), mientras que en los casos de ocratoxicosis crónica los primeros signos se presentan en forma de reducción del consumo de pienso y de ganancia de peso, observándose deshidratación, diarrea, poliuria y polidipsia.
El deoxinivalenol se une a la subunidad ribosómica 60S, inhibiendo la síntesis de proteínas y ácidos nucleicos, desencadenando un estrés ribotóxico que conduce a la activación de quinasas, MAPKs y sus vías de señalización.
La exposición a esta micotoxina se asocia con alteraciones digestivas, inmunitarias y reproductivas, siendo frecuente la observación de vómitos y severa afectación de la función epitelial intestinal.
El cerdo se considera la especie más sensible a la exposición al DON5.
A nivel intestinal se produce un deterioro de la integridad y función de la barrera intestinal, lo que se traduce en una menor capacidad de absorción de nutrientes, así como una alteración de la respuesta inmunitaria intestinal local, desencadenando y potenciando los fenómenos inflamatorios.
Por ello, los principales signos de toxicosis por DON son de tipo gastrointestinal, observándose:
Malestar abdominal.
Diarrea que podría estar asociada a la inhibición de la actividad del transportador dependiente de sodio-glucosa (SGLT-1).
Vómitos.
Anorexia.
Reducción de la ganancia de peso.
Los efectos del DON sobre la función reproductiva se han evidenciado en diferentes estudios y se ha señalado que se originan en las alteraciones en la maduración de los ovocitos y del desarrollo embrionario, junto con la disminución de la ingesta de alimentos.
Además, se ha observado que:
El DON tiene efectos directos dosisdependientes sobre la esteroidogénesis y la proliferación de células de la granulosa, afectando a la función ovárica y, en consecuencia, al rendimiento reproductivo en cerdos.
Los ovocitos de cerdas jóvenes son más sensibles que los de cerdas cuando se exponen a DON durante la maduración in vitro.
La exposición a corto plazo a dosis relativamente altas de DON (3 y 5,5 mg/kg pienso) puede perjudicar la reproducción y el desarrollo fetal en animales.
Es importante señalar los fenómenos de coocurrencia del DON y las fumonisinas, tal y como puso de manifiesto un estudio6 que revelaba la existencia de una interacción sinérgica y aditiva entre DON y FB1 a nivel intestinal.
Recientemente, en un estudio in vitro se ha demostrado que los niveles umbral de DON y ZEN (50,6 μM y 62,8 μM para DON y ZEN, respectivamente) pueden causar un deterioro significativo de la motilidad espermática y afectar a los parámetros morfológicos y de viabilidad del semen de verraco.
En este caso, DON y ZEN demostraron tener efectos tóxicos individuales y combinados sobre el semen de verraco in vitro7 .
La toxina T-2 interactúa con la peptidil transferasa de la subunidad ribosómica 60S, inhibiendo la síntesis proteica, de ARN y de ADN, induciendo apoptosis y necrosis en algunos tipos celulares, así como peroxidación lipídica, con la consiguiente alteración de la integridad de la membrana celular.
El sistema inmunitario es una de las principales dianas de la toxina T-2, atribuyéndosele una actividad inmunomoduladora dual: estimulación a dosis bajas e inhibición a dosis altas.
Interfiere con la maduración de las células presentadoras de antígenos, alterando los niveles de anticuerpos de proliferación linfocitaria, lo que conduce a una mayor susceptibilidad a las enfermedades infecciosas.
Otros hallazgos relacionados con la exposición a toxina T-2 son:
Necrosis y ulceración en el tracto digestivo.
Anorexia.
Leucopenia.
Inhibición de la eritropoyesis.
Efectos reproductivos y teratogénicos: alteración del citoesqueleto de los ovocitos porcinos y efectos inhibitorios sobre la producción de esteroides inducida por IGF-I y FSH en las células de la granulosa.
La amenaza de las micotoxinas en la alimentación porcina sigue siendo un problema mundial que podría intensificarse debido al fenómeno del calentamiento global.
Teniendo en cuenta la gran variabilidad en los efectos de las micotoxinas, el problema es bastante complejo, existiendo muchos retos de futuro en este campo de investigación.
Las micotoxinas afectan a la salud, la función reproductiva y el rendimiento del ganado porcino, con importantes repercusiones económicas para el ganadero, debiendo prestarse especial atención a los signos clínicos vagos a largo plazo, así como a los signos relacionados con alteraciones recientes de la alimentación.
Dada la alta probabilidad de exposición a varias micotoxinas simultáneamente, los estudios destinados a identificar e interpretar sus complejas interacciones (efectos sinérgicos, aditivos o antagónicos) in vivo es fundamental.
Otro reto es la necesidad de realizar diagnósticos precisos y a tiempo en el campo.
El muestreo en el momento adecuado de las muestras apropiadas y la selección de técnicas de laboratorio de última generación tienen un efecto significativo en la precisión del diagnóstico y el control de la micotoxicosis en las explotaciones.
La exploración de los mecanismos de acción de las micotoxinas a nivel molecular y celular, así como la investigación de nuevos biomarcadores de exposición son algunos de los retos futuros en el campo del diagnóstico de la micotoxicosis en el ganado porcino.
Además, las nuevas estrategias de detoxificación y el desarrollo de productos capaces de inducir la biotransformación de las micotoxinas en formas no tóxicas serán de gran ayuda en el campo de la prevención y el control de la micotoxicosis desde un enfoque más personalizado.
Micotoxinas – Una amenaza invisible para la salud y productividad porcina DESCÁRGALO EN PDF
Referencias disponibles en la versión web del artículo en nutrinews.com
Xilanasa y beta-glucanasa en su justa medida
•Mejora la digestibilidad de dietas complejas
•Reduce los costes de alimentación
•Permite dosis variables en busca del beneficio óptimo
• Estable hasta los 90oC
Patricio Bessone
Director Técnico Comercial Avicultura – CLADAN
En el mundo de las micotoxinas existe mucha investigación científica e información recopilada a través de los años, que demuestra fehacientemente que, ante la presencia de éstas en los ingredientes principales de nuestros alimentos balanceados, los resultados productivos se verán afectados y esto se traducirá en pérdidas económicas significativas para el productor.
Repasemos entonces qué son las micotoxinas, cuáles son las más conocidas, estudiadas y qué tipo de daño pueden ocasionar en animales monogástricos.
Son compuestos tóxicos producidos como metabolitos secundarios por diversas especies de hongos filamentosos. Hasta la fecha, se han identificado más de 200 especies capaces de sintetizar estas sustancias.
Entre las de mayor relevancia, se destacan la aflatoxina B1, zearalenona, ocratoxina, fumonisinas y los tricotecenos, dentro de los cuales sobresalen el deoxinivalenol (DON) y la toxina T-2.
Si bien nombramos a las que poseen mayor importancia en nuestra industria, se está empezando a tener en cuenta y en consecuencia comenzando a estudiar a las llamadas micotoxinas emergentes que si bien no están reguladas hasta el momento comienzan a tomar una mayor importancia en su investigación.
Numerosos estudios han demostrado que la exposición a micotoxinas, ya sea a través de episodios agudos asociados a altas concentraciones o por la ingestión continua de niveles moderados durante períodos prolongados, afecta negativamente la salud y el rendimiento de las aves.
Sus efectos pueden manifestarse tanto de manera subclínica como clínica, incluyendo la aparición de hematomas y hemorragias, daño en órganos clave como hígado y riñones, inmunosupresión, lesiones en la cavidad oral, trastornos digestivos y una menor eficiencia en la digestión, absorción y utilización de nutrientes.
En artículos anteriores, hemos planteado que en muchos casos de la práctica diaria la teoría no condice con los resultados obtenidos.
En muchas ocasiones se da la situación de no encontrar niveles altos de estas toxinas en los alimentos o cereales (la toma de muestras juega un rol muy importante), pero sí tenemos sintomatologías a campo que coinciden plenamente con un cuadro de micotoxicosis.
En contrapartida, nuestros laboratorios detectan altos niveles de alguna micotoxina en particular, pero los resultados a campo pueden no haber sufrido perdida de performance y las aves no han presentado sintomatologías asociadas.
De hecho, en el artículo anterior mostramos un caso práctico dónde los niveles de micotoxinas fueron elevados en distintos momentos del año, pero la pérdida de resultados sólo se manifestó en algún mes puntual.
Este caso estuvo directamente asociado a una reducción del consumo, pero en otras oportunidades, de baja eficiencia, el mismo no se vio afectado. Esto nos invitó a realizarnos distintas preguntas y plantear distintas estratégias ante distintos escenarios.
Por supuesto que, para poder plantear dichos planes de acción, hacía falta aumentar la medición, y procesar la información recolectada para luego poder comprender mejor el comportamiento de las micotoxinas ante distintos escenarios que varían año tras año según las condiciones climáticas en los cultivos y su posterior almacenamiento.
Desde nuestro laboratorio, y siempre con el único objetivo de aportar una mirada como meros observadores de la realidad, comenzamos a tratar de entender el comportamiento de estas toxinas desde distintos ángulos e intentar contestar algunas de las preguntas que nos hemos planteado.
Dados los hallazgos de estudios realizados anteriormente, en esta oportunidad no nos focalizamos tanto en los niveles elevados o máximos encontrados de una micotoxina en particular, sino que el foco estuvo puesto en analizar y estudiar los porcentajes de positividad.
El objetivo fue estudiar la prevalencia, muestras con valores positivos, la co-ocurrencia (muestras con 2 o más micotoxinas positivas detectadas) y las combinaciones de estas a lo largo del tiempo y su aparición en distintas cosechas.
En el siguiente gráfico podemos observar cómo fue variando la prevalencia de cada micotoxina a lo largo del tiempo según nuestros resultados de laboratorio.
Gráfica 1. Heatmap anual de prevalencia por micotoxina.
Esto nos ayuda a comenzar a entender que la prevalencia y la composición de estas es variable provocando nuevos desafíos año tras año.
Si bien es importante comprender la prevalencia de cada micotoxina por separado , toma mayor preponderancia conocer los escenarios de co-ocurrencia (2 o más micotoxinas positivas) y cómo son las combinaciones de las mismas.
Tu escudo frente a las
Combate la amenaza de las micotoxinas y el estrés oxidativo en un solo producto
MYCOSAFE™ es una línea de producto desarrollada científicamente para ayudar a los animales en:
→ Mitigación de las micotoxinas
→ Mejora de la resiliencia durante desafíos alimentarios
→ Reducción del impacto del estrés oxidativo
→ Mantenimiento del confort intestinal y la estabilidad alimentaria
Gama de productos MYCOSAFE™ – diseñada para tus necesidades.
MYCOSAFE Core
Protección esencial
MYCOSAFE Plus
Protección mejorada para dietas basadas en cereales
VILOFOSS – La nutrición que marca la diferencia
Protección extendida para ensilados y desafíos relacionados con el almacenamiento
VILOFOSS desarrolla soluciones nutricionales basadas en la ciencia, apoyando a los ganaderos y productores de alimentación animal con productos seguros, de confianza y adaptados a las condiciones reales de las granjas.
Más información en vilofoss.com/es
Esto puede ser de utilidad para empezar a resolver preguntas que han ido surgiendo como:
¿Ciertas combinaciones de micotoxinas generan mayor sinergia negativa?
¿Existe una combinación que presente tendencia a deprimir el consumo más que otra?
En la siguiente tabla se muestran las distintas combinaciones tanto a nivel país como casos específicos de dos empresas en zonas geográficas distintas.
Combinación
Combinación EMPRESA A % total
Aflatoxinas + T2 + DON + Zearalenona + Ocratoxina + Fumonisina
T2 + DON + Zearalenona + Ocratoxina
+ T2 + Zearalenona + Ocratoxina
+ Zearalenona + Ocratoxina 8,3%
Aflatoxinas + T2 + DON + Zearalenona + Ocratoxina 3,7%
Aflatoxinas + T2 + Ocratoxina + Fumonisina 2,2%
T2 + DON + Zearalenona + Ocratoxina + Fumonisina
Zearalenona + Fumonisina
Aflatoxinas + Zearalenona + Ocratoxina
+ Zearalenona
+ Zearalenona + Ocratoxina
+ Fumonisina
+ DON
+
Combinación EMPRESA B % total
Aflatoxinas + DON + Fumonisina 8,8%
Aflatoxinas + T2 + Fumonisina 8,4%
Aflatoxinas + Fumonisina 8,2%
Aflatoxinas + T2 + DON + Fumonisina 5,8%
Aflatoxinas + DON 4,5% T2 + Fumonisina 2,3%
Aflatoxinas + T2 + DON + Zearalenona + Ocratoxina + Fumonisina 1,8%
Aflatoxinas + Zearalenona + Fumonisina 1,8%
DON + Fumonisina 1,4%
Zearalenona + Fumonisina 1, 2%
Empresa A
Se puede observar que distintas empresas tendrán distinta prevalencia de combinaciones y probablemente en consecuencia pueden llegar a tener distintos tipos de desafío.
Siguiendo con el estudio y la comparativa de distintos escenarios que requieran buscar distintas estrategias, observemos cómo son los perfiles de micotoxinas y su prevalencia para los ingredientes principales de éstas dos empresas.
Empresa B
Claramente se observa que la composición de las micotoxinas de un mismo ingrediente podrá ser completamente distinta teniendo en cuenta distintas zonas geográficas dónde éste haya sido cosechado.
Expeller de soja Maíz Harina de soja
Soja desactivada Soja cruda
Gráfica 2. Perfil de micotoxinas por empresa.
Hablemos un poco del consumo de alimento en los animales. Hemos mencionado que puede suceder que el consumo se deprima por elevada concentración de micotoxinas, pero ¿podemos encontrar una combinación que afecta más que otra?
Para sumar datos a la investigación de este tema, hemos analizado en distintos períodos la aparición de las distintas combinaciones y las hemos correlacionado con datos de consumo de alimento.
Los resultados obtenidos muestran una leve tendencia a que la prevalencia de las 6 micotoxinas juntas y la combinación Afla+DON+Fumonisina, pueden mostrar señales de disminución del consumo.
Protección focalizada
Bacillus licheniformis DSM28710:
▶ Prevención de problemas intestinales causados por Clostridium perfringens
▶ Mejora el retorno de inversión
▶ Estable durante el peletizado y los procesos de digestión
▶ Seguro para todas las especies
Gráfica 3. Diferencia de consumo asociada a combinaciones de micotoxinas. Comparación respecto a meses sin presencia de la combinación evaluada.
Para seguir aprendiendo sobre el comportamiento de las micotoxinas y cómo pueden afectar a los resultados productivos, mostraremos otro caso práctico en dónde se puede observar cómo un pico elevado de prevalencia recurrente puede ser un disparador de desafíos importantes para los resultados productivos.
En los meses de marzo, abril y mayo, en la Argentina se da una transición en dónde se consumen finales de cosechas y se comienza a consumir maíz y soja de campañas nuevas.
En los siguientes gráficos, se muestra el índice mensual de prevalencia de micotoxinas evaluado a lo largo de los años por la Empresa C (Llamamos Índice mensual al promedio de prevalencias positivas de las seis micotoxinas) y además se puede observar resultados productivos mensualizados también a lo largo de los años.
Expeller de soja Maíz Harina de soja Soja desactivada Soja cruda
Gráfica 4. Índice mensual de prevalencia empresa C.





BeFeed trabaja para revolucionar la forma en que entendemos la nutrición animal. Nuestra visión es ofrecer productos de alta calidad que impulsen la productividad, preservando al mismo tiempo el bienestar animal y la sostenibilidad ambiental.
Mejoran la estabilidad y conservación del alimento para animales, incluyendo conservantes, antioxidantes y agentes que facilitan su manejo y calidad.
Aportan nutrientes esenciales como vitaminas, minerales y aminoácidos, mejorando la salud, el crecimiento y la eficiencia alimenticia.
Optimizan el rendimiento productivo, la digestión y reducen el impacto ambiental, como las emisiones de gases en la producción.
Empresa C (caso práctico): Relación Peso/Conversión año vs año
Ene Feb Mar Abr May Jun Jul Ago Sep Oct Nov Dic Mes de faena
Año 2022 2023 2024 2025 2026 (hasta abril)
Gráfica 5. Relación peso/conversión año vs año empresa C.
Las condiciones climáticas del período abril-mayo podemos decir que son similares a las de septiembre-octubre. Si observamos los resultados productivos, en los meses de septiembre y octubre, los mismos están por encima de los meses abril-mayo.
En contrapartida, si vemos con detenimiento el gráfico de prevalencia de micotoxinas, si bien el porcentaje de positividad no es tan elevado, se puede observar un claro pico máximo de prevalencia para todos los ingredientes en el mes de abril.
Esto podría ser una de las razones por las cuales los resultados productivos de otoño argentino, no tienen la misma performance que los de primavera (también argentina).
Otro dato importante a tener presente es, que si miramos las curvas y puntos en los meses de abril y mayo, los resultados son mucho mas variables que en el resto de los meses.
Si hablamos sólo del factor de micotoxinas, es muy probable que existan campañas dónde la proliferación de hongos haya sido menor y por consecuencia la producción de sus metabolitos tambien lo haya sido.
Esto reafirma la hipótesis de que no todas las campañas son iguales.
Para finalizar, durante dos años se le dio segumiento a la concentración de micotoxinas de alimentos preiniciadores de 4 granjas.
Para no distorsionar el análisis, todas las granjas poseían las mismas condiciones de estructura, número de animales, misma zona geográfica.
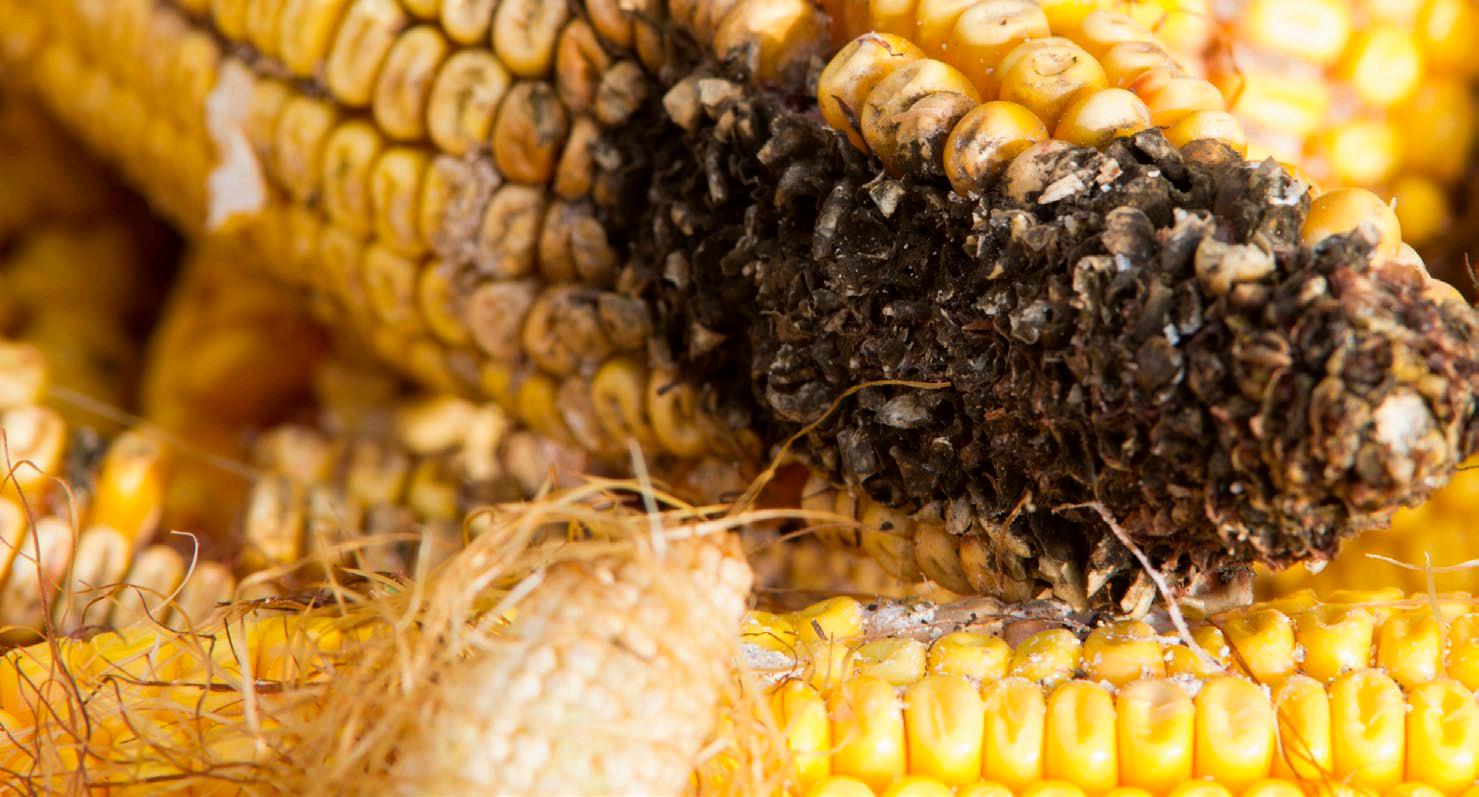
Los 4 resultados son 4 ejemplos extraídos de dicho estudio en dónde se puede ver y analizar que distintas combinaciones de micotoxinas y distintos niveles de las mismas mostraron comportamientos de performance diferentes.
al final del ciclo.
Con esto se refuerza la idea de que cada empresa debe analizar, medir y poder encontrar sus propios niveles de seguridad mínima para aceptar ingredientes con micotoxinas positivas.
La prevalencia de micotoxinas en los ingredientes es cada vez mayor a nivel global y año tras año toma mayor relevancia realizar un buen muestreo y seguimiento de los análisis de ingredientes y alimentos.
Es muy importante definir niveles máximos de recibimiento con base a un buen análisis de datos.
Evaluación funcional de la fitasa: hacia una
Diferentes zonas productivas de maíz y soja pueden contener distintos perfiles de micotoxinas sumado a diferentes combinaciones de co-ocurrencia.
Las diferentes combinaciones de co-ocurrencia pueden afectar de distintas maneras los resultados productivos.
Se vislumbró una señal en dónde ciertas combinaciones de micotoxinas pueden afectar en mayor medida que otras el consumo de los animales.
Rahul AVI, Técnico de ventas del Grupo Nuproxa, Etoy, Suiza
Una salud intestinal óptima es fundamental para lograr un crecimiento adecuado y una utilización eficiente del alimento en pollos de engorde. Sin embargo, la coccidiosis sigue siendo un gran desafío, ya que altera el epitelio intestinal y limita la absorción de nutrientes.
Se evaluó un complejo poliherbal como herramienta natural para reforzar la resistencia intestinal bajo un desafío por coccidia. Esta estrategia promovió una mayor integridad intestinal durante la exposición a Eimeria, minimizó el desarrollo de lesiones y ayudó a mantener los parámetros productivos.
especialmente porque las aves están expuestas a diversos factores estresantes que comprometen la integridad intestinal.
Entre los más impactantes se encuentra la coccidiosis, una infección protozoaria que ataca al epitelio intestinal y altera la digestión y la absorción normales, lo que conlleva peores rendimientos productivo, peor índice de conversión y un mayor riesgo de infecciones bacterianas secundarias.
Si bien la higiene, la gestión de la cama y la ventilación ayudan a reducir la carga de patógenos, no previenen completamente la exposición a los ooquistes de Eimeria
Los aditivos anticoccidiales añadidos al pienso han sido utilizados ampliamente y suelen ser eficaces.
Sin embargo, con el tiempo, muchas cepas de coccidias han desarrollado resistencia.
Las vacunas, tanto atenuadas como no atenuadas, son otro método utilizado para desarrollar inmunidad.
A menudo requieren una aplicación precisa y pueden causar infecciones leves en las aves para activar la protección. Algunas aves vacunadas pueden mostrar un rendimiento reducido al principio, especialmente en situaciones de estrés.
de coste y practicidad, especialmente en sistemas grandes o al aire libre.
Las estrategias de manejo como la cama limpia y seca y la ventilación adecuada reducen la carga parasitaria, pero requieren un control estricto y aun así no pueden eliminar la exposición a los ooquistes.
Para reducir el riesgo de estos problemas, los productores recurren cada vez más a estrategias naturales que ayudan a mantener el equilibrio de la microbiota intestinal y refuerzan las defensas inmunitarias.
Entre ellas se incluyen aditivos alimentarios de origen vegetal, como:
Aceites esenciales.
Oleorresinas.
Extractos de plantas.
Muchos de los cuales ya se utilizan ampliamente en la industria de los piensos.
El objetivo de este enfoque no es solo eliminar los parásitos directamente, sino también fortalecer las defensas naturales del animal y mejorar la salud intestinal en general.
En este contexto, NuxaSan™, una fórmula poliherbal que contiene compuestos bioactivos como saponinas, taninos y flavonoides, ofrece un enfoque prometedor.
Estos fitoquímicos son reconocidos por su capacidad para:
Modular las respuestas inmunitarias.
Reducir el estrés oxidativo.
Ayudar a mantener la integridad estructural de la barrera intestinal y el rendimiento general de las aves.
En la siguiente sección se describen los estudios in vitro e in vivo de esta mezcla poliherbal (PHM) y su eficacia.
La viabilidad de los esporozoitos se evaluó a las 24, 48 y 72 horas post-inoculación (HPI).
Se llevó a cabo un estudio in vitro en Poulpharm, Bélgica, para evaluar el efecto del producto sobre la viabilidad de los esporozoitos de Eimeria
El estudio se centró en dos especies, E. tenella y E. maxima, que son las más importantes debido a su alto nivel de virulencia y su amplia presencia.
Los resultados mostraron que, para E. tenella, la PHM redujo la viabilidad de los esporozoitos de forma significativa en un 54 % a las 24 horas, un 97 % a las 48 horas y un 100 % a las 72 horas.
Se utilizaron cuatro grupos de tratamiento:
Control negativo (PBS).
Control de disolvente (DMSO).
Salinomicina a 12 mg/kg
Mezcla poliherbal (PHM; NuxaSan ™) a 500 mg/kg.
Estas reducciones fueron muy similares a las de la salinomicina. Paralelamente, en E. maxima, la PHM eliminó completamente los esporozoitos en 24 horas; mientras que la salinomicina redujo los esporozoitos de E. maxima en solo un 34 %.
Los resultados de los porcentajes de reducción de esporozoitos para ambas especies se muestran en la Figura 1.
E. maxima 24 HPI
Reducción de los esporozoitos, %
Reducción de los esporozoitos, %
100 80 60 40 20 0
DMSO SAL PHM
E. tenella 24 HPI
DMSO SAL PHM
Reducción de los esporozoitos, %
Reducción de los esporozoitos, %
DMSO SAL PHM
E. tenella 48 HPI 100 80 60 40 20 0
DMSO SAL PHM
E. maxima 72 HPI
Reducción de los esporozoitos, %
Reducción de los esporozoitos, %
100 80 60 40 20 0
DMSO PHM
E. tenella 72 HPI
100 80 60 40 20 0
DMSO SAL PHM
Figura 1. Efecto de los tratamientos sobre la reducción de esporozoitos de Eimeria en diferentes momentos, media ± SEM, P < 0,001).
Este ensayo se llevó a cabo en condiciones controladas en la Universidad de Georgia, EE. UU. Para el estudio se utilizaron un total de 288 pollos de engorde machos (Cobb 500) de un día de edad.
Los animales se asignaron aleatoriamente a tres grupos:
Control sin desafío (NC).
Control con desafío (CC).
Desafío con mezcla poliherbal (PHM).
Cada grupo tenía ocho réplicas con doce aves por jaula.
Los tratamientos fueron los siguientes:
El NC recibió una dieta básica sin desafío con Eimeria.
El CC recibió una dieta básica y un desafío con Eimeria
El PHM recibió una dieta básica suplementada con 500 mg/kg de NuxaSan y el desafío con Eimeria.
Todas las aves fueron alimentadas ad libitum, y las dietas cumplieron con las directrices nutricionales de Cobb 500.
El día 14, las aves de los grupos CC y PHM fueron inoculadas por vía oral con una mezcla de Eimeria spp. que incluía E. acervulina (62.500 ooquistes), E. maxima (12.500 ooquistes) y E. tenella (12.500 ooquistes).
Las aves del grupo NC solo recibieron solución salina tamponada con fosfato. Desde el día 6 hasta el día 9 después de la infección, se recogieron muestras fecales para contar la eliminación de ooquistes.
El día 6 post-inoculación (DPI), se sacrificaron dos aves por jaula para evaluar las lesiones del duodeno, el yeyuno y el ciego. La evaluación de las lesiones se realizó siguiendo una escala estándar de 0 a 4.
Se recogieron muestras de tejido adicionales del yeyuno para realizar análisis histológicos, ensayos de enzimas antioxidantes y estudios de expresión génica, incluidos marcadores de uniones estrechas y citocinas proinflamatorias.
El peso de los pollos de engorde y el índice de conversión se muestran en la figura 2. El desafío con Eimeria redujo el peso corporal y el índice de conversión en el grupo CC.
Las aves que recibieron NuxaSan presentaron un mejor crecimiento durante y después del desafío. A los 20 y 28 días, su peso vivo fue significativamente mayor que el del grupo desafiado, CC.
El consumo y el índice de conversión también fueron mejores en el grupo PHM. El índice de conversión disminuyó un 7,79 % (días 14-20), un 6,79 % (días 20-28) y un 4,14 % (días 0-28) en el grupo PHM en comparación con el CC.
Los valores fueron casi similares a los del control no expuesto.
Figura 2. Efectos de la suplementación poliherbal sobre el peso vivo y el índice de conversión en pollos de engorde desafiados o no con Eimeria.
A los 6 DPI, los pollos de engorde del grupo CC mostraron lesiones graves en el duodeno, el yeyuno y el ciego (Figura 3). Los pollos del grupo PHM presentaron significativamente un menor número de lesiones y gravedad de éstas en duodeno y ciego.
Además, la inspección visual reveló menor inflamación, coágulos sanguíneos y moco en las aves del grupo PHM en comparación con las aves no tratadas expuestas al desafío.
Figura 3. Efecto de la suplementación poliherbal sobre las puntuaciones de las lesiones en el duodeno, el yeyuno y el ciego de los pollos de engorde a los 6 DPI bajo desafío con Eimeria.
La mezcla poliherbal también ayudó a modular la inflamación intestinal en los pollos desafiados con Eimeria. Éstos mostraron una menor expresión de IL-1β y TNF-α, que son marcadores proinflamatorios clave (Figura 4).
Estos valores se acercaron más a los del grupo de control no expuesto. Al mismo tiempo, el estado antioxidante se vio reforzado por un aumento numérico de la actividad de la glutatión peroxidasa (GPX) (Figura 5).
Figura 4. Efecto de la suplementación polibotánica sobre la expresión relativa en el yeyuno de las citocinas proinflamatorias IL-1β y TNF-α en pollos de engorde bajo desafío con Eimeria.
Figura 5. Efectos de la suplementación polibotánica sobre los niveles de la enzima antioxidante GPX en el yeyuno de pollos de engorde expuestos a Eimeria.
Además de mejorar el rendimiento, la defensa antioxidante y reducir la inflamación, la suplementación con NuxaSan mostró otros beneficios clave para la salud intestinal en pollos de engorde expuestos a Eimeria.
La eliminación de ooquistes disminuyó notablemente entre 6 y 9 DPI.
La evaluación histológica también reveló una mejor altura de las vellosidades y estructura de las criptas en las aves suplementadas, lo que indica una morfología intestinal más estructurada.
Además, la expresión de las proteínas de unión estrecha en el yeyuno se vio influida positivamente por el PHM, lo que sugiere un fortalecimiento de la integridad intestinal a nivel molecular.
A medida que la industria avícola continúa su transición hacia soluciones más sostenibles y naturales, los aditivos fitogénicos podrían desempeñar un papel más importante en las estrategias de alimentación.
Estos hallazgos combinados de ensayos in vitro e in vivo mostraron efectos beneficiosos sobre la salud intestinal bajo el desafío de Eimeria
Proporcionan evidencia de que
Estos hallazgos combinados destacan la capacidad del NuxaSan para apoyar la estructura y la función intestinal bajo estrés protozoario.
Lo más importante es que estos efectos se observaron sin recurrir a los anticoccidiales sintéticos convencionales.
Se pueden proporcionar referencias si se solicitan.
Estrategia poliherbal como herramienta para una óptima salud intestinal frente a un desafío por coccidia DESCÁRGALO EN PDF
Los avances en genética, nutrición y manejo han mejorado significativamente el rendimiento avícola, permitiendo que la industria satisfaga la creciente demanda mundial de proteína asequible y de alta calidad.
Para mantener estas ganancias de productividad, las aves se alimentan comúnmente con dietas de alta energía (DAE) que favorecen el crecimiento rápido, mejor eficiencia alimenticia y ciclos de producción más cortos.
Sin embargo, la alimentación prolongada con dietas de alta energía puede aumentar el riesgo de trastornos metabólicos, incluyendo el síndrome del hígado graso, la deposición excesiva de grasa abdominal, lesiones en almohadillas plantares e hipertensión pulmonar.
Las dietas de alta energía elevan la necesidad de un metabolismo eficiente de las grasas, y las deficiencias pueden provocar hígado graso y reducir el rendimiento.
El exceso de grasa en las regiones abdominal y visceral es indeseable para los productores de carne, ya que generalmente se considera un desperdicio.
Por ello, la industria avícola busca maximizar el rendimiento de carne magra.
La colina es un nutriente esencial y un importante agente liotrópico que desempeña un papel clave en el metabolismo de las grasas.
Se ha demostrado que la suplementación de colina en dietas de alta energía reduce la acumulación excesiva de grasa y ayuda a prevenir el síndrome del hígado graso en las aves.
El cloruro de colina es la fuente más utilizada de colina suplementaria en alimentos para animales; sin embargo, tiene varias limitaciones. Es altamente higroscopípico, inestable, corrosivo y puede interactuar negativamente con las premezclas vitamínicas.
Además, su eficiencia de absorción es relativamente baja, ya que solo una parte es aprovechada por el ave, mientras que el resto es convertido por la microflora intestinal en trimetilamina (TMA), un metabolito que puede afectar el metabolismo hepático y contribuir a olores a pescado en los huevos.
Estos desafíos han impulsado la búsqueda de alternativas más eficientes que puedan apoyar mejor la función hepática, el metabolismo de las grasas y el rendimiento productivo general en las aves.
Desarrollado como una alternativa fitogénica científicamente validada al cloruro de colina sintético, Kolin Plus FC representa un nuevo enfoque en la nutrición metabólica.
En lugar de funcionar únicamente como un sustituto de nutrientes, Kolin Plus FC apoya la salud hepática y el metabolismo de las grasas a través de múltiples vías biológicas interconectadas.
Formulado a partir de ingredientes botánicos cuidadosamente seleccionados y ricos en compuestos bioactivos, Kolin Plus FC actúa influyendo en procesos metabólicos clave involucrados en la síntesis lipídica, la movilización de grasas, la oxidación de ácidos grasos y la utilización de energía.
Este mecanismo de acción multivía permite que el ave utilice los nutrientes de manera más eficiente, al mismo tiempo que apoya la función hepática óptima.
Respaldado por investigación transcriptómica y estudios de validación del rendimiento, Kolin Plus FC ejemplifica el cambio de la suplementación convencional de nutrientes hacia la optimización metabólica impulsada por la ciencia.
Uno de los avances más prometedores en nutrición animal ha sido la aplicación de la transcriptómica para comprender cómo las intervenciones dietéticas influyen en las funciones biológicas.
La transcriptómica permite a los investigadores evaluar miles de genes simultáneamente e identificar las vías moleculares afectadas por las intervenciones nutricionales.
Para dilucidar la base molecular de la actividad del Kolin Plus FC, se realizó un perfil de expresión génica hepática en pollos de engorde sometidos a dietas deficientes en colina.
El análisis identi có genes clave y vías de señalización involucradas en la síntesis, movilización, oxidación y regulación general de los lípidos hepáticos.
Los patrones de expresión génica se estudiaron para cuatro grupos de dietas: normal, de ciente en cloruro de colina, Kolin Plus FC y CCL, utilizando microarray el día 42.
El análisis de agrupamiento jerárquico se realizó sobre 12.614 genes diferencialmente expresados (DEG) con expresión similar.
Uno de los hallazgos más significativos de la investigación transcriptómica fue la modulación de genes involucrados en la síntesis hepática de grasas. Genes clave asociados con la lipogénesis—incluyendo el Receptor Gamma Activado por Proliferador de Peroxisomas (PPARG), la Acetil-CoA Carboxilasa Alfa (ACACA), la ATP Citrato Liasa (ACLY) y la Lipasa-C, Tipo Hepático (Lipasa Hepática) (LIPC)—fueron regulados de una manera que favorece un metabolismo lipídico más saludable.
Estos genes desempeñan funciones importantes en: síntesis de ácidos grasos, acumulación de triglicéridos, almacenamiento de lípidos y regulación hepática de lípidos.
Al influir en estas vías, Kolin Plus FC contribuye a crear un entorno metabólico que favorece la utilización eficiente de nutrientes, reduciendo la deposición excesiva de grasa en el hígado.
(Tabla 1, Figura 1).
LIPC (-)
Si bien es importante reducir la síntesis de grasas, una salud metabólica óptima también requiere una utilización eficiente de las grasas almacenadas.
El análisis transcriptómico reveló una expresión mejorada de genes asociados con la oxidación de ácidos grasos, incluidos:
Carnitina Palmitoiltransferasa 1A(CPT1A).
Coactivador Gamma del Receptor Activado por Proliferador de Peroxisomas1 Alfa(PGC-1 α) (PPARGC1A).
Subunidad Beta del Complejo Multienzimático Trifuncional Hidroxiacil-CoA Deshidrogenasa (HADHB).
Proteína que contiene el dominio fosfolipasa similar a la patatina2 (PNPLA2).
KOLIN PLUS FC ABCG5/8 PPARG
KOLIN PLUS FC (+) (-) (-) (-)
Citrato ACLY
Vía de síntesis de los ácidos grasos
Acetil-CoA
Malonyl CoA
Palmitato Ácidos grasos complejos
Triglicéridos
Acetil-CoA
ACACA (-) KOLIN PLUS FC
Figura 1. Efecto de Kolin Plus FC sobre la expresión génica relacionada con la lipogénesis de novo.
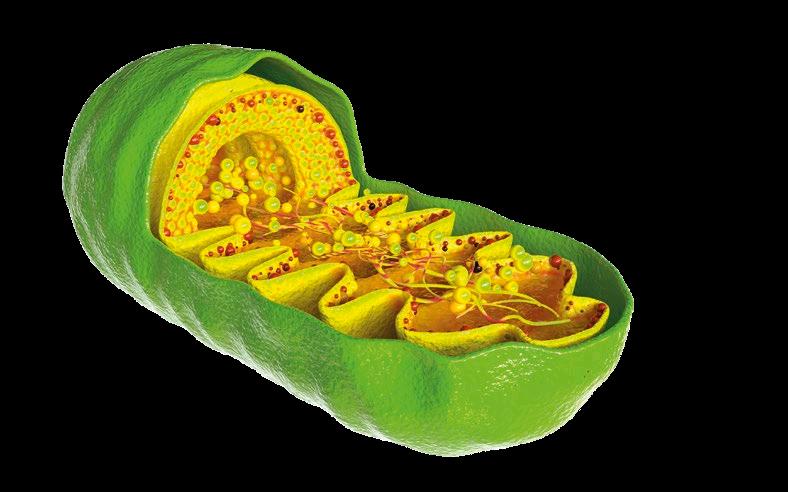
Estos genes están directamente involucrados en el transporte de ácidos grasos hacia las mitocondrias y su conversión en energía utilizable a través de la β -oxidación.
En términos prácticos, esto significa que el ave se vuelve más eficiente en el aprovechamiento de la energía dietética en lugar de almacenarla como grasa en exceso.
Estudios adicionales demostraron niveles circulantes elevados de L-carnitina en las aves suplementadas.
La L-carnitina actúa como sistema de transporte que lleva los ácidos grasos de cadena larga hacia las mitocondrias, donde se oxidan para generar energía.
La mejora en el estatus de L-carnitina se ha asociado con:
Mayor aprovechamiento de grasas
Reducción de la deposición de grasa en la canal
Mayor eficiencia energética
Mejor rendimiento productivo
Este hallazgo proporciona un importante vínculo fisiológico entre los cambios moleculares y los resultados (Tabla 1,
Acido Graso
Acido Graso FACS
Acil-CoA citosol
Acil-CoA matriz
Ácido Graso
KOLIN PLUS FC +
KOLIN PLUS FC + β-oxidación
Acetyl-CoA
Ciclo TCA
Cadena de Transporte de Electrones
Lipólisis
beta
Acidos grasos
Figura 2. Efecto de Kolin Plus FC sobre el catabolismo de los lípidos (lipólisis y beta-oxidación de ácidos grasos).
Kolin Plus FC reguló al alza de forma significativa los genes implicados en el transporte y la oxidación de ácidos grasos (CPT1A, PNPLA2, PPARGC1A), al tiempo que reguló a la baja reguladores lipogénicos clave (PPARG, ACLY y ACACA).
Este perfil de expresión indica un metabolismo energético mitocondrial mejorado, una mayor movilización y oxidación de los ácidos grasos y una síntesis lipídica de novo reducida.
Acil-carnitina
Acil-carnitina
Exterior Celular
Interior Celular
Carnitina
Carnitina
Matriz Mitocondrial
Figura 3. Efecto de Kolin Plus FC sobre los genes relacionados con la beta-oxidación de los ácidos grasos.
Gen Normal vs Deficiencia de Cloruro de Colina (cambio logarítmico)
Lipasa Hepática (Lipasa C, Tipo Hepático) (LIPC)
Miembro 5 de la Subfamilia G del Cassette de Unión a ATP (ABCG5)
Receptor Gamma Activado por Proliferador de Peroxisomas (PPARG)
ATP Citrato Liasa (ACLY)
Carnitina
Palmitoiltransferasa 1A (CPT1A)
Coactivador 1-alfa del receptor gamma activado por proliferadores de peroxisomas (PPARGC1A)
Proteína 2 que contiene un dominio de fosfolipasa tipo patatina (lipasa de triglicéridos del tejido adiposo, ATGL) (PNPLA2)
Subunidad Beta del Complejo Multienzimático Trifuncional Hidroxiacil-CoA Deshidrogenasa (HADHB)
Miembro 8 de la Subfamilia B del Cassette de Unión
ATP (ABCG8)
Acetil-CoA Carboxilasa Alfa (ACACA)
valor p (Normal vs Def)
Kolin Plus FC vs Deficiencia de Cloruro de Colina (cambio logarítmico)
valor p (Kolin Plus FC vs Def)
Choline Chloride vs Choline Chloride Deficiency (cambio logarítmico)
valor p (Choline vs Def)
El verdadero valor de cualquier intervención nutricional radica en su capacidad para mejorar el rendimiento en granja.
La eficacia del Kolin Plus FC ha sido ampliamente validada mediante una serie de sólidos estudios de prueba de concepto realizados con modelos bien establecidos de deficiencia de colina en pollos de engorde.
En estos estudios, la deficiencia de colina fue inducida reemplazando parcialmente la harina de soya con aislaño protéico de soya, una fuente protéica baja en colina, creando un desafío nutricional controlado para evaluar el potencial sustituto de colina del Kolin Plus FC.
Las aves que recibieron la dieta deficiente en colina fueron divididas en diferentes grupos suplementados con cloruro de colina sintético o Kolin Plus FC, y comparadas con grupos control.
Los resultados demostraron consistentemente que Kolin Plus FC contrarrestó eficazmente los efectos adversos de la deficiencia de colina, restaurando:
Rendimiento de crecimiento,
Eficiencia de conversión alimenticia, Función hepática,
Estado de salud general a niveles comparables con los obtenidos con el uso de cloruro de colina sintético.
Nota: La variación en el número de genes se expresa en términos de log₂ y se presenta como la media de tres réplicas (2 muestras agrupadas equimolares por réplica).
Tabla 1. Representación del cambio de veces en la expresión génica seleccionada.
Estos estudios de prueba de concepto de alta calidad proporcionan sólida evidencia científica que respalda a Kolin Plus FC como una fuente confiable y efectiva de actividad de colina en la nutrición avícola.
Los hallazgos han sido corroborados adicionalmente mediante diversos ensayos de campo.
Mejora en la ganancia de peso corporal
delMejoraÍndice
Europeo de Producción (IEP)
El impacto positivo del Kolin Plus FC se re ejó también en parámetros clave de producción, incluyendo:
Mayor viabilidad
Mejor conversión alimenticia (CA)
Reducción de la acumulación de grasa
Estas mejoras reflejan el impacto práctico de la optimización del metabolismo lipídico y la función hepática. En lugar de actuar como un simple sustituto de la colina, este enfoque apoya múltiples vías interconectadas que, en conjunto, mejoran la eficiencia metabólica.
El futuro de la nutrición avícola va más allá de la simple suplementación de nutrientes, hacia una comprensión más profunda de cómo la nutrición influye en los sistemas biológicos.
Los avances en transcriptómica y nutrigenómica han demostrado que las tecnologías fitogénicas pueden regular la expresión génica, optimizar el metabolismo lipídico, apoyar la función mitocondrial y mejorar la eficiencia metabólica.
Al influir en vías clave involucradas en la síntesis de grasas, el transporte de lípidos y la oxidación de ácidos grasos, estas soluciones nutricionales de próxima generación ayudan a mejorar la salud hepática, la utilización de nutrientes y el rendimiento productivo.
La producción avícola moderna exige cada vez más soluciones que no solo sean efectivas, sino también sostenibles. Una mejor utilización de los lípidos significa que más energía dietética se dirige hacia fines productivos en lugar de perderse por un metabolismo ineficiente.
Esto puede contribuir a:
Mejor eficiencia alimenticia.
Menor utilización de recursos.
Reducción del impacto ambiental.
Mejora de la sostenibilidad económica.
A medida que la industria continúa buscando la nutrición de precisión y los sistemas de producción sostenibles, la optimización metabólica desempeñará un papel cada vez más importante.
Kolin Plus FC , respaldado por validación transcriptómica y estudios de rendimiento, ejemplifica este enfoque científico al apoyar la salud metabólica a través de múltiples vías biológicas, en lugar de funcionar únicamente como un sustituto convencional de la colina.
A medida que la industria avícola sigue enfocándose en eficiencia, rentabilidad y sostenibilidad, las soluciones fitogénicas científicamente validadas como Kolin Plus FC están redefiniendo la gestión metabólica dando forma al futuro de la nutrición avícola de precisión.
La ciencia detrás del Kolin Plus FC: más allá de la sustitución de colina DESCÁRGALO EN PDF
Alternativa Más Ecológica al Cloruro de Colina
Fernando Bacha Baz Nacoop, S.A.
La digestión postruminal comprende los procesos digestivos en el abomaso, intestino delgado y grueso.
En esta etapa se lleva a cabo la absorción de nutrientes provenientes de la fermentación ruminal y de los alimentos no degradados previamente, desempeñando un papel fundamental en el aprovechamiento energético y proteico del animal y además inevitable.
El estudio de la digestión postruminal es esencial para comprender la eficiencia alimentaria y optimizar la nutrición en los sistemas de producción animal, especialmente durante la fase de alta productividad.
Es aquí, en donde se absorben los nutrientes de alto valor biológico, los que son el resultado de la degradación ruminal, la síntesis microbiana y necesariamente los no degradables.
En animales de élite, los nutrientes absorbidos a través de la pared ruminal son insuficientes por sí solos, haciendo que la eficiencia intestinal y el control del paso de nutrientes sean determinantes.
Este proceso fisiológico fundamental se desarrolla en tres etapas claves dentro del tracto posterior del animal:
2
En el abomaso se secreta ácido clorhídrico y enzimas proteolíticas (como la pepsina).
Al disminuir el pH, la acidez desnaturaliza las proteínas que escapan del rumen (proteína no degradable o PND) y la proteína microbiana, preparándolas para ser digeridas de forma eficiente en el intestino.
El Intestino delgado es el lugar en donde el animal incorpora los nutrientes al resto del organismo.
La digestión de las proteínas se realiza por medio de las enzimas pancreáticas (tripsina, quimotripsina) y las secreciones intestinales, es aquí en donde se reducen los péptidos a aminoácidos libres, los cuales son absorbidos directamente en la pared intestinal.
La digestión de carbohidratos de reserva, parte del almidón logra pasar la fermentación microbiana en el rumen y es digerido en el intestino delgado por la enzima α-amilasa pancreática y la maltasa intestinal, transformándose en glucosa.
Esta es la vía más eficiente para aportar energía y glucosa al animal.
En el caso de las grasas, las sales biliares emulsionan las grasas y la lipasa pancreática las descompone para su posterior absorción.
3
El intestino grueso actúa, como una cámara de fermentación secundaria.
Los microorganismos que llegan desde el abomaso y el intestino delgado fermentan junto con la parte de la fibra residual, que no se ha degradado en el rumen, produciendo ácidos grasos volátiles (AGV) de cadena corta que se absorben directamente en el colon.
La digestión postruminal en animales de alta productividad (por ejemplo, vacas lecheras en pico de producción o terneros en cebaderos intensivos) representa un momento crítico para el aporte de proteína metabolizable (PM) y energía neta (EN).
A niveles de consumo extremos (>4% del peso vivo), la velocidad de paso de la partícula (kp) se eleva drásticamente (kp ≥0,08h-1 (es el 8% de vaciado por hora)), limitando el tiempo de retención en el retículo-rumen y enviando una gran fracción de sustancias quimo digerible hacia el tracto posterior.
El abomaso funciona como un biorreactor ácido de flujo continuo, optimizado para degradar las estructuras proteicas complejas y la biomasa microbiana mediante la secreción activa de protones (H+) por las células parietales mediante la bomba de protones (H+/K+ -ATPasa) que baja el pH intra abomasal a rangos de 2,0 a 3,0.
Este gradiente rompe los puentes hidrógeno y desnaturaliza las estructuras terciarias y cuaternarias de las proteínas libres.
Por otro lado, provoca la lisis osmótica del flujo de bacterias, arqueas y protozoos ruminales, exponiendo todas sus estructuras a la digestión.
Ésta fragmenta los polímeros en oligopéptidos de cadena corta. 1 2 3 4
La activación zimogénica (zimógenos: precursores inactivos de enzimas), el pepsinógeno segregado por las células peptídicas o células principales se cataliza por el pH ácido.
El pH ácido Acelera la ruptura autocatalítica del pepsinógeno, hasta transformarlo en pepsina, que es una endopeptidasa.
La endopeptidasa hidroliza preferentemente enlaces en los que intervienen aminoácidos aromáticos (fenilalanina, triptófano, tirosina).
El quimo ácido pasa al duodeno, activando mecanismos neuroendocrinos (secretina y colecistoquinina) que inducen la secreción biliar y pancreática, neutralizando el pH hasta 6 – 6,5, el óptimo para las enzimas intestinales (Figura 1):
Quimo ácido del abomaso (pH 2 – 3)
Secretina / colecistoquina Secreciones de HCO3y sales biliares
Neutralización del pH (pH 6 – 6,5)
Proteolisis: Tripsina y quimiotripsina
Amilolisis: Amilasa pancreática
Lipolisis: Lipasa y colipasa
Figura 1. pH y su relación con la actividad enzimática.
El intestino delgado es el responsable de la absorción de aminoácidos, en donde la digestibilidad real de la proteína microbiana ronda del 80-85%.
En la fase luminal la enterocinasa de la mucosa duodenal activa el tripsinógeno a tripsina, esta, a su vez, activa a la quimotripsina, elastasa y carboxipeptidasas
A y B, el resultado que se obtiene es la degradación de los oligopéptidos a tripéptidos, dipéptidos y finalmente aminoácidos libres.
En la fase apical o fase de absorción los di y tripéptidos se absorben mediante transporte activo secundario acoplado a un gradiente de protones a través del cotransportador PepT1. Los aminoácidos libres utilizan sistemas transportadores específicos dependientes de sodio.
Una vez dentro del enterocito, las peptidasas citosólicas hidrolizan los péptidos restantes antes de su exportación al sistema porta hepático (Cuadro 1).
En relación a los lípidos que entran al duodeno del rumiante están altamente biohidrogenados por los microorganismos ruminales, presentándose predominantemente como ácidos grasos libres saturados (principalmente ácido esteárico, C18:0) unidos a partículas de la dieta.
El quimo carece de monoglicéridos (sustancias emulsificantes clave) porque los triglicéridos ya fueron hidrolizados en el rumen.
Por lo tanto, los rumiantes dependen críticamente de la lisolecitina (derivada de la fosfatidilcolina biliar tras la acción de la fosfolipasa A2 pancreática) y de las sales biliares para formar micelas mixtas estables a pH ácido.
Cuando las dietas son altas en concentrados la amilolisis ruminal no es suficiente y el almidón no es totalmente degradado en el rumen (almidón que escapa a la fermentación ruminal) y llega al duodeno en cantidades significativas.
Los mecanismos de digestión intestinal empiezan con la α-amilasa pancreática que hidroliza los enlaces glucosídicos α-(1,4) del almidón, generando maltosa, maltotriosa y dextrinas límite.
Posteriormente, las disacaridasas de los enterocitos (maltasa e isomaltasa) completan la hidrólisis hasta glucosa.
Siguiendo el tránsito, aproximadamente del 5 al 15% de la materia orgánica total digerible se fermenta en el intestino grueso. Aquí no hay secreción de enzimas digestivas endógenas del hospedador; toda la actividad es microbiana.
De forma genérica lo que llega al intestino grueso son los residuos de la pared celular vegetal (FND no degradada en rumen), almidón postruminal remanente y proteínas no degradadas y las endógenas (células de descamación y enzimas).
La microbiota cecal y del colon fermenta estos carbohidratos mediante rutas análogas a las ruminales, produciendo ácidos grasos volátiles (AGV): acetato, propionato y butirato, junto con gases principalmente metano (CH₄), y bióxido de carbono (CO₂).
Estos AGV se absorben por difusión simple y aportan entre el 5 y el 10% de la energía neta del animal.
Nutriente
Postruminal
Proteína
Microbiana y proteína no degradable
Almidón no degradable
Lípidos
Saturados (C18:0)
Carbohidratos
Estructurales
El nitrógeno de las proteínas bacterianas sintetizadas de novo en el intestino grueso no puede ser absorbida por el hospedador debido a la ausencia de transportadores de aminoácidos y péptidos.
Todo este nitrógeno se pierde por las heces (nitrógeno metabólico fecal), siendo muy exigentes podríamos decir que representa una ineficiencia neta en el balance de aminoácidos de animales de alta producción.
Enzima / Agente Principal
Pepsina, Tripsina, Quimotripsina
alfa-Amilasa pancreática, Maltasa
Sales Biliares, Lisolecitina, Lipasa
de Absorción principal
Yeyuno / Íleon
Aminoácidos Libres y Di/Tri-péptidos
Duodeno / Yeyuno Glucosa
Yeyuno proximal
Microbiota Cecal Ciego / Colon
Cuadro 1. Balance y eficiencia nutricional postruminal.
Ácidos Grasos Libres (Micelas)
AGV (Acetato, Propionato y butirato)
Muy Alta: Síntesis de proteína láctea y tisular directa.
Alta: La glucolisis hepática es aproximadamente un 40% más efectiva que la fermentación a AGV en el rumen.
Moderada a Alta: Limitada por la capacidad de formar micelas del ácido esteárico.
Baja: Pérdida de energía por metanogénesis bacteriana y el nitrógeno fecal.
En el cuadro anterior se resumen los coeficientes de digestibilidad aparente y el destino metabólico neto en el tracto posterior al rumen-retículo.
La formulación avanzada en rumiantes altamente productivos busca un balance termodinámico preciso, para ello se requiere utilizar las ecuaciones de dinámica de flujo o en los coeficientes de absorción específicos por aminoácido bajo los modelos de CNCPS (Universidad de Cornell) o INRAE.
El flujo de un nutriente (i) que escapa del rumen hacia el resto del tracto se calcula mediante la relación competitiva entre la tasa de degradación ruminal (kd) y la tasa de paso (kp):
Escape postruminal (g/d) = Consumo totali x (k p,i / kd,i + k p,i)
En modelos avanzados (CNCPS), la kp postruminal o tasa de vaciado de los compartimentos posteriores se modeliza de forma diferente:
Líquidos y partículas ultrafinas, siguen una cinética de primer orden influenciada directamente por el consumo de materia seca en función del peso vivo (% consumo medio diario (CMD) / peso vivo (PV)).
Ecuación de predicción de pasaje para concentrados:
K p conc = 0,007 + 0,02 x CMDPV + 0,001 x FND%dieta
(En donde Kp conc es la tasa de paso del concentrado, CMDPV es el consumo como porcentaje del peso vivo y FND%dieta es el porcentaje de fibra neutro detergente de la dieta).
Por ejemplo, en vacas de muy alta producción, el cálculo de esta fórmula lleva a la kp por encima de 0,09 h-1, reduciendo drásticamente la digestión ruminal y sobrecargando mecánicamente el intestino delgado.
El CNCPS ha dividido en fracciones la matriz de digestibilidad intestinal específica (Cuadro 2), una vez que el bolo ingresa al duodeno, los modelos no asumen una digestibilidad estática, sino coeficientes de digestibilidad intestinal verdaderos (DIv) asignados a fracciones químicas que no se modifican en su paso a través del rumen:
Fracción Química
PNDR B1
PNDR B2
Descripción
PNDR B3
Proteína Microbiana
Almidón no degradable (CB1)
Lípidos (ácidos grasos)
Coeficiente de Digestibilidad Intestinal (DIv)
Proteínas solubles (albúminas, globulinas) que escaparon 1,00 (100%)
Proteínas de degradación media (prolaminas, glutelinas) 1,00 (100%)
Proteínas asociadas a la pared celular (FND)
Bacterias asociadas a líquido ruminal y partículas solubles
Almidón remanente del grano (ejem. maíz, sorgo)
Ácidos grasos libres y triglicéridos no degradables comerciales
0,80 (80%)
Limitante
Ninguna, absorción casi instantánea.
Flujo excesivo del quimo o saturación enzimática.
Grado de lignificación de la matriz forrajera.
0,80 (80%)
Grosor y composición de la pared celular bacteriana.
0,30 a 0,75 (Variable)
Nivel de gelatinización/ molienda y disponibilidad de α-amilasas.
0,70 a 0,95 (Variable)
Grado de saturación (Relación C18:0 / C18:1).
Mayor resistencia a los desafíos
Rendimiento optimizado
Asociación única de extractos de macroalgas biológicamente activos (MSP®)
El objetivo de trabajar con un modelo dinámico de absorción de aminoácidos y el concepto de “Proteína Ideal”, es predecir el flujo de aminoácidos metabolizables (AAM) hacia el yeyuno.
Los sistemas CNCPS e INRAE aplican ecuaciones vectoriales para resolver la absorción neta:
AAM j (g/d) = [ ∑ (PNDRi x DIv,i Aaji ) + (Biomasa microbiana x 0,80 x AAjm )]
AAMj: Flujo de aminoácidos metabolizables al yeyuno; AAji: Perfil de aminoácidos de la fracción de alimento i para el aminoácido j; AAjm: Perfil de aminoácidos de la biomasa microbiana; EAPj: Eficiencia de absorción después de entrar al enterocito (pérdidas por el metabolismo propio del enterocito antes de llegar a la vena porta).
La mucosa intestinal consume una gran cantidad de aminoácidos para su propio mantenimiento celular, debido a la alta velocidad de recambio de los enterocitos.
Los aminoácidos esenciales se absorben con eficiencias netas variables hacia el sistema porta:
Metionina (Met): La eficiencia es ≈ 85% de transferencia a la sangre y es altamente priorizada por el enterocito.
Lisina (Lys): (≈ 70%) de eficiencia.
Treonina (Thr): (≈ 45-50%) una gran parte es retenida en el propio intestino para la síntesis de mucina.
El aprovechamiento de los carbohidratos a nivel postruminal presenta ciertas características diferenciales. La digestión de glucosa en el intestino delgado es un 42% más eficiente energéticamente que su fermentación ruminal a propionato (se evitan las pérdidas de metano y calor de fermentación).
Sin embargo, la capacidad del rumiante para secretar α-amilasa pancreática está limitada por la escasez evolutiva de transportadores SGLT-1.
Si el flujo de almidón al duodeno excede los 1,5 a 2 kg/vaca/día, la tasa de absorción celular de glucosa se satura (Vmax alcanzada).
El exceso de almidón genera:
La digestión postruminal de las grasas tiene algunas particularidades: los ácidos grasos que más llegan al intestino son los saturados de cadena larga (como el ácido esteárico, C18:0) que poseen un punto de fusión elevado (≈ 69,3º C). A la temperatura corporal del rumiante (39º C), son sólidos e hidrofóbicos.
Por otro lado, la eficiencia de absorción intestinal de las grasas decae en forma logarítmica a medida que aumenta la dosis total, debido a la saturación de las sales biliares y a la disponibilidad de la lisolecitina para formar las micelas que es relativamente baja. Aumento de presión osmótica intestinal: Diarreas mecánicas por retención de agua en la luz intestinal.
Llegada de almidón al ciego en exceso, provocando acidosis cecal (caída del pH del intestino grueso por acumulación de lactato y AGV), lesionando el epitelio del colón y proliferando los microorganismos.
Si se supera el límite de síntesis de micelas, el ácido esteárico precipita y se excreta intacto por las heces, reduciendo la digestibilidad de la grasa total de la dieta.
Introducción al aprovechamiento post-ruminal DESCÁRGALO EN PDF
Pablo Guarnido Lopez, DVM, PhD,
Department of Animal Sciences, 474 Olsen Blvd, College Station, TX 77845. Texas A&M University, College Station, TX, USA.
INTRODUCCIÓN
La nutrición del bovino de cebo ha experimentado una transformación profunda durante las últimas décadas.
La intensificación de los sistemas productivos, la mejora genética, el aumento de la velocidad de crecimiento y la utilización de dietas cada vez más concentradas han modificado de forma significativa la fisiología y el comportamiento productivo de los animales modernos.
Sin embargo, gran parte de los sistemas utilizados actualmente para formular raciones y estimar requerimientos nutricionales continúan basándose en ecuaciones desarrolladas entre las décadas de 1960 y 1980.
Sistemas ampliamente utilizados como NRC o INRA constituyeron un avance extraordinario para su época y siguen representando herramientas fundamentales para la nutrición práctica de rumiantes.
Estos modelos permitieron relacionar ingestión, crecimiento, composición corporal y eficiencia alimentaria mediante una base experimental sólida, basada principalmente en ensayos de digestibilidad, metabolismo y sacrificios comparados.
Gracias a ello, fue posible estandarizar la formulación de raciones y mejorar notablemente la productividad del sector.
No obstante, es importante entender el contexto en el que dichos sistemas fueron desarrollados.
Los animales utilizados hace 40 o 50 años presentaban menores tasas de crecimiento, diferente composición corporal y una eficiencia alimentaria considerablemente inferior a la observada actualmente.
Del mismo modo, las dietas utilizadas en aquel momento contenían una mayor proporción de forraje y una menor densidad energética que las empleadas hoy en sistemas intensivos de cebo.
Como consecuencia, los modelos tradicionales tienden a representar al animal como un sistema agregado basado en valores medios, utilizando coeficientes fijos de utilización de la energía y la proteína.
Aunque este enfoque continúa siendo robusto a nivel poblacional, presenta limitaciones importantes cuando se intenta describir la elevada variabilidad biológica observada actualmente entre animales, incluso dentro de un mismo lote.
En condiciones comerciales modernas, parámetros como la ingestión de materia seca (IMS), la ganancia media diaria (GMD) o la eficiencia de conversión muestran una variabilidad moderada (18-22%), influenciada por factores genéticos, fisiológicos, ambientales y de manejo.
Esta realidad pone de manifiesto que el concepto clásico de “requerimiento medio” resulta cada vez menos representativo del comportamiento real de los animales modernos.
En paralelo, el desarrollo de nuevas tecnologías de adquisición de datos, sensores de precisión y grandes bases de datos productivas ha abierto la puerta a una nueva generación de modelos nutricionales más dinámicos y fisiológicamente integrados.
En este contexto, comienzan a emerger enfoques mecanísticos capaces de representar explícitamente procesos como la fermentación ruminal, la absorción intestinal, el metabolismo esplácnico o la partición energética entre órganos y tejidos.
El objetivo de este artículo es hacer reflexionar al lector (especialmente si es experto en nutrición o trabaja en formulación de rumiantes), sobre:
Limitaciones actuales de los sistemas clásicos de alimentación en bovino de cebo.
Discutir cómo la integración de bases de datos comerciales, modelos dinámicos y herramientas de precisión puede contribuir al desarrollo de estrategias de formulación más inteligentes, adaptativas y representativas de las condiciones reales de producción.
En este texto, no vamos a desvalorizar o criticar ningún sistema, lo que se busca es aumentar el conocimiento acerca de los sistemas en sí, su contexto y sobre qué o para qué fueron creados. CÓMO SE CONSTRUYERON LOS SISTEMAS
Los sistemas modernos de formulación en rumiantes no surgieron de manera arbitraria. Fueron el resultado de décadas de investigación experimental desarrollada principalmente entre los años 1950 y 1980, en un contexto de intensificación agraria y creciente necesidad de mejorar la eficiencia productiva del ganado.
Tras la Segunda Guerra Mundial, la agricultura y la ganadería experimentaron una transformación profunda impulsada por la mecanización, la mejora genética, la expansión del uso de fertilizantes y el desarrollo de nuevas estrategias de alimentación animal.
En este escenario comenzaron a desarrollarse los primeros sistemas organizados de evaluación nutricional para rumiantes. Inicialmente, los esfuerzos se centraron en la caracterización química de los alimentos y en la determinación de su valor nutritivo.
Posteriormente, aparecieron los primeros sistemas o ciales de requerimientos, como el Agricultural Research Council (ARC) en Reino Unido, que sentaron las bases conceptuales de los modelos utilizados posteriormente por NRC e INRA.
El desarrollo de estos sistemas se apoyó fundamentalmente en tres tipos de experimentos (Figura 1).
Estudio de digestibilidad
Medición de la ingestión y recolección total de heces para determinar la digestibilidad de la materia seca y nutrientes.
Cámara respirométrica (balance energético
Medición del consumo de 0 2y producción de CO2 y CH4 para estimar el balance energético y la utilización de la energía metabolizable.
Técnica de sacrificios comparados
Determinación de la composición corporal (proteína, grasa y otros componentes) mediante despiece y análisis de la canal.
Figura 1. Experimentos utilizados para confeccionar los primeros sistemas de requerimientos.
La técnica de sacrificios comparados fue la técnica de referencia para medir la composición corporal, base de los requerimientos y necesidades, y permitieron relacionar el crecimiento del animal con la deposición de proteína y grasa corporal, generando ecuaciones capaces de estimar requerimientos energéticos y proteicos en función del peso vivo y la ganancia diaria.
A partir de esta información, se construyeron modelos basados en la partición de la energía en diferentes fracciones: energía bruta, digestible, metabolizable y neta.
Este enfoque permitió describir de forma relativamente precisa cómo la energía ingerida era utilizada para mantenimiento y crecimiento.
En la figura 2, mostramos la evolución de los sistemas nutricionales en vacuno desde el principio hasta los modelos utilizados en este momento.
1950–1960
Mediciones de composición química
Enfoque descriptivo
Se analizan los alimentos y se generan tablas de composición química. No existen aún modelos formales de requerimientos.
1950–1960
ARC: primer sistema o cial de requerimientos
Primeros sistema. El ARC publica el primer sistema o cial de requerimientos. Basado en estudios experimentales y valores.
1970–1980
Desarrollo y expansión de sistemas
INRA y NRC
Se consolidan sistemas como INRA (1978) y NRC (1976). Basados en sacri cios comparados, digestibilidad y metabolismo.
2000–2010
Nuevos enfoques mecanísticos
Modelos basados en procesos Aparecen modelos siológicos que simulan procesos digestivos. Mayor capacidad predictiva.
2015–Actualidad
Modelos dinámicos y basados en datos
Nutrición de precisión Integración de big data, sensores, inteligencia arti cial y modelos. Enfoque individualizado y en tiempo real.
Mejora genética Cambios en dietas y manejo Mayor productividad Más precisión y sostenibilidad
Figura 2. Evolución de los sistemas de requerimientos nutricionales en bovino de cebo (Del enfoque empírico al modelado dinámico y fisiológico).
El sistema NRC, desarrollado principalmente en Estados Unidos, ha tenido históricamente una orientación muy práctica y aplicada a la formulación de raciones en condiciones productivas.
Su fortaleza reside en la integración de un gran volumen de datos experimentales procedentes de ensayos de alimentación, digestibilidad, crecimiento y metabolismo.
A partir de esta información, el sistema construye ecuaciones capaces de predecir consumo, requerimientos de energía y proteína, y respuesta productiva del animal en función de variables como el peso vivo, la ganancia diaria, el sexo, el tipo animal y la concentración energética de la dieta.
Desde un punto de vista conceptual, NRC ha representado tradicionalmente al animal como una unidad productiva integrada.
Es decir, no intenta describir en detalle cada órgano o cada vía metabólica, sino que estima la respuesta global del animal a partir de relaciones estadísticas observadas en poblaciones experimentales.
Este enfoque ha sido extremadamente útil en la práctica, porque permite formular raciones de forma relativamente sencilla y estandarizada.
Para ello, utiliza conceptos como:
Peso vivo vacío Crecimiento alométrico
Deposición relativa de proteína y grasa Esto permite estimar los requerimientos de crecimiento no solo en función de cuánto peso gana el animal, sino también en función de qué tipo de tejido está depositando.
Sin embargo, también implica que muchas de sus predicciones se basan en valores medios y coeficientes generales de eficiencia, lo que puede limitar su capacidad para capturar diferencias individuales entre animales.
Por otro lado, el sistema INRA, desarrollado en Francia, incorporó desde sus primeras versiones una visión más fisiológica del crecimiento.
En lugar de centrarse únicamente en la respuesta productiva media, el sistema INRA presta especial atención a la composición corporal del animal y a la forma en que cambia durante el crecimiento.
Esta diferencia es clave.
Ganar un kilogramo de peso vivo no siempre tiene el mismo coste energético.
Un animal joven, que deposita proporcionalmente más proteína y agua, puede crecer con una eficiencia distinta a la de un animal más pesado, que deposita una mayor proporción de grasa.
En este sentido, podría decirse que NRC ha destacado por su robustez práctica y su aplicabilidad directa en campo, mientras que INRA ha aportado una mayor profundidad fisiológica en la interpretación del crecimiento y de la partición de nutrientes.
Ambos sistemas han sido fundamentales para el desarrollo de la nutrición moderna de rumiantes.
Gracias a ellos, fue posible pasar de formulaciones basadas en experiencia o reglas generales a modelos cuantitativos capaces de estimar necesidades energéticas y proteicas con una base científica sólida.
No obstante, el gran desafío actual no está en negar el valor de estos sistemas, sino en entender sus límites.
Tanto NRC como INRA fueron construidos a partir de bases de datos generadas en condiciones experimentales muy diferentes a las actuales y además, fueron diseñados para predecir el comportamiento medio de una población.
Por tanto, NRC e INRA no deben entenderse como sistemas obsoletos, sino como la base sobre la que debe construirse la siguiente generación de modelos nutricionales.
Su contribución ha sido esencial para la formulación moderna, pero el contexto
La mejora genética
Disponibilidad de datos individuales
Obligan a evolucionar hacia modelos más dinámicos, capaces de integrar información productiva, siológica y ambiental en tiempo real.
Intensi cación de las dietas
Desarrollo de tecnologías de precisión
El futuro de la nutrición de cebo no pasa por sustituir completamente los sistemas clásicos, sino por complementarlos con enfoques mecanísticos y basados en datos que permitan estimar requerimientos de manera más flexible, adaptativa y representativa del animal real.
A pesar de la enorme contribución científica y práctica de sistemas como NRC e INRA, resulta evidente que el contexto productivo actual es muy diferente al existente cuando se desarrollaron las bases experimentales originales de estos modelos.
Durante las últimas décadas, la genética, la alimentación, el manejo y la intensificación productiva han evolucionado a una velocidad mucho mayor que la actualización conceptual de muchos sistemas nutricionales.
Uno de los principales factores que explica las limitaciones actuales de los modelos clásicos es el enorme cambio biológico que ha experimentado el ganado vacuno durante los últimos 40 o 50 años (Figura 3).
Los animales utilizados en los experimentos originales de NRC e INRA presentaban menores tasas de crecimiento, menor eficiencia alimentaria y una composición corporal distinta a la observada actualmente.
La selección genética moderna ha incrementado notablemente la capacidad de crecimiento y la eficiencia de conversión, especialmente en sistemas intensivos de producción.
Hoy en día, los terneros modernos alcanzan ganancias medias diarias significativamente superiores utilizando menos alimento por kilogramo producido.
Además, la partición de nutrientes también ha cambiado. Los animales actuales tienden a depositar más proteína durante fases tempranas del crecimiento y retrasar parcialmente la deposición de grasa respecto a genotipos antiguos.
Este aspecto es especialmente importante desde el punto de vista nutricional, ya que la composición del crecimiento condiciona directamente los requerimientos energéticos. Depositar proteína y agua no tiene el mismo coste metabólico que depositar grasa.
Por tanto, utilizar ecuaciones desarrolladas con animales genéticamente diferentes puede introducir desviaciones importantes en la estimación real de requerimientos y eficiencia energética.
El segundo gran cambio ha ocurrido a nivel de alimentación y manejo nutricional (Figura 4).
Los sistemas clásicos fueron desarrollados en condiciones donde las dietas contenían una mayor proporción de forraje, menor concentración energética y una dinámica fermentativa distinta a la observada actualmente.
En contraste, los sistemas modernos de cebo intensivo utilizan dietas altamente concentradas, con elevados niveles de almidón y una fermentación ruminal mucho más orientada hacia la producción de propionato.
Estos cambios modifican profundamente el metabolismo energético del animal.
La producción de ácidos grasos volátiles.
La eficiencia de utilización de la energía metabolizable.
La síntesis microbiana.
La producción de metano.
E incluso, el metabolismo hepático.
Pueden diferir considerablemente respecto a los animales utilizados en las bases de datos históricas.
Sin embargo, probablemente la mayor limitación de los sistemas tradicionales no sea únicamente el cambio genético o nutricional, sino la enorme variabilidad biológica observada actualmente en condiciones comerciales.
En sistemas modernos de producción, animales aparentemente similares pueden mostrar diferencias muy importantes en ingestión de materia seca, eficiencia alimentaria, velocidad de crecimiento o composición corporal.
Incluso dentro de un mismo lote y bajo la misma dieta, la respuesta productiva puede variar considerablemente entre individuos.
Cambios en el Rumiante
Fibronido fermentador (↑ acetato)
Fermentador mixto (↑ propionato, ↑ metano)
Figura 4. Diferencias en los sistemas de alimentación.
Amilolítico (↑ glucosa en sangre)
En otras palabras, muchos modelos clásicos fueron calibrados en un contexto metabólico diferente al actual. Aunque continúan ofreciendo una referencia útil, no siempre representan adecuadamente la fisiología del animal moderno alimentado con dietas intensivas.
Los sistemas tradicionales fueron diseñados para estimar el comportamiento medio de una población experimental. Desde un punto de vista estadístico, esto tiene sentido y ha sido extremadamente útil durante décadas.
El problema aparece cuando se intenta aplicar un único “requerimiento medio” a sistemas biológicos altamente variables y dinámicos.
Actualmente, la disponibilidad de datos individuales obtenidos mediante sensores, básculas automáticas, comederos inteligentes y tecnologías de precisión está demostrando que el animal real se comporta de manera mucho más compleja de lo que describen muchos modelos clásicos.
Por ello, la nutrición moderna comienza a evolucionar desde sistemas basados en valores estáticos hacia modelos más dinámicos, capaces de integrar información fisiológica, ambiental y productiva en tiempo real.
El objetivo ya no es únicamente formular una dieta para el “animal promedio”, sino aproximarse cada vez más a los requerimientos reales de cada animal o grupo productivo.
Durante los últimos años, la disponibilidad de grandes bases de datos productivas obtenidas en condiciones comerciales ha comenzado a mostrar con mayor claridad muchas de las limitaciones asociadas a los sistemas tradicionales de formulación.
A diferencia de los experimentos clásicos utilizados históricamente para construir sistemas como NRC o INRA, los datos comerciales actuales permiten analizar animales en condiciones reales de producción, incorporando la variabilidad natural que existe entre individuos, lotes, dietas, fases productivas y sistemas de manejo.
En este contexto, uno de los aspectos más relevantes observados en bases de datos modernas es la elevada dispersión biológica existente incluso dentro de poblaciones aparentemente homogéneas.
En los datos analizados procedentes de sistemas comerciales de cebo intensivo en España (IRTA, 2010–2024), con información individual de más de 2.000 animales monitorizados durante todo el periodo de crecimiento y cebo, se observaron diferencias importantes.
Aunque los valores medios productivos se situaban dentro de rangos esperables para sistemas intensivos modernos, la variabilidad observada entre animales fue considerablemente elevada, especialmente en parámetros relacionados con crecimiento y eficiencia.
Este aspecto tiene una implicación práctica muy importante: dos animales con pesos similares y alimentados bajo la misma dieta pueden presentar respuestas productivas completamente diferentes.
Precisamente aquí aparece una de las principales limitaciones del concepto clásico de “requerimiento medio”.
En condiciones reales, el animal promedio prácticamente no existe. Lo que existe es una distribución biológica de animales con distintas capacidades de ingestión, utilización de nutrientes y eficiencia metabólica.
Cuando se compararon las predicciones de requerimientos energéticos obtenidas mediante NRC 2016 e INRA 2018 frente a los valores observados derivados de la ingestión real, comenzaron a aparecer diferencias interesantes entre sistemas (Figura 5).
× INRA values
INRAreq t × NRC values
NRCre t
Intake t
Los resultados mostraron que el sistema NRC tendía a sobreestimar los requerimientos energéticos a medida que aumentaba el peso vivo, especialmente en animales de elevado crecimiento alimentados con dietas intensivas.
× INRA values
INRAreq t × NRC values
NRCre t
Intake t
metabolizable
Figura 5. Dispersión de valores de energía metabolizable en función del peso corporal.
Por otro lado, el sistema INRA mostró un comportamiento más próximo a los valores observados, probablemente debido a su enfoque más fisiológico basado en composición corporal y deposición de tejidos.
En el caso de la proteína metabolizable, ambos sistemas mostraron desviaciones respecto a los valores observados, aunque nuevamente INRA presentó un ajuste ligeramente más conservador y estable.
Sin embargo, probablemente el resultado más importante no fue determinar qué sistema “funciona mejor”, sino evidenciar que ninguno de los modelos clásicos logra capturar completamente la enorme variabilidad biológica observada en condiciones comerciales modernas.
En cuanto a las condiciones modernas y en el contexto del vacuno de carne español, el sistema INRA parece ajustar de manera más precisa que el sistema NRC, el cual tiende a sobreestimar los requerimientos energéticos (8-15%).
Esta variación se debe a que la cabaña animal que se utilizó para desarrollar el modelo francés es muy similar a la cabaña bovina actual española, donde una gran parte de la misma es de origen o genética francesa.
En colaboración con IRTA, hemos desarrollado la figura 5 a partir de datos individuales procedentes de sistemas comerciales de cebo intensivo, la cual se incluye con el objetivo de mostrar de manera práctica cómo los requerimientos energéticos y proteicos estimados (mediante el nuevo sistema americano, The ruminant nutrition system, desarrollado parcialmente en Texas A&M University) evolucionan a lo largo del crecimiento del animal, así como la enorme variabilidad biológica existente incluso entre animales con pesos vivos similares.
VER THE RUMINANT NUTRITION SYSTEM
A medida que aumenta el peso corporal, los requerimientos de energía metabolizable (ME) y proteína metabolizable (MP) muestran una tendencia creciente, aunque acompañada de amplios intervalos de variación entre individuos.
Del mismo modo, la concentración energética y proteica necesaria en la dieta tampoco permanece constante durante el crecimiento. En fases tempranas, caracterizadas por una elevada deposición de proteína y un crecimiento más acelerado, las necesidades nutricionales presentan una variabilidad considerablemente mayor.
Probablemente, uno de los aspectos más interesantes que refleja la figura 5 es que animales con pesos corporales prácticamente idénticos pueden presentar necesidades nutricionales muy diferentes.
Esto evidencia que variables clásicas como el peso vivo, utilizadas históricamente como base principal de formulación, no siempre son suficientes para describir completamente la complejidad metabólica del animal moderno.
Requerimiento de energía metabolizable (Mcal/día)
Energía metabolizable de la dieta Mcal/día)
Requerimiento de proteína metabolizable (g/día)
Peso corporal (kg)
Figura 6. Diferencias entre valores de energía y proteína metabolizables en la dieta vs requerimientos individuales.
En otras palabras, esta figura pretende ilustrar de manera aplicada que los requerimientos nutricionales no deben entenderse como valores fijos o estáticos, sino como rangos biológicos dinámicos influenciados por genética, composición corporal, eficiencia metabólica, velocidad de crecimiento y utilización real de nutrientes.
Precisamente esta elevada variabilidad es la que está impulsando el desarrollo de modelos nutricionales más dinámicos y adaptativos, capaces de integrar información fisiológica y productiva en tiempo real para aproximarse de forma más precisa a los requerimientos reales del animal moderno.
Los sistemas clásicos de alimentación, como NRC e INRA, han representado uno de los mayores avances científicos en la historia de la nutrición de rumiantes.
Gracias a ellos, fue posible transformar la formulación de raciones desde un enfoque empírico hacia modelos cuantitativos capaces de relacionar ingestión, crecimiento, eficiencia alimentaria y requerimientos nutricionales con una base fisiológica y experimental sólida.
Sin embargo, el contexto productivo actual es muy diferente al existente cuando se desarrollaron las bases originales de estos sistemas.
La mejora genética, la intensificación de las dietas, el aumento de la eficiencia alimentaria y la elevada variabilidad biológica observada en condiciones comerciales modernas están poniendo de manifiesto algunas de las limitaciones asociadas al concepto tradicional de “requerimiento medio”.
Los resultados observados en bases de datos comerciales españolas muestran claramente que animales aparentemente similares pueden presentar respuestas metabólicas y productivas muy diferentes, incluso bajo condiciones de manejo comparables.
¿Siguen siendo válidos los sistemas clásicos de alimentación en bovino de cebo?
DESCÁRGALO EN PDF
Esta realidad refuerza la necesidad de evolucionar hacia modelos nutricionales capaces de integrar mejor la complejidad biológica del animal moderno.
En este escenario, los modelos dinámicos y mecanísticos representan una oportunidad especialmente prometedora.
La posibilidad de combinar información fisiológica, sensores de precisión, grandes bases de datos e inteligencia artificial abre la puerta a una nueva generación de sistemas nutricionales más adaptativos, individualizados y biológicamente representativos.
El futuro de la nutrición de bovino de cebo probablemente no pase por sustituir completamente los sistemas clásicos, sino por complementarlos con nuevas herramientas capaces de interpretar de forma más precisa la dinámica real del metabolismo animal.
En definitiva, la nutrición de precisión ya no debe entenderse únicamente como una mejora tecnológica, sino como un cambio conceptual en la forma de estudiar, modelar y alimentar al animal moderno.
La integración entre fisiología, modelización y ciencia de datos será, probablemente, uno de los pilares fundamentales de la próxima generación de sistemas de alimentación en rumiantes.
Según la reciente edición del Boletín JRC MARS, las condiciones de los cultivos en Europa se mantienen generalmente positivas, con los cultivos de invierno desarrollándose de forma favorable. Las campañas de siembra de primavera están a punto de concluir en la mayoría de las regiones, si bien las condiciones frías y húmedas han retrasado las labores de campo y el desarrollo inicial de las plantaciones en el sureste europeo y en Turquía.
Algunas heladas tardías han afectado localmente a la colza en determinadas zonas de Europa central y oriental, y la insuficiente lluvia registrada en abril en Europa central, oriental y septentrional ha ralentizado la acumulación de biomasa. No obstante, el clima más fresco y húmedo observado recientemente en el centro y sudeste del continente contribuye a reponer la humedad del suelo y a mejorar el desarrollo de los cultivos.
Las previsiones de rendimiento se han revisado ligeramente a la baja este mes como consecuencia de estas condiciones adversas, aunque en términos generales se mantienen en línea o por encima de la media de los últimos cinco años.
Los rendimientos del trigo blando se sitúan en 6,01 t/ha (-1% respecto al mes anterior y +2% sobre la media quinquenal), los del trigo duro en 3,65 t/ha (sin variación desde abril y +5% frente a la media), los de la cebada en 5,06 t/ha, los del centeno en 4,33 t/ha (sin cambios desde abril y +1% frente a la media) y los de la colza en 3,19 t/ ha (-2% respecto al mes anterior y sin variación frente a la media).
Según los datos más recientes de la Asociación de Comercio de Cereales y Oleaginosas de España (ACCOE), la producción de cereales de otoño-invierno para la campaña 2026/27 se situará en torno a los 16,5 Mt, lo que supone una contracción del 23,7% respecto a la cosecha del ciclo anterior, que totalizó 21,6 Mt.
Entre los principales factores que explican este descenso destacan las elevadas temperaturas registradas durante fases clave del desarrollo vegetativo, así como la irregular distribución de las precipitaciones en gran parte de las zonas productoras.
La reducción afecta de forma generalizada a la mayoría de los cultivos, con especial incidencia en el trigo blando y la cebada. Para la temporada 2026/27 se estima una producción de 6,23 Mt de trigo blando, cifra inferior a los 7,81 Mt de 2025/26, mientras que la cosecha de cebada alcanzaría los 7,53 Mt, frente a los 9,93 Mt de la campaña precedente. El trigo duro registraría una de las mayores caídas porcentuales (-39,51% interanual), con una producción ligeramente superior a las 562.000 toneladas.
Por comunidades autónomas, Castilla y León seguiría concentrando el mayor volumen productivo, aunque con descensos significativos en la mayoría de los cultivos, especialmente en cebada y trigo. También se observarían caídas relevantes en Andalucía, Castilla-La Mancha, Extremadura y Cataluña.
Un reciente informe de la Red de Información Agrícola Mundial (GAIN) del Servicio de Agricultura Exterior del USDA prevé un incremento en la producción de maíz de la UE para la temporada 2026/27, que pasaría de las 57 Mt del ciclo anterior a las 59 Mt proyectadas. Este crecimiento se sustentaría en la mejora de los rendimientos, que compensaría la reducción del área sembrada, la cual se contraería de 8,2 Mha en 2025/26 a 7,9 Mha.
El consumo de maíz en la UE también se prevé al alza para 2026/27, pasando de 74,26 Mt a 75,15 Mt. Para satisfacer esta demanda, se proyectan importaciones por un volumen total de 18,5 Mt, ligeramente superiores a las 18,3 Mt alcanzadas en la temporada 2025/26. En cuanto a los stocks finales, el último pronóstico apunta a 5,4 Mt, frente a las 5,05 Mt del ciclo anterior.
En cuanto al sorgo, para 2025/26 se proyecta una producción de 3,1 Mt, ligeramente superior a los 3 Mt registrados en 2024/25. Por último, la cosecha estimada de cebada alcanzaría 2,3 Mt, sin cambios respecto a la temporada anterior.
Según un informe publicado recientemente por el Ministerio de Agricultura francés, la superficie dedicada al cultivo de oleaginosas en Francia en 2026 alcanzará los 2,29 Mha, lo que representa un incremento del 7,3% respecto al año anterior y del 4,2% en relación con la media de los últimos cinco años. El principal impulso proviene de la colza, cuya área sembrada llegaría a los 1,38 Mha, con un aumento interanual del 9% y situándose un 12% por encima de la media quinquenal.
La superficie plantada de girasol crecería un 4,7% respecto al año anterior, hasta totalizar 0,72 Mha, aunque permanecería un 6,4% por debajo de la media del periodo 2021-2025. Por su parte, el área dedicada a la soja se expandiría un 4% desde 2025, alcanzando los 0,16 Mha, si bien quedaría un 2,2% por debajo de la media de los últimos cinco años.
Materias primas DESCÁRGALO EN PDF
tc@tech-complex.com
www.tech-complex.com